Catalasa: peroxisomas, cinética del H₂O₂ y mCAT — NutriFit
Catalasa y peroxisomas: catálisis del hemo, cinética del H₂O₂ y límites de la aplicación clínica
Estructura de catalasa y NADPH, importación PEX5, ACOX1 y H₂O₂, dos rutas catalíticas, red GPx/Prx, acatalasemia, rs1001179 y límites de los resultados en ratones mCAT.
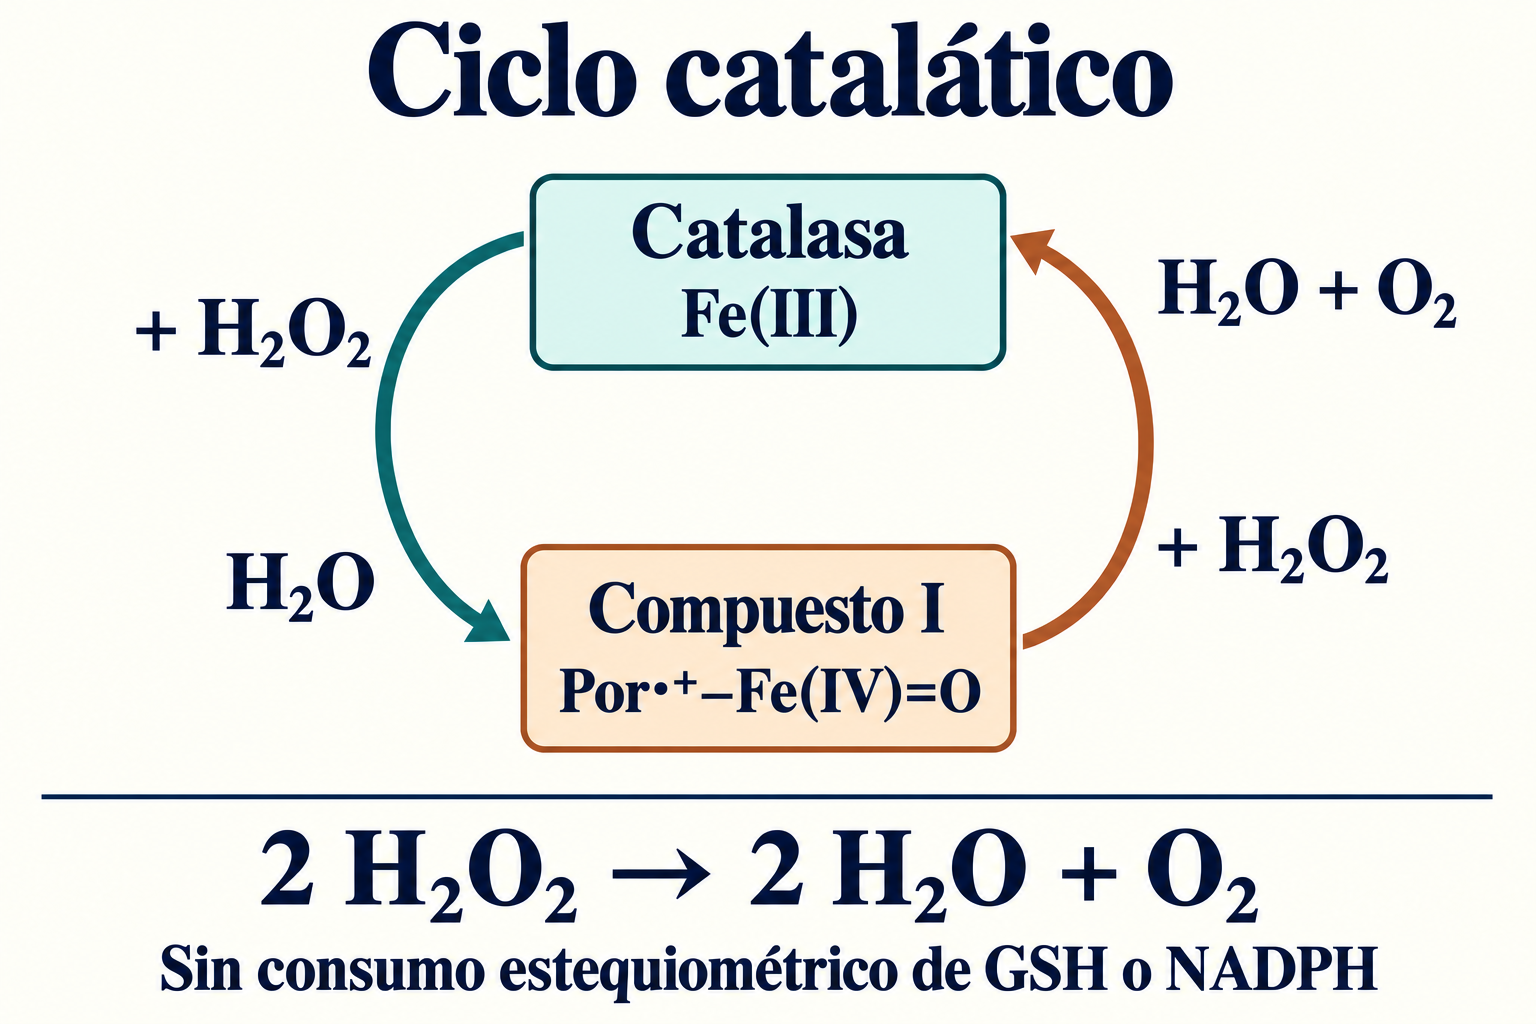
La catalasa resuelve un problema redox singular: utiliza dos moléculas de peróxido de hidrógeno para producir agua y oxígeno sin consumir glutatión o tiorredoxina de forma estequiométrica. Sin embargo, la velocidad de una enzima purificada no determina por sí sola la protección celular. También importan el lugar donde se forma H₂O₂, el acceso del sustrato, la distribución de catalasa y el estado de otras peroxidasas. Relacionar la química con la compartimentación permite comprender los peroxisomas y los resultados en ratones con catalasa dirigida a las mitocondrias.
Peróxido de hidrógeno: señal, flujo y daño
El H₂O₂ es una especie reactiva de oxígeno, pero no un radical libre. Se forma directamente en reacciones de oxidasas y tras la dismutación del superóxido por las superóxido dismutasas. Esta molécula neutra se desplaza entre compartimentos; algunas acuaporinas facilitan su transporte a través de membranas. Su persistencia y concentración dependen de las fuentes y los sistemas de eliminación locales: no existe una semivida celular única.
2O2∙−+2H+SODH2O2+O2.
La oxidación reversible de cisteínas sensibles participa en la regulación de fosfatasas, cinasas y transcripción. Con frecuencia transmiten la señal relevos redox de peroxirredoxinas, en lugar de una reacción directa del H₂O₂ con cada proteína diana. Eustrés y distrés describen resultados fisiológicos, no intervalos universales de «1–10 nM» y «más de 100 nM». Interpretar una medición exige conocer el sensor, su calibración, el compartimento y el tiempo de exposición.
En presencia de hierro lábil, el H₂O₂ puede generar productos muy reactivos mediante la reacción de Fenton:
Fe2++H2O2→Fe3++HO∙+OH−.
El daño depende también de la disponibilidad del metal y de la proximidad a lípidos, proteínas o ADN. En cambio, el peroxinitrito se forma principalmente por reacción de NO con superóxido; atribuirlo a una reacción directa de NO con H₂O₂ es incorrecto. Esta distinción importa al comparar las hipótesis sobre la acción selectiva del hidrógeno molecular: las distintas ROS no son sustratos intercambiables.
Arquitectura de la catalasa humana
Tetrámero, dominios y modelo estructural
La catalasa humana, EC 1.11.1.6, suele formar un homotetrámero de simetría D₂ y masa cercana a 240 kDa. La secuencia canónica contiene 527 aminoácidos. El brazo N-terminal participa en los contactos entre subunidades; el dominio central de barril β constituye el plegamiento principal; la región envolvente sostiene el entorno del hemo; el dominio helicoidal C-terminal interviene en la organización superficial y la unión del nucleótido. Los dominios describen la arquitectura, no enzimas autónomas separadas.
Putnam y colaboradores estudiaron estructuras activas e inhibidas. La entrada PDB 1DGB tiene una resolución de 2,20 Å; que el artículo mencione una estructura de 1,5 Å no asigna esa resolución a 1DGB. Además, la longitud de la cadena cristalográfica depositada y el número de residuos visibles pueden diferir de la secuencia completa. La ausencia de un segmento en las coordenadas no demuestra que falte en la proteína viva.
Bolsillo del hemo y selección del sustrato
Cada subunidad funcional contiene hemo b, protoporfirina IX con hierro. En reposo, este se encuentra predominantemente como Fe(III). El ligando proximal Tyr357, estabilizado por un entorno que incluye Arg353, distingue a la catalasa de muchas hemoproteínas con ligando histidina. En el lado distal, His74 participa en la catálisis ácido-base y Asn147 ayuda a orientar el peróxido y los enlaces de hidrógeno.
El hemo está profundamente enterrado. Un canal de unos 25–30 Å y sus moléculas de agua organizadas condicionan el acceso y reconocimiento del sustrato. No es un mero filtro de diámetro: una mutación que agrande la abertura puede reducir la eficiencia catalítica. La catalasa actúa principalmente sobre H₂O₂ y ciertos donantes pequeños; no sustituye a GPx4 en la reducción de hidroperóxidos de fosfolípidos dentro de las membranas.
NADPH unido y vías protectoras
Los estudios clásicos de Kirkman y Gaetani demostraron una unión estrecha de NADPH a la catalasa de mamíferos, hasta una molécula por subunidad. El bolsillo se encuentra fuera del centro principal del hemo, a unos dos nanómetros. El nucleótido unido adopta una disposición diferente de la habitual en deshidrogenasas.
El NADPH no es un donante obligatorio en cada recambio catalático. Su protección se relaciona con limitar la acumulación del Compuesto II, poco activo, y de otros estados secundarios. La cinética experimental permite rutas más complejas que la reducción directa obligatoria de Compuesto II ya formado. Por tanto, «NADPH dona un electrón y G6PD regenera el radical NADP» no es un ciclo universal demostrado: G6PD reduce NADP⁺ en la vía de las pentosas fosfato. La ausencia de consumo estequiométrico de NADPH en la reacción principal no implica independencia completa del estado redox celular.
Direccionamiento peroxisomal y proximidad a las oxidasas
PTS1, PEX5 y estado de la proteína importada
Los peroxisomas tienen una sola membrana y carecen de genoma propio. Las proteínas de la matriz se sintetizan en ribosomas citosólicos; las proteínas de membrana siguen mecanismos de entrega diferentes. La señal PTS1 C-terminal canónica es SKL. La catalasa humana presenta una señal más débil que incluye KANL terminal. PEX5 la reconoce, pero también influyen su accesibilidad, otras regiones proteicas y el estado del receptor. PTS2 utiliza PEX7 y los correceptores correspondientes.
PEX5 interactúa con el sistema de anclaje PEX14/PEX13. Después de entregar la carga, la monoubiquitinación del receptor se vincula con su extracción por las ATPasas AAA PEX1/PEX6 y su retorno al citosol; participan PEX2/PEX10/PEX12 y anclajes membranarios. Importar proteínas plegadas y ciertos oligómeros no demuestra que la catalasa entre siempre como tetrámero completo. Freitas y colaboradores observaron unión de PEX5 a catalasa monomérica, inhibición de la tetramerización y liberación al interactuar con PEX14. Otros sistemas permiten importar tetrámeros; la ruta depende de las condiciones experimentales. Tampoco corresponde incluir PEX17 de levaduras como componente obligatorio del anclaje humano.
Los defectos de PEX causan trastornos de biogénesis peroxisomal, incluido el espectro de Zellweger. La distribución anómala de catalasa es un signo, pero la gravedad refleja múltiples alteraciones del metabolismo lipídico, no solo la pérdida de una «barrera de catalasa».
ACOX1, ácidos grasos muy largos y transferencia de productos
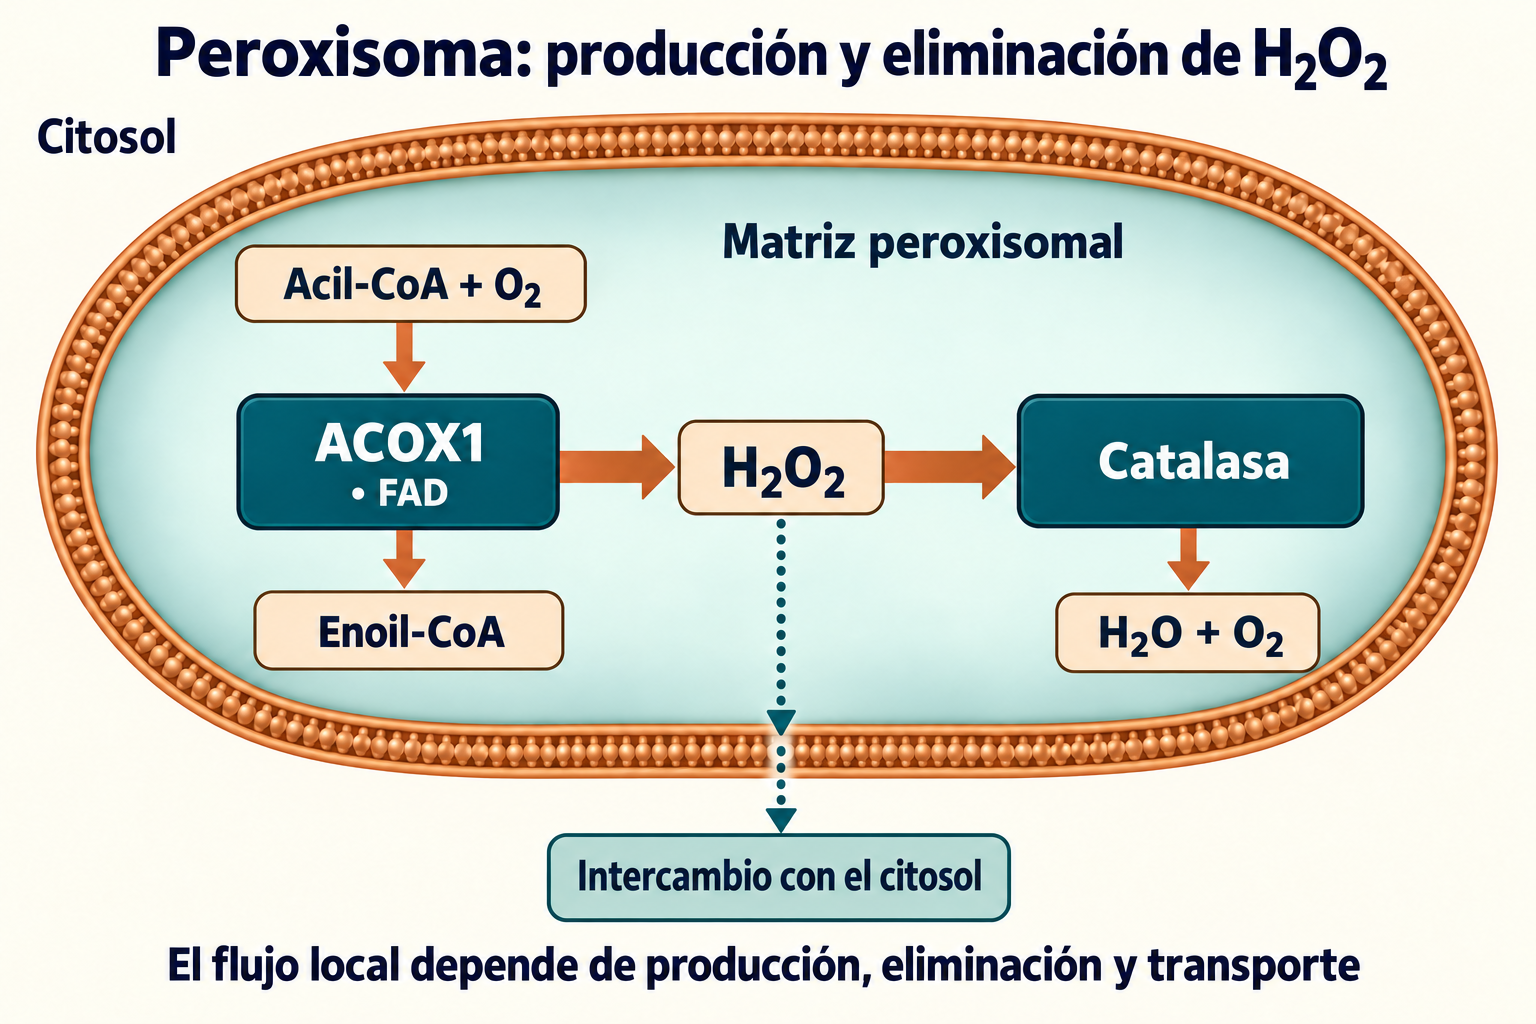
La β-oxidación peroxisomal es especialmente importante para ácidos grasos de cadena muy larga, incluidos C₂₄–C₂₆. Los transportadores ABCD participan en la entrada de sustratos; ABCD1 está relacionado con la adrenoleucodistrofia ligada al X. ACOX1 contiene FAD y transfiere electrones al oxígeno formando H₂O₂, a diferencia de las acil-CoA deshidrogenasas mitocondriales conectadas con ETF y la cadena respiratoria.
Acyl−CoA+O2ACOX1/FADtrans−2−Enoyl−CoA+H2O2.
Una molécula de H₂O₂ corresponde a un paso de oxidasa, no a la degradación completa de un ácido graso. La hidratación, oxidación dependiente de NAD⁺ y tiólisis posteriores acortan la cadena; los productos pueden continuar su metabolismo en mitocondrias. Los ácidos ramificados necesitan otras rutas: el ácido fitánico pasa primero por α-oxidación, y PHYH es una hidroxilasa dependiente de Fe(II)/2-oxoglutarato, no otra flavinoxidasa productora de H₂O₂. La D-aminoácido oxidasa puede generar H₂O₂, mientras que los seres humanos carecen de urato oxidasa activa.
La catalasa reduce la carga local de peróxido, pero la membrana no aísla completamente H₂O₂. El cambio en importación, abundancia de oxidasas y transporte afecta a la señalización citosólica y a las interacciones mitocondriales. Un experimento en roedores no establece porcentajes universales de consumo de oxígeno o abundancia de catalasa en hígado humano. Resulta más realista un balance de flujos:
Este modelo es cualitativo; su uso numérico requiere que todos los flujos se refieran al mismo volumen y se midan en unidades compatibles.
Dos rutas a través del Compuesto I
Ciclo catalático y estados secundarios
La primera molécula de H₂O₂ oxida el centro del hemo en dos equivalentes, formando hierro ferrilo Fe(IV)=O y un radical catiónico de porfirina: el Compuesto I. El entorno distal facilita la ruptura heterolítica O–O y la transferencia de protones. La segunda molécula de H₂O₂ reduce el Compuesto I a Fe(III) y se oxida a O₂. El sustrato actúa así como oxidante y reductor. El balance neto de dos electrones no exige una transferencia simultánea: los modelos QM/MM de Alfonso-Prieto para catalasas de Helicobacter pylori y Penicillium vitale propusieron dos transferencias sucesivas de un electrón a través de un estado semejante al Compuesto II, con intervención de His o transferencia directa de un átomo de hidrógeno. Son modelos de enzimas concretas, no una observación directa del recorrido atómico de CAT humana.
La reducción de un electrón del Compuesto I puede formar el Compuesto II, un estado ferrilo sin radical porfirínico, menos eficaz en el ciclo habitual. El Compuesto III es otro estado unido a oxígeno; su formación no significa destrucción inmediata e irreversible obligatoria del hemo. Acumulación, daño proteico y recuperación dependen de sustrato, donantes, NADPH y duración de la exposición. El nombre del intermediario no determina un grado invariable de irreversibilidad.
Qué mide una «velocidad extraordinaria»
Las constantes bimoleculares se expresan en M⁻¹·s⁻¹; el número de recambio, en s⁻¹. Su semejanza numérica no las hace intercambiables. Cuarenta a cincuenta millones de moléculas por minuto equivalen a unos 0,67–0,83 millones por segundo, manteniendo la misma normalización por centro activo o tetrámero. Esto no demuestra kcat>107s−1 sin otra base experimental.
En un ciclo ideal de dos etapas, con concentración de sustrato constante y sin rutas secundarias, la desaparición de H₂O₂ puede escribirse así:
vH2O2=k1+k22k1k2[E]active[H2O2].
El factor dos representa dos moléculas de peróxido consumidas por ciclo; la formación de O₂ ocurre a la mitad de velocidad. El modelo produce dependencia lineal del sustrato en su régimen aplicable, no una dependencia cuadrática universal a baja concentración. Exige estado estacionario del intermediario, acceso del sustrato y ausencia de inactivación.
El Km aparente depende del modelo. Abe y colaboradores obtuvieron aproximadamente 0,025 M para catalasa purificada de hígado bovino a pH 7,0, con mediciones a 2 °C. Describe una preparación y un método, no un umbral de activación de catalasa humana. A alta concentración de peróxido aparecen desviaciones cinéticas, intermediarios e inactivación; afirmar «capacidad ilimitada sin saturación hasta 1 M» es excesivo.
Rama peroxidática: alcoholes y toxicología
El Compuesto I puede oxidar un donante pequeño adecuado en lugar de una segunda molécula de H₂O₂. Para un alcohol primario:
R−CH2OH+H2O2→R−CHO+2H2O.
Los flujos relativos dependen de las velocidades de las reacciones competidoras y de ambas concentraciones; no existe un interruptor estricto a 1 µM. El etanol produce acetaldehído y el metanol, formaldehído. La oxidación de formiato o nitrito en sistemas enzimáticos tampoco establece su contribución fisiológica en todos los tejidos.
En el hígado humano predominan alcohol deshidrogenasa y, según las condiciones, CYP2E1; esta base no justifica una fracción constante de 10–20% para catalasa. Experimentos en cerebro de roedores y con 3-amino-1,2,4-triazol respaldan un papel en la producción local de acetaldehído y algunos efectos conductuales, pero no miden un «60–70%» universal humano. Oxidar un alcohol tóxico no siempre lo desintoxica: formaldehído y formiato también son tóxicos, y las diferencias entre especies son cruciales para el metanol.
CAT, GPx y Prx: una red, no tres umbrales
Propiedad
Catalasa
Glutatión peroxidasas
Peroxirredoxinas
Grupo catalítico
Hemo b
Selenocisteína en GPx1/GPx4
Cisteína reactiva
Química principal
Desproporción del H₂O₂
Reducción de peróxido con donante
Oxidación del tiol catalítico
Reductor neto
Segundo H₂O₂
Habitualmente 2 GSH
Frecuentemente tiorredoxina; depende de la isoforma
Regeneración
Ciclo principal sin consumo de GSH/NADPH
Glutatión reductasa reduce GSSG con NADPH
Tiorredoxina reductasa utiliza NADPH
Compartimentos
Principalmente peroxisomas; otros depósitos
Según isoforma; citosol, mitocondrias, lípidos
Citosol, núcleo, mitocondrias y otros lugares
Papel particular
Grandes flujos locales de peróxido
GPx4 protege fosfolípidos y limita ferroptosis
Captación de H₂O₂, relevos redox y señales
Limitación
Entrega del sustrato, enzima activa, inactivación
Disponibilidad y regeneración de donantes
Reducción, resolución de disulfuro, hiperoxidación
La última ecuación representa el sistema neto dependiente de tiorredoxina, no una reacción directa con H₂O₂. Prx6 y otros contextos utilizan donantes diferentes. Regenerar GSSG habitualmente requiere NADPH; es el coste metabólico de mantener el depósito, no consumo de ATP en cada paso peroxidásico.
La reacción rápida de Prx con H₂O₂ es compatible con un recambio completo más lento, porque la reducción puede limitar el ciclo. La hiperoxidación de algunas Prx de dos cisteínas a formas sulfínicas modifica temporalmente la eliminación y señalización; sulfiredoxina puede restaurar determinadas formas con ATP. El modelo «floodgate» resulta útil en ciertas condiciones, no establece un umbral universal para todas las Prx. Cada sistema depende de abundancia, localización y regeneración. CAT puede influir en flujos bajos de su compartimento; situar GPx4 en un «escalón intermedio de H₂O₂» ignora sus sustratos lipídicos.
Gen CAT, acatalasemia y variante común del promotor
CAT humano está en 11p13 y contiene 13 exones. Su promotor rico en GC interactúa con distintos reguladores; cantidad de proteína, incorporación de hemo y distribución determinan conjuntamente la actividad. En las deleciones de la región WAGR, la afectación de CAT depende de sus límites; una reducción fija del 50% no es obligatoria en todos los casos.
La acatalasemia es una enfermedad rara, generalmente autosómica recesiva, causada por variantes patogénicas de CAT. Las observaciones históricas de Takahara relacionaron la escasa liberación de oxígeno al exponer sangre a peróxido con lesiones necróticas orales. La oxidación de hemoglobina y el H₂O₂ bacteriano pueden favorecer el daño local. Sin embargo, muchas personas con deficiencia intensa no presentan esas lesiones: higiene, infecciones y otras defensas modifican el fenotipo.
Se han descrito alteraciones del empalme, desplazamientos del marco y cambios de estabilidad proteica en distintas poblaciones. Interpretarlas requiere variante y transcrito precisos; una denominación geográfica no sustituye al diagnóstico molecular. Los informes observacionales de diabetes son interesantes, pero grupos pequeños y seleccionados no establecen un riesgo universal «4,5–5,2 veces mayor» ni un único mecanismo de muerte de células β. Medir actividad eritrocitaria exige método, normalización por hemoglobina o proteína y contexto de la muestra; no es una prueba independiente de «velocidad de envejecimiento».
−262C>T, rs1001179, es distinto de las causas raras de acatalasemia. Forsberg estudió unión de factores, transcripción de reporteros y catalasa sanguínea, no hipertensión demostrada. El alelo T produjo alrededor de 1,5 veces más transcripción en HepG2 y K562; entre 29 donantes, los portadores T tuvieron mayor catalasa eritrocitaria que CC (p < 0,03). Dirección y magnitud no se trasladan automáticamente a todos los tejidos o enfermedades. Las asociaciones con vitíligo, tumores e hipertensión dependen de población y diseño; el genotipo no justifica elegir «activadores de catalasa» ni demuestra cada vía causal.
mCAT: qué demostró cambiar de compartimento
En 2005, Schriner comparó catalasa humana transgénica dirigida a peroxisomas, núcleo o mitocondrias de ratones. El direccionamiento mitocondrial produjo el aumento más marcado de supervivencia; se comunicaron extensiones de la mediana y de la duración máxima de vida de unos cinco meses. Fue una intervención genética animal, no un ensayo de suplementos. Respalda el efecto causal de esa intervención en el modelo y la importancia de localización, pero no convierte todas las ROS en causa única del envejecimiento.
Dai describió menos hipertrofia y fibrosis cardíacas relacionadas con la edad, conservación de función diastólica y reducción de ciertos daños mitocondriales en ratones mCAT. Es más preciso que afirmar prevención completa de cardiomiopatía dilatada y toda insuficiencia cardíaca. El estrés oxidativo puede influir en el poro de transición de permeabilidad mitocondrial, mPTP, pero el fenotipo protector no demuestra que medie obligatoriamente la oxidación directa de ciclofilina D. ADN mitocondrial, cataratas, músculo y sensibilidad a insulina corresponden a modelos y resultados concretos; sin evidencia separada no pueden reunirse en un único efecto numérico.
Nivel de evidencia
Conclusión respaldada
Lo que no demuestra
Enzima purificada
Mecanismo, cinética e inhibición en condiciones definidas
Distribución celular o beneficio clínico
Sistemas celulares de importación
Interacción CAT–PEX5 y dependencia del ensamblaje
Una única ruta en todos los tejidos
Ratones mCAT
Efectos del direccionamiento genético sobre vida y fenotipos
Prolongación de vida humana con catalasa oral
Acatalasemia y rs1001179
Mecanismos genéticos y asociaciones limitadas
Riesgos universales o protocolos preventivos
Regulación, inhibidores y administración de la enzima
FoxO conecta defensa frente al estrés con Akt, estado energético y modificaciones proteicas; SIRT1 puede modificar la respuesta transcripcional. Nrf2/Keap1 coordina una red citoprotectora, pero cambiar la actividad CAT tras estimulación no prueba unión directa de Nrf2 al promotor en todos los tejidos. PPARα regula metabolismo lipídico y enzimas peroxisomales; la inducción de oxidasas y sistemas de eliminación puede diferir. Más β-oxidación no garantiza un aumento proporcional de catalasa.
Resveratrol, sulforafano, EGCG, quercetina y omega-3 se han estudiado en células y animales. Esos estudios no proporcionan un régimen probado para deficiencia de catalasa o envejecimiento humano. Incluso mayor actividad sanguínea sigue siendo un resultado sustitutivo si no se demuestra direccionamiento tisular y beneficio clínico. Los detalles de resveratrol, SIRT1 y biodisponibilidad son esenciales: un efecto de laboratorio no asegura activación directa a una exposición alcanzable.
Hierro y síntesis de hemo son necesarios para la hemoproteína; ALAS y ferroquelatasa participan en esa vía. No implica administrar hierro sin deficiencia confirmada. El exceso de hierro lábil favorece Fenton. Algunas GPx necesitan selenio, pero este no es el grupo prostético de CAT. Una medición antioxidante aislada no describe toda la red.
El 3-amino-1,2,4-triazol es un inhibidor de catalasa dependiente del mecanismo, asociado al ciclo del peróxido; las estructuras muestran interacción en la región activa. Azida y cianuro se unen a centros de hemo y afectan otras enzimas. Sus efectos, especialmente la conducta tras administración sistémica, no son pruebas perfectamente específicas de CAT sin controles adicionales.
Administrar una proteína grande está limitado por distribución, proteólisis, respuestas inmunes y acceso al compartimento adecuado. Se investigan PEGilación, liposomas, vesículas extracelulares y vehículos celulares. Batrakova 2007 estudió entrega de catalasa mediante macrófagos, no un ensayo clínico de exosomas intranasales. En modelos de isquemia-reperfusión, neuroinflamación y heridas importan vehículo, exposición, tiempo y resultados tisulares; un porcentaje de reducción del infarto no se aplica a todas las formulaciones.
CeO₂, MnO₂ y Fe₃O₄ se investigan como materiales de actividad similar a enzimas. Difieren de la catalasa proteica: actividad, liberación de iones, distribución y posible efecto prooxidante dependen de superficie, pH y entorno. Resistencia a proteólisis no implica seguridad absoluta o cinética idéntica. Esta base no contiene un ensayo humano aleatorizado que permita prescribirlos para prolongar la vida, sustituir CAT o tratar el pie diabético.
Cómo interpretar la base de evidencia
Es una revisión narrativa del manuscrito y literatura proporcionados, con comprobación dirigida de afirmaciones estructurales, bibliográficas y mecanísticas controvertidas el 8 de octubre de 2026. No estaban disponibles las notas guardadas del editor anterior; se utilizaron las correcciones confirmadas transmitidas al retomar el trabajo. No hubo búsqueda sistemática, evaluación formal GRADE ni revisión externa. No se garantiza la cobertura de publicaciones recientes; las cifras precisas sin apoyo suficiente no se trasladaron del original.
La catalasa protege gracias a química del hemo, acceso al peróxido y localización adecuada. Ahorra equivalentes reductores en el ciclo principal, pero funciona con GPx y Prx en una red y no tiene capacidad autónoma infinita. Modelos genéticos y administración de enzimas permiten estudiar compartimentos; las decisiones clínicas exigen además evidencia humana de exposición, eficacia y efectos adversos.
Preguntas frecuentes
¿Por qué la reacción principal no consume glutatión?
Una segunda molécula de H₂O₂ reduce el Compuesto I. Dos peróxidos producen dos aguas y O₂ sin GSH obligatorio por recambio.
¿Siempre se importa catalasa como tetrámero?
No. Hay datos de unión PEX5 a monómeros y de importación de tetrámeros; depende de las condiciones.
¿rs1001179 permite elegir un suplemento?
Estos datos no respaldan ese uso. Los efectos funcionales y asociaciones dependen del sistema y la población.
¿mCAT demuestra prolongación de vida humana?
No. Es una intervención genética en ratones. Se necesitan datos humanos separados de administración, eficacia y efectos adversos.