Katalaza, peroksisomalar va H₂O₂ kinetikasi — NutriFit
Katalaza va peroksisomalar: H₂O₂ kinetikasi va hujayra himoyasi
Katalazaning gem markazi, NADPH bilan bog‘lanishi, peroksisomal importi va vodorod peroksid kinetikasi. CAT, GPx va Prxning o‘zaro aloqasi, akatalazemiya, mCAT sichqonlari hamda ferment yetkazish dalillarining chegaralari.
Katalaza noodatiy oksidlanish-qaytarilish vazifasini bajaradi: ikkita vodorod peroksid molekulasidan suv va kislorod hosil qiladi, bunda glutation yoki tioredoksin stexiometrik miqdorda sarflanmaydi. Ammo tozalangan fermentning tezligi hujayrani himoya qilish darajasini o‘zi belgilamaydi. H₂O₂ qayerda hosil bo‘lishi, substratning fermentga yetib borishi, katalazaning taqsimlanishi va boshqa peroksidazalarning holati ham muhim. Reaksiya kimyosini hujayra bo‘linmalari bilan birga ko‘rib chiqish peroksisomalar vazifasini ham, katalazasi mitoxondriyaga yo‘naltirilgan sichqonlarda olingan natijalarni ham tushuntiradi.
Vodorod peroksid: signal, oqim va shikastlanish
H₂O₂ kislorodning reaktiv shakli, lekin erkin radikal emas. U oksidaza reaksiyalarida bevosita, shuningdek, superoksiddismutazalar katalizlaydigan superoksid dismutatsiyasida hosil bo‘ladi. Neytral molekula hujayra bo‘linmalari orasida o‘tadi; ayrim akvaporinlar membrana orqali tashishni yengillashtiradi. Uning yashash muddati va konsentratsiyasi mahalliy manbalar hamda yo‘qotish tizimlariga bog‘liq, shuning uchun barcha hujayralar uchun yagona yarim parchalanish davri yo‘q.
2O2∙−+2H+SODH2O2+O2.
Sezgir sisteinlarning qaytar oksidlanishi fosfatazalar, kinazalar va transkripsiyani boshqaradi. Ko‘pincha signalni peroksiredoksinlarning redoks uzatish tizimi yetkazadi; H₂O₂ har bir nishon oqsil bilan bevosita to‘qnashishi shart emas. Eustress va distress fiziologik natijalarni ifodalaydi, «1–10 nM» va «100 nM dan yuqori» kabi universal oraliqlarni emas. O‘lchangan qiymatni talqin qilish uchun sensor, kalibrlash, hujayra bo‘linmasi va ta’sir davomiyligini bilish kerak.
Harakatchan temir mavjud bo‘lsa, H₂O₂ Fenton reaksiyasi orqali juda reaktiv mahsulotlar hosil qilishi mumkin:
Fe2++H2O2→Fe3++HO∙+OH−.
Shikastlanish metallning mavjudligi va lipidlar, oqsillar yoki DNKga yaqinligiga ham bog‘liq. Peroksinitrit asosan NO bilan superoksid reaksiyasidan hosil bo‘ladi; uni bevosita NO–H₂O₂ reaksiyasiga bog‘lash noto‘g‘ri. Bu farq molekulyar vodorodning taklif etilgan selektiv ta’sirlarini baholashda muhim: kislorodning turli reaktiv shakllari bir-birini almashtiradigan substratlar emas.
Odam katalazasining tuzilishi
Tetramer, domenlar va strukturaviy model
Odam katalazasi, EC 1.11.1.6, odatda D₂ simmetriyali, massasi taxminan 240 kDa bo‘lgan gomotetramer hosil qiladi. Kanonik ketma-ketlik 527 aminokislotadan iborat. N-uchdagi qism subbirliklar orasidagi kontaktlarda qatnashadi, markaziy β-bochka asosiy buklanishni hosil qiladi, o‘rab turuvchi qism gem atrofini mustahkamlaydi, C-uchdagi spiral domen esa sirt tuzilishi va nukleotid bog‘lanishiga hissa qo‘shadi. Bu domenlar tuzilish qismlaridir, alohida mustaqil fermentlar emas.
Putnam va hamkasblari faol hamda ingibitor bog‘langan strukturalarni o‘rgangan. PDB bazasidagi 1DGB strukturasining aniqligi 2,20 Å; maqolada boshqa 1,5 Å struktura tilga olinishi 1DGBga shu aniqlikni bermaydi. Kristall modelida qayd etilgan zanjir uzunligi va ko‘rinadigan qoldiqlar soni ham to‘liq ketma-ketlikdan farq qilishi mumkin. Koordinatalarda ko‘rinmagan qism tirik oqsilda mavjud emas degani emas.
Gem cho‘ntagi va substratni tanlash
Har bir funksional subbirlikda temir tutuvchi protoporfirin IX — gem b mavjud. Tinch holatda temir asosan Fe(III) shaklida bo‘ladi. Arg353 qatnashadigan muhit bilan barqarorlashgan proksimal Tyr357 ligandi katalazani gistidin ligandli ko‘plab gem oqsillaridan ajratib turadi. Distal tomonda His74 kislota-asos katalizida qatnashadi, Asn147 esa peroksid va vodorod bog‘larini yo‘naltirishga yordam beradi.
Gem oqsil ichida chuqur joylashgan. Taxminan 25–30 Å uzunlikdagi kanal va undagi tartibli suv molekulalari substrat kirishi hamda tanilishini cheklaydi. Bu faqat diametr bo‘yicha saralash emas: teshikni kengaytiradigan mutatsiya katalitik samaradorlikni pasaytirishi mumkin. Katalaza asosan H₂O₂ va ayrim kichik donorlar bilan ishlaydi; u membranalardagi fosfolipid gidroperoksidlarini qaytarishda GPx4 o‘rnini bosa olmaydi.
Bog‘langan NADPH va himoya yo‘llari
Kirkman va Gaetanining klassik ishlari sutemizuvchilar katalazasi NADPHni mustahkam bog‘lashini, har bir subbirlikka bittagacha molekula to‘g‘ri kelishini ko‘rsatgan. Bog‘lanish cho‘ntagi asosiy gem markazidan tashqarida, taxminan ikki nanometr uzoqlikda joylashadi. Bog‘langan nukleotid odatiy degidrogenazalardagidan farqli buklangan shaklni oladi.
NADPH har bir katalatik aylanishda majburiy donor emas. Uning himoya vazifasi kam faol II birikma va boshqa yon holatlar to‘planishini kamaytirish bilan bog‘liq. Tajribaviy kinetika allaqachon hosil bo‘lgan II birikmaning majburiy bevosita qaytarilishidan murakkabroq yo‘llarni ham ko‘rsatadi. Demak, «NADPH elektron beradi, G6PD esa NADP radikalini qayta tiklaydi» degan tasvir universal isbotlangan sikl emas: G6PD pentozofosfat yo‘lida NADP⁺ni qaytaradi. Asosiy reaksiyada NADPHning stexiometrik sarflanmasligi hujayraning redoks holatidan to‘liq mustaqillikni anglatmaydi.
Peroksisomaga yo‘naltirish va oksidazalarga yaqinlik
PTS1, PEX5 va import qilinadigan oqsil holati
Peroksisomalar bitta membranaga ega va o‘z genomiga ega emas. Matriks oqsillari sitozol ribosomalarida sintezlanadi; membrana oqsillarining yetkazilish yo‘llari boshqacha, ularni avtomatik ravishda shu yo‘lga kiritib bo‘lmaydi. Kanonik C-uch PTS1 signali SKLdir. Odam katalazasining kuchsizroq signali terminal KANL ketma-ketligini o‘z ichiga oladi. Uni PEX5 taniydi, ammo signalning ochiqligi, oqsilning boshqa qismlari va retseptor holati ham importga ta’sir qiladi. PTS2 PEX7 hamda tegishli yordamchi retseptorlardan foydalanadi.
PEX5 PEX14/PEX13 birikish tizimi bilan o‘zaro ta’sirlashadi. Yuk yetkazilgach, retseptorning monoubikvitinlanishi uni PEX1/PEX6 AAA-ATPazalari yordamida chiqarish va sitozolga qaytarish bilan bog‘lanadi; apparatda PEX2/PEX10/PEX12 va membrana tayanchlari ham qatnashadi. Buklangan oqsillar va ayrim oligomerlarni import qilish imkoniyati katalaza har doim tayyor tetramer sifatida kirishini isbotlamaydi. Freitas va hamkasblari PEX5 monomer katalazaga bog‘lanishini, tetramerlanishni to‘xtatishini va PEX14 bilan o‘zaro ta’sirdan so‘ng yukni bo‘shatishini ko‘rsatgan. Boshqa tizimlarda tetramer importi kuzatiladi; yo‘l tajriba sharoitiga bog‘liq. Achitqi PEX17 oqsilini odamdagi birikish tizimining majburiy qismi deb ko‘rsatish ham noto‘g‘ri.
PEX nuqsonlari peroksisoma biogenezi kasalliklari, jumladan Zellweger sindromi spektrini keltirib chiqaradi. Katalazaning noto‘g‘ri joylashishi belgilardan biridir, ammo kasallik og‘irligi faqat «katalaza to‘sig‘i» yo‘qolishini emas, ko‘plab lipid almashinuvi buzilishlarini aks ettiradi.
ACOX1, juda uzun zanjirli yog‘ kislotalari va mahsulotlar almashinuvi
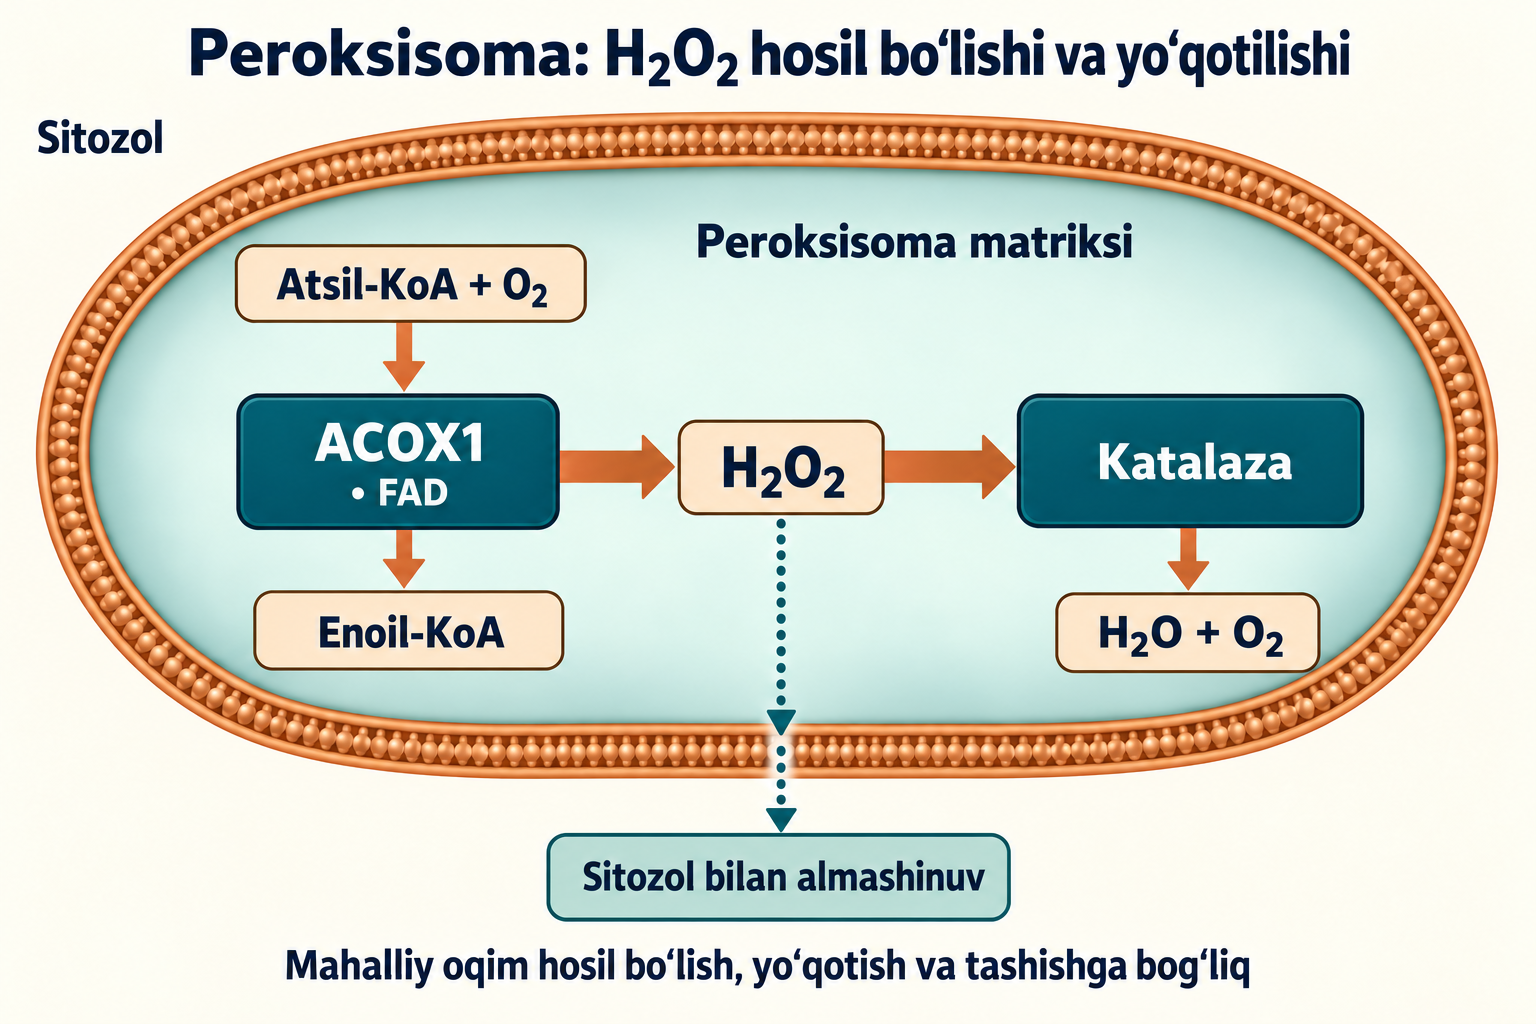
Peroksisomal β-oksidlanish juda uzun zanjirli yog‘ kislotalari, jumladan C₂₄–C₂₆ turlari uchun ayniqsa muhim. ABCD oqsillari substrat yetkazilishida qatnashadi; ABCD1 X-xromosomaga bog‘liq adrenoleykodistrofiya bilan aloqador. ACOX1 tarkibida FAD bor va u elektronlarni kislorodga o‘tkazib H₂O₂ hosil qiladi. Bu ETF hamda nafas zanjiriga ulangan mitoxondrial atsil-KoA degidrogenazalaridan farq qiladi.
Acyl−CoA+O2ACOX1/FADtrans−2−Enoyl−CoA+H2O2.
Bitta H₂O₂ molekulasi bitta oksidaza bosqichiga to‘g‘ri keladi, bitta yog‘ kislotasining to‘liq parchalanishiga emas. Keyingi gidratatsiya, NAD⁺ga bog‘liq oksidlanish va tioliz zanjirni qisqartiradi; mahsulotlar mitoxondriyada almashinuvni davom ettirishi mumkin. Tarmoqlangan yog‘ kislotalari qo‘shimcha yo‘llarni talab qiladi: fitan kislotasi avval α-oksidlanadi, PHYH esa Fe(II)/2-oksoglutaratga bog‘liq gidroksilaza bo‘lib, oddiy H₂O₂ hosil qiluvchi flavin oksidaza emas. D-aminokislota oksidazasi H₂O₂ hosil qilishi mumkin, odamlarda esa faol urat oksidazasi yo‘q.
Katalaza mahalliy peroksid yukini kamaytiradi, biroq membrana H₂O₂ni to‘liq ajratib qo‘ymaydi. Import, oksidazalar miqdori va tashishdagi o‘zgarishlar sitozol signallariga hamda mitoxondriyalar bilan aloqaga ta’sir qiladi. Kemiruvchi tajribasidan odam jigaridagi kislorod iste’moli yoki katalaza miqdori uchun universal foizlar chiqarib bo‘lmaydi. Oqim balansi aniqroq tasvir beradi:
Bu sifat modeli; miqdoriy qo‘llash uchun barcha oqimlar bir xil hajmga tegishli bo‘lishi va mos birliklarda ifodalanishi kerak.
I birikmadan o‘tadigan ikki yo‘l
Katalatik sikl va yon holatlar
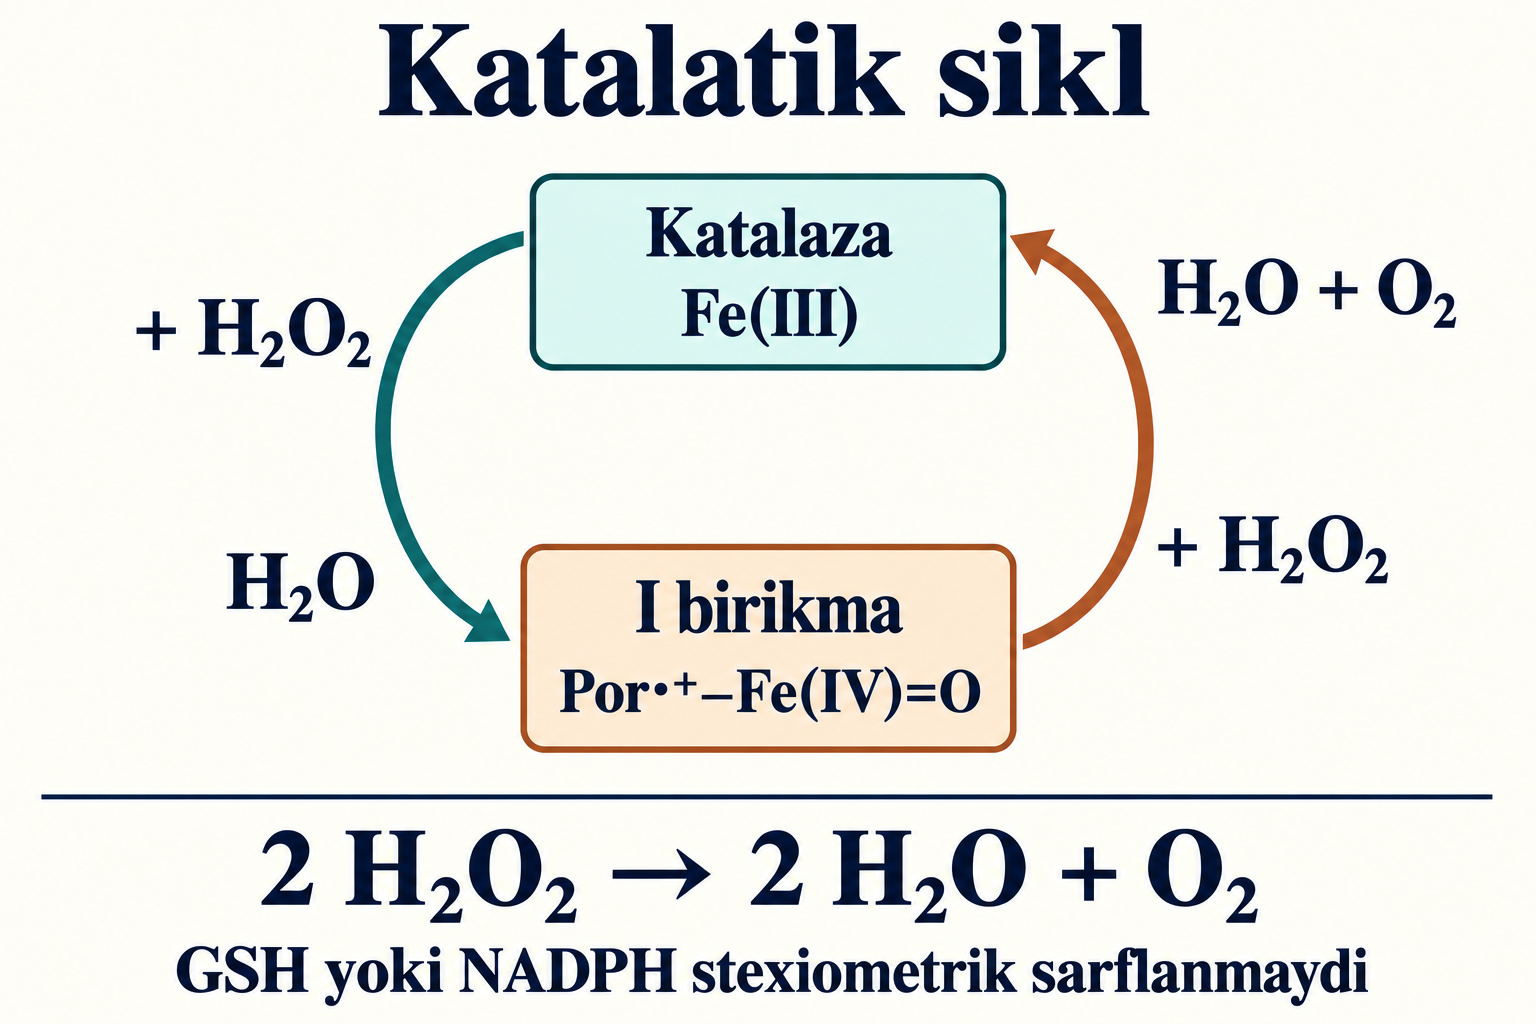
Birinchi H₂O₂ molekulasi gem markazini ikki oksidlanish ekvivalentiga o‘zgartirib, ferril Fe(IV)=O va porfirin kation radikalini hosil qiladi; ular birgalikda I birikma deb ataladi. Distal muhit O–O bog‘ining geterolitik uzilishi va proton ko‘chishini yengillashtiradi. Ikkinchi H₂O₂ molekulasi I birikmani tinch Fe(III) holatiga qaytaradi, o‘zi esa O₂ga aylanadi. Shunday qilib, bir substrat ham oksidlovchi, ham qaytaruvchi bo‘lib xizmat qiladi. Yakuniy ikki elektronli balans elektron jufti bir vaqtda ko‘chishini isbotlamaydi: Alfonso-Prieto va hamkasblarining Helicobacter pylori hamda Penicillium vitale katalazalari uchun QM/MM modellari II birikmaga o‘xshash holat orqali ketma-ket bir elektronli ko‘chishlarni, His ishtirokini yoki vodorod atomining bevosita ko‘chishini taklif qilgan. Bular muayyan ferment modellari, odam CAT oqsilidagi atom yo‘lining bevosita kuzatuvi emas.
I birikmaning bir elektronli qaytarilishi porfirin radikalisiz ferril holat — II birikmani hosil qilishi mumkin; u odatiy siklni shunday samarali davom ettirmaydi. III birikma kislorod bog‘langan boshqa holatdir; uning hosil bo‘lishi gem darhol va majburiy ravishda qaytmas parchalanishini anglatmaydi. To‘planish, oqsil shikastlanishi va tiklanish substrat, donorlar, NADPH va ta’sir muddatiga bog‘liq. Oraliq mahsulot nomi qaytmaslikning qat’iy o‘lchovi emas.
«Juda yuqori tezlik» nimani o‘lchaydi?
Bimolekulyar bosqich konstantalarining birligi M⁻¹·s⁻¹, aylanish sonining birligi esa s⁻¹dir. Sonlar o‘xshashligi ularni o‘zaro almashtirishga asos bo‘lmaydi. Bir daqiqada 40–50 million molekula soni bir soniyada taxminan 0,67–0,83 millionga teng; bunda faol markaz yoki tetramerga nisbatan normallashtirish bir xil qolishi kerak. Boshqa tajribaviy asos bo‘lmasa, bu kcat>107s−1ni isbotlamaydi.
Ideallashtirilgan ikki bosqichli sikl, o‘zgarmas substrat konsentratsiyasi va yon yo‘llar bo‘lmaganda H₂O₂ yo‘qolishini quyidagicha yozish mumkin:
vH2O2=k1+k22k1k2[E]active[H2O2].
Ikki koeffitsiyenti bir siklda ikkita peroksid molekulasi sarflanishini ifodalaydi; O₂ ajralish tezligi ikki baravar kichik. Model amal qiladigan sohada substratga chiziqli bog‘liqlik beradi, past konsentratsiyalarda universal kvadratik bog‘liqlikni emas. Uning chegaralari oraliq holatlarning statsionar taqsimlanishi, substrat mavjudligi va inaktivatsiya yo‘qligini o‘z ichiga oladi.
Ko‘rinma Km modelga bog‘liq. Abe va hamkasblari tozalangan qoramol jigari katalazasi uchun pH 7,0 da, 2 °C dagi o‘lchovlarda taxminan 0,025 M qiymat olgan. Bu preparat va usulni tavsiflaydi, odam katalazasi «ishga tushadigan» konsentratsiyani emas. Yuqori peroksid kinetik og‘ishlar, yon oraliq holatlar va inaktivatsiya keltirib chiqarishi mumkin; «1 M gacha to‘yinmasdan cheksiz imkoniyat» degan da’vo haddan tashqari kuchli.
Peroksidatik yo‘l: spirtlar va toksikologiya
I birikma ikkinchi H₂O₂ molekulasi o‘rniga mos kichik donorni oksidlashi mumkin. Birlamchi spirt uchun yakuniy reaksiya:
R−CH2OH+H2O2→R−CHO+2H2O.
Nisbiy oqimlar raqobatlashuvchi reaksiyalar tezligi va ikkala substrat konsentratsiyasiga bog‘liq; 1 µM da qat’iy almashish yo‘q. Etanol atsetaldegid, metanol formaldegid hosil qiladi. Ferment tizimlarida formiat yoki nitrit oksidlanishi ham ularning har bir to‘qimadagi fiziologik hissasini isbotlamaydi.
Odam jigarida etanol almashinuvining asosiy yo‘llari alkogoldegidrogenaza va sharoitga qarab CYP2E1 bo‘lib qoladi; bu dalillar katalazaning doimiy 10–20% hissasini tasdiqlamaydi. Kemiruvchi miyasi va 3-amino-1,2,4-triazol tajribalari katalaza mahalliy atsetaldegid hosil bo‘lishida hamda ayrim xulqiy ta’sirlarda qatnashishini ko‘rsatadi, lekin odam uchun universal «60–70%»ni o‘lchamaydi. Zaharli spirtni oksidlash har doim zararsizlantirish emas: formaldegid va formiatning o‘zi ham zaharli, tur farqlari esa metanolda ayniqsa muhim.
CAT, GPx va Prx: uch chegara emas, o‘zaro bog‘liq tizim
Oxirgi formula tioredoksinga bog‘liq tizimning yakuniy balansidir, H₂O₂ning tioredoksin bilan bevosita reaksiyasi emas. Prx6 va ayrim boshqa holatlar boshqa donor tizimlaridan foydalanadi. GSSGni odatiy tiklash uchun NADPH kerak; bu hovuzni saqlashning metabolik xarajati, har bir peroksidaza bosqichida ATP sarfi emas.
Prxning H₂O₂ bilan tez reaksiyasi to‘liq aylanishning sekinroq bo‘lishiga zid emas, chunki qayta tiklanish siklni cheklashi mumkin. Ayrim 2-Cys Prxning sulfin shakllargacha giperoksidlanishi peroksidni tutish va signal berishni vaqtincha o‘zgartiradi; sulfiredoksin muayyan shakllarni ATPga bog‘liq reaksiyada tiklay oladi. «Shlyuz» modeli ayrim sharoitlarda foydali, lekin barcha Prx uchun universal chegara emas. Har bir yo‘qotish tizimining hissasi miqdor, joylashuv va qayta tiklanishga bog‘liq. CAT o‘z bo‘linmasida past oqimlarga ham ta’sir qilishi mumkin; GPx4ni o‘rta «H₂O₂ pog‘onasi»ga qo‘yish uning lipid substratlarini e’tiborsiz qoldiradi.
CAT genetikasi, akatalazemiya va keng tarqalgan promotor varianti
Odam CAT geni 11p13 da joylashgan va 13 ekzondan iborat. GCga boy promotor bir nechta transkripsion boshqaruvchilar bilan o‘zaro ta’sirlashadi; oqsil miqdori, gem bilan ta’minlanishi va taqsimlanishi birgalikda faollikni belgilaydi. WAGR hududi deletsiyalarida CATning qatnashishi har bir deletsiya chegarasiga bog‘liq; barcha holatlarda qat’iy 50% pasayish shart emas.
Akatalazemiya patogen CAT variantlari keltirib chiqaradigan kam uchraydigan, odatda autosom-retsessiv holatdir. Takaharaning tarixiy kuzatuvlari peroksid ta’siridagi qondan kislorodning kam ajralishini og‘izdagi nekrotik jarohatlar bilan bog‘lagan. Gemoglobin oksidlanishi va bakteriyalarning H₂O₂ ishlab chiqarishi mahalliy shikastlanishga hissa qo‘shishi mumkin. Ammo kuchli yetishmovchiligi bor ko‘plab odamlarda bunday jarohatlar yo‘q: gigiyena, infeksiya yuki va boshqa himoya yo‘llari fenotipni o‘zgartiradi.
Turli populyatsiyalarda splaysing nuqsonlari, o‘qish ramkasi siljishlari va oqsil barqarorligi o‘zgarishlari tasvirlangan. Talqin qilish uchun aniq variant va transkript kerak; geografik nom molekulyar tashxis emas. Katalaza yetishmovchiligida diabet haqidagi kuzatuvlar qiziqarli, biroq kichik, tanlab olingan guruhlar universal «4,5–5,2 baravar» xavf yoki β-hujayra o‘limining yagona mexanizmini isbotlamaydi. Eritrotsit faolligini o‘lchashda usul, gemoglobin yoki oqsilga normallashtirish va namuna sharoiti hisobga olinadi; bu «qarish tezligi»ning mustaqil testi emas.
−262C>T polimorfizmi, rs1001179, akatalazemiyaning kam uchraydigan sabablaridan farq qiladi. Forsberg faktor bog‘lanishi, reporter transkripsiyasi va qondagi katalaza darajasini o‘rgangan, isbotlangan gipertenziyani emas. T varianti HepG2 va K562da reporter transkripsiyasini taxminan 1,5 baravar oshirgan; 29 donor orasida T tashuvchilarda eritrotsit katalazasi CC donorlaridagidan yuqori bo‘lgan (p < 0,03). Yo‘nalish va miqdorni barcha to‘qima yoki kasallikka avtomatik ko‘chirib bo‘lmaydi. Vitiligo, o‘smalar va gipertenziya bilan bog‘liqliklar populyatsiya hamda tadqiqot tuzilishiga bog‘liq; genotip «katalaza faollashtiruvchilari»ni buyurishga asos bermaydi va har bir natijaning sababiy yo‘lini isbotlamaydi.
mCAT: joylashuvni o‘zgartirish nimani ko‘rsatdi?
2005-yilda Schriner va hamkasblari odam katalazasi peroksisomalar, yadro yoki mitoxondriyalarga yo‘naltirilgan transgen sichqonlarni taqqoslagan. Mitoxondriyaga yo‘naltirish umr davomiyligini eng sezilarli oshirgan; maqolada median va maksimal umr taxminan besh oyga uzaygani qayd etilgan. Bu genetik o‘zgartirilgan hayvon tajribasi, qo‘shimcha mahsulot sinovi emas. U shu modelda aralashuvning sababiy rolini va joylashuv ahamiyatini ko‘rsatadi, lekin barcha reaktiv kislorod shakllarini qarishning yagona sababi qilmaydi.
Dai va hamkasblari mCAT sichqonlarida yoshga bog‘liq yurak gipertrofiyasi va fibrozning kamayishi, diastolik funksiyaning saqlanishi hamda ayrim mitoxondrial shikastlanishlarning kamligini tasvirlagan. Bu dilatatsion kardiomiopatiya va barcha yurak yetishmovchiligini to‘liq oldini olish degan da’vodan aniqroq. Oksidlovchi stress mitoxondrial o‘tkazuvchanlikning o‘tish porasi — mPTPga ta’sir qilishi mumkin, ammo himoyalangan fenotipning o‘zi siklofilin Dning majburiy bevosita oksidlanishini isbotlamaydi. mtDNK, katarakta, mushak yoki insulin sezgirligidagi o‘zgarishlar muayyan model va yakuniy ko‘rsatkichlarga tegishli; ularni alohida dalilsiz bitta sonli ta’sirga birlashtirib bo‘lmaydi.
Dalil darajasi
Tasdiqlanadigan xulosa
Nimani ko‘rsatmaydi?
Tozalangan ferment
Belgilangan sharoitdagi mexanizm, kinetika va ingibitsiya
Hujayradagi taqsimlanish yoki klinik foyda
Hujayraviy import tizimlari
CAT–PEX5 aloqasi va yig‘ilish holatiga bog‘liqlik
Barcha to‘qimalarda yagona yo‘l
mCAT sichqonlari
Genetik yo‘naltirishning umr va ayrim fenotiplarga ta’siri
Og‘iz orqali katalaza bilan odam umrini uzaytirish
Akatalazemiya va rs1001179
Genetik mexanizmlar va cheklangan bog‘liqliklar
Universal xavflar yoki profilaktik davolash protokollari
Boshqarish, ingibitorlar va fermentni yetkazish
FoxO faktorlar stressdan himoyani Akt signallari, energiya holati va oqsil modifikatsiyalari bilan bog‘laydi; SIRT1 FoxOning transkripsion javobini o‘zgartirishi mumkin. Nrf2/Keap1 hujayrani himoya qiluvchi tizimni muvofiqlashtiradi, ammo rag‘batlantirishdan so‘ng CAT faolligi o‘zgarishi har bir to‘qimada Nrf2 promotorga bevosita bog‘lanishini isbotlamaydi. PPARα lipid almashinuvi va peroksisomal fermentlarni boshqaradi; oksidazalar hamda yo‘qotish tizimi induksiyasi farq qilishi mumkin, shuning uchun kuchliroq β-oksidlanish katalaza mutanosib oshishini kafolatlamaydi.
Resveratrol, sulforafan, EGCG, kversetin va omega-3 yog‘ kislotalari hujayra hamda hayvonlarda o‘rganilgan. Bu ishlar katalaza yetishmovchiligi yoki odam qarishi uchun isbotlangan davolash rejimini bermaydi. Hatto qondagi faollik oshishi ham to‘qimaga yo‘naltirish va klinik foyda ko‘rsatilmasa, o‘rinbosar ko‘rsatkich bo‘lib qoladi. Resveratrol, SIRT1 va biologik o‘zlashtirilish tafsilotlari ayniqsa muhim: laboratoriya ta’siri erishish mumkin bo‘lgan ekspozitsiyada ferment bevosita faollashishini kafolatlamaydi.
Temir va gem sintezi faol gemoprotein uchun zarur; bu yo‘lda ALAS hamda ferroxelataza qatnashadi. Bu tasdiqlangan yetishmovchilik bo‘lmasa ham qo‘shimcha temir kerakligini anglatmaydi. Harakatchan temir ortishi Fenton kimyosini kuchaytiradi. Selen ayrim GPx fermentlari uchun kerak, CATning prostetik guruhi emas. Bitta antioksidant o‘lchovi butun tizimni tavsiflamaydi.
3-amino-1,2,4-triazol katalazaning peroksid sikliga bog‘liq, mexanizmga tayangan ingibitori sifatida ishlatiladi; strukturaviy ma’lumotlar faol hududdagi o‘zaro ta’sirni ko‘rsatadi. Azid va sianid gem markazlariga bog‘lanadi va boshqa fermentlarga ham ta’sir qiladi. Ularning ta’sirlari, ayniqsa tizimli yuborishdan keyingi xulq o‘zgarishlari, qo‘shimcha nazoratsiz CAT uchun mutlaq spetsifik dalil emas.
Katta oqsilni yetkazishda taqsimlanish, proteoliz, immun reaksiyalar va kerakli hujayra bo‘linmasiga kirish cheklov bo‘ladi. PEG bilan modifikatsiya, liposomalar, hujayradan tashqari vezikulalar va hujayraviy tashuvchilar o‘rganilmoqda. Batrakovaning 2007-yildagi ishi katalazani makrofaglar orqali yetkazishga bag‘ishlangan; u burun orqali ekzosomalar yuborishning klinik sinovi emas. Ishemiya–reperfuziya, neyroyallig‘lanish va yara modellarida tashuvchi, ekspozitsiya, vaqt va to‘qima ko‘rsatkichlari muhim; infarkt hajmi kamayishining bitta foizini barcha formulalarga ko‘chirib bo‘lmaydi.
CeO₂, MnO₂ va Fe₃O₄ fermentga o‘xshash faollikka ega materiallar sifatida o‘rganiladi. Ular oqsil katalazadan farq qiladi: faollik, ion ajralishi, taqsimlanish va mumkin bo‘lgan prooksidlovchi ta’sir sirt xususiyatlari, pH va muhitga bog‘liq. Proteolizga chidamlilik mutlaq xavfsizlik yoki bir xil kinetikani isbotlamaydi. Ushbu dalillar bazasida ularni umrni uzaytirish, CAT o‘rnini bosish yoki diabetik oyoqni davolash uchun buyurishni asoslaydigan odamdagi randomizatsiyalangan sinov yo‘q.
Dalillar bazasini qanday talqin qilish kerak?
Bu taqdim etilgan qo‘lyozma va uning adabiyotlari asosidagi narrativ sharh bo‘lib, 2026-yil 8-oktabrda bahsli strukturaviy, bibliografik va mexanistik da’volar maqsadli tekshirildi. Oldingi muharrirning saqlangan tadqiqot qaydlari ish paketida yo‘q edi; tiklashda topshirish orqali berilgan tasdiqlangan tuzatishlar ishlatildi. Tizimli qidiruv, rasmiy GRADE baholashi yoki tashqi taqriz bajarilmadi. Eng yangi nashrlarning to‘liq qamrovi kafolatlanmaydi; yetarli asossiz aniq qiymatlar ko‘chirilmadi.
Katalaza hujayrani gem kimyosi, peroksidning fermentga yetib borishi va to‘g‘ri joylashuv orqali himoya qiladi. U asosiy siklda qaytaruvchi ekvivalentlarni tejaydi, ammo cheksiz mustaqil quvvatga ega bo‘lish o‘rniga GPx va Prx bilan bir tizimda ishlaydi. Genetik modellar va ferment yetkazish muayyan bo‘linmalarni o‘rganishga imkon beradi; klinik qarorlar uchun esa qo‘shimcha ravishda odamdagi ekspozitsiya, samaradorlik va nojo‘ya ta’sir ma’lumotlari kerak.
Tez-tez beriladigan savollar
Katalaza NADPH yoki glutationni sarflaydimi?
Asosiy katalatik reaksiyada ikkinchi H₂O₂ molekulasi qaytaruvchi bo‘ladi, shuning uchun GSH yoki NADPH stexiometrik sarflanmaydi. Bog‘langan NADPH esa yon holatlardan himoyaga hissa qo‘shadi.
Katalaza faqat yuqori H₂O₂ konsentratsiyasida ishlaydimi?
Universal ishga tushish chegarasi yo‘q. Hissa mahalliy ferment miqdori, substrat yetkazilishi va GPx/Prx holatiga bog‘liq; tozalangan fermentning ko‘rinma Km qiymati hujayraviy chegara emas.
mCAT sichqonlari natijasi katalaza qo‘shimchasi umrni uzaytirishini isbotlaydimi?
Yo‘q. Bu katalazani genetik ravishda mitoxondriyaga yo‘naltirish tajribasi. Og‘iz orqali oqsil qabul qilish uning shu bo‘linmaga yetishini yoki odamda foyda berishini ko‘rsatmaydi.
rs1001179 katalaza yetishmovchiligi tashxisimi?
Bu keng tarqalgan promotor polimorfizmi, akatalazemiya sababchi patogen variantlar bilan bir xil emas. Natijalar to‘qima va tadqiqotga bog‘liq, genotipning o‘zi davolash tanlashga asos bo‘lmaydi.