Дендритные клетки и TLR: как распознавание превращается в иммунный ответ
Дендритные клетки: TLR, процессинг MHC-I/MHC-II, кросс-презентация, метаболизм и толерантность. Результаты ZOE-50, IMPACT и отрицательного ACCESS.
Антиген и контекст — разные сообщения
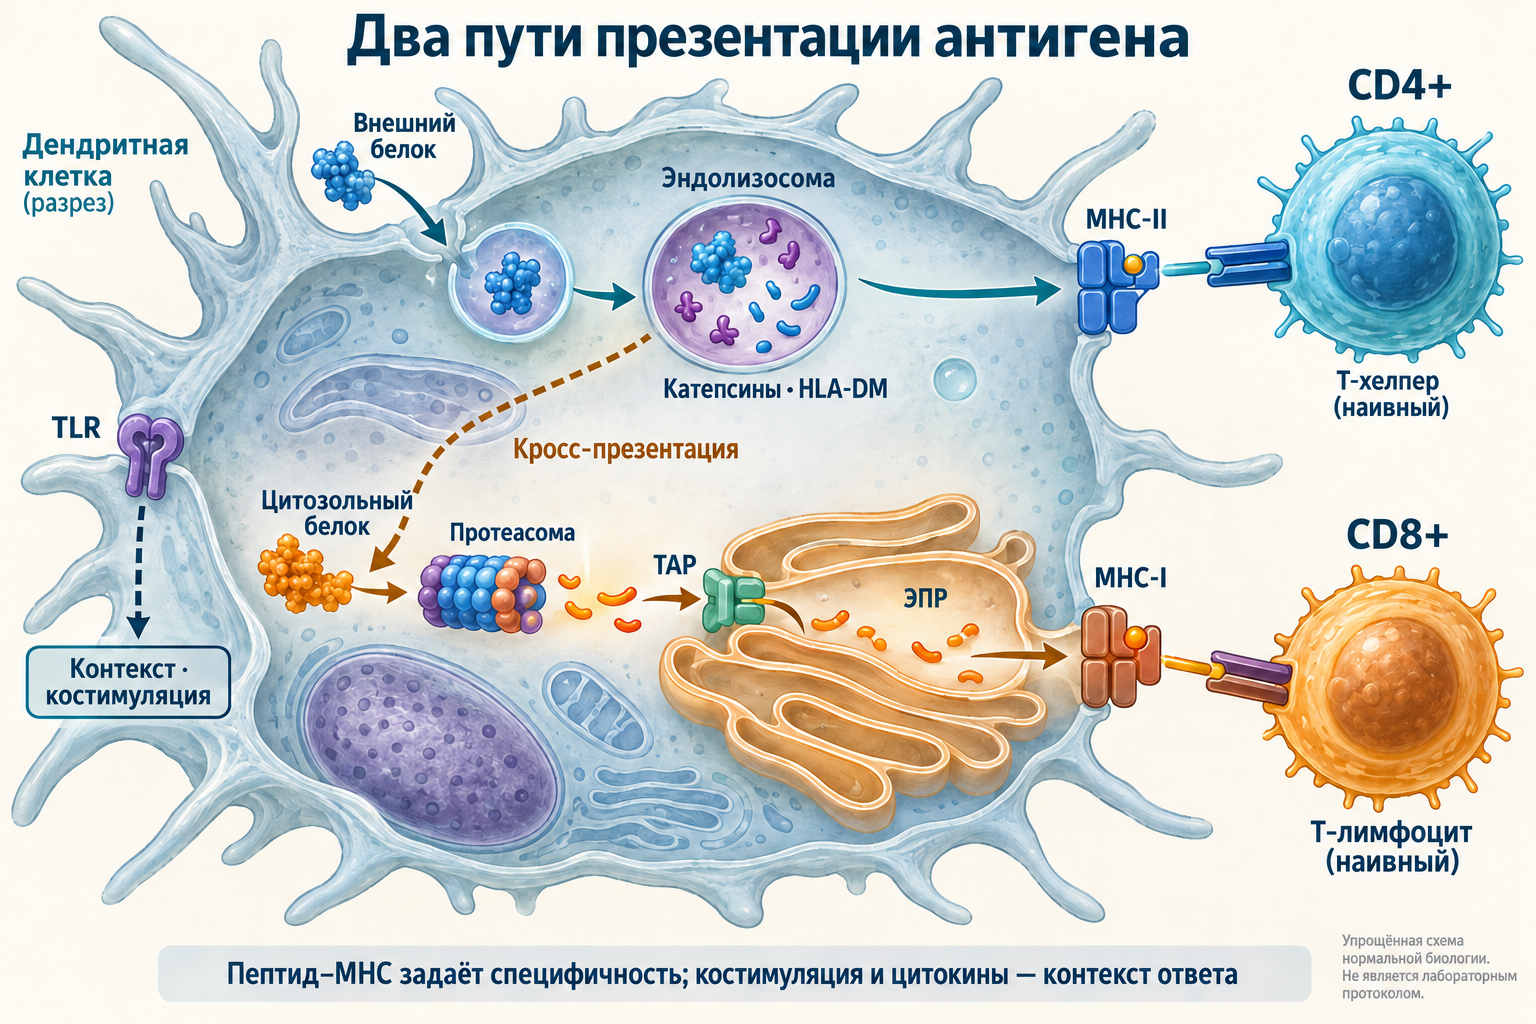
Дендритная клетка решает две связанные, но не тождественные задачи: показывает T-лимфоциту фрагмент белка и сообщает, в какой ситуации этот белок встретился. Комплекс пептид–MHC задаёт антигенную специфичность, тогда как костимуляция, цитокины и тканевое окружение влияют на активацию, дифференцировку или толерантность. Toll-подобные рецепторы, TLR, участвуют во второй задаче. Они не заменяют рецептор T-клетки и не являются единственным источником сигналов для дендритной клетки.
Это разделение объясняет, почему один белок может вызвать защитный ответ в составе вакцины и переноситься без воспаления в составе пищи. Объясняет оно и ограничения терапии: усилить один сигнальный каскад недостаточно, чтобы гарантировать защиту, а уменьшить лабораторный маркер воспаления недостаточно, чтобы доказать клиническую пользу. Нормальная работа системы состоит в соразмерном ответе с последующим разрешением воспаления, а не в постоянном максимальном возбуждении клеток.
Происхождение клеток и пределы классификации
От предшественника к тканевой специализации
После описания дендритных клеток Стейнманом и Коном в 1973 году их стали рассматривать как специализированных инициаторов первичного T-клеточного ответа. Сегодня классификация опирается на происхождение, транскрипционную программу и функцию, а не только на ветвистую форму или экспрессию CD11c. Ни один одиночный маркер не позволяет безошибочно отличить все дендритные клетки от моноцитов, макрофагов и активированных клеток других типов.
FLT3 и его лиганд FLT3L поддерживают развитие конвенциональных дендритных клеток. Рецепторная тирозинкиназа связывает ростовой сигнал с фосфорилированием белков и программами выживания и дифференцировки. Однако распространённая схема «общий миелоидный предшественник → общий предшественник DC → все зрелые DC» является полезной моделью, а не универсальным маршрутом каждой клетки. Исследования клонального происхождения и одноклеточной транскриптомики уточняют вклад различных предшественников; происхождение pDC особенно плохо описывается одной жёсткой лестницей.
cDC1, cDC2, pDC и моноцитарные клетки
cDC1 связаны с программами IRF8, BATF3 и ID2; у человека их характеризуют сочетания XCR1, CLEC9A и CD141. CLEC9A участвует в распознавании содержимого повреждённых клеток, а XCR1 — в клеточном взаимодействии и миграции. cDC1 особенно эффективны в кросс-презентации внешнего антигена через MHC-I и в запуске CD8+ ответа. Это специализация, а не исключительное право: другие антигенпрезентирующие клетки тоже могут осуществлять кросс-презентацию в определённых условиях.
cDC2 человека обычно определяют с использованием CD1c и дополнительных признаков, исключающих моноцитарное происхождение. IRF4 и другие регуляторы участвуют в их развитии и функции, но состав cDC2 неоднороден. Они важны для презентации через MHC-II и CD4+ ответа, включая различные хелперные программы. Нельзя отождествлять cDC2 только с Th2 или Th17: направление ответа зависит от ткани, антигена, цитокинов и состояния клетки.
pDC характеризуются программой TCF4, экспрессией CD123 и CD303 и высокой способностью секретировать интерфероны I типа после определённых стимулов. Для их сенсорной функции особенно важны эндосомальные TLR7 и TLR9 и фактор IRF7. Они могут презентировать антиген, но эта функция и интенсивность интерферонового ответа зависят от контекста. Универсальные утверждения о «в тысячу раз большей» продукции интерферона не описывают все популяции и состояния.
Моноцитарные DC возникают в воспалительном окружении и широко используются в исследованиях клеточной терапии. Их нельзя автоматически считать эквивалентом тканевых cDC1 или cDC2. Даже клеточные препараты с похожими поверхностными маркерами могут различаться происхождением, метаболизмом и миграцией; результаты на культивируемых моноцитарных клетках требуют отдельной проверки на первичных клетках человека.
Где TLR встречают свои лиганды
Архитектура и поверхностные рецепторы
TLR — однопроходные мембранные белки с лейцин-богатыми повторами в лиганд-связывающем домене и цитоплазматическим TIR-доменом. Связывание подходящего лиганда меняет геометрию рецепторного комплекса и сближает сигнальные домены. Сам TLR не является протеинкиназой: дальнейшую передачу сигнала обеспечивают адаптеры и ферменты, собирающиеся с цитоплазматической стороны мембраны.
На поверхности клетки TLR2 образует комплексы с TLR1 или TLR6 и участвует в распознавании различных липопептидов. TLR5 распознаёт флагеллин. TLR4 работает совместно с MD-2; LBP и CD14 помогают доставке липополисахарида к рецепторному комплексу. Структурные исследования показали, как размещение липидного лиганда в MD-2 способствует сборке активного комплекса. Эту физиологическую модель нельзя сводить к прямому связыванию любого воспалительного вещества с TLR4.
Эндосомы и нуклеиновые кислоты
TLR3 распознаёт двунитевую РНК, TLR7 и TLR8 — продукты переработки РНК, а TLR9 — определённые ДНК-мотивы. Их доставка в эндосомальные компартменты с участием UNC93B1, кислая среда и протеолитическая обработка рецепторов помогают пространственно ограничить ответ. Рецепторы могут реагировать и на собственные нуклеиновые кислоты, когда нарушаются их обычная локализация и очистка. Различение «своего» и «чужого» здесь не является безошибочным чтением одного химического признака.
Набор TLR различается между видами и клеточными популяциями. TLR7/9 особенно значимы для pDC человека, а TLR8 — для ряда человеческих миелоидных клеток; мышиные результаты нельзя механически переносить на человека. Для TLR10 описаны контекстные регуляторные эффекты, однако его физиологические лиганды и универсальная функция остаются менее определёнными, чем для хорошо изученных рецепторов. Уверенная строка «единственный ингибиторный TLR» скрывает эту неопределённость.
Повреждение ткани и качество доказательств
PAMP обозначает характерную микробную структуру, а DAMP — молекулярный сигнал повреждения. Для HMGB1 биологическое действие зависит от окислительного состояния, взаимодействующих белков и рецепторов; не всякая окисленная форма обладает одинаковой активностью. Для ряда предложенных эндогенных лигандов TLR необходимо учитывать примесь микробных компонентов, способ выделения и модель эксперимента. Поэтому Hsp70, гиалуронан, насыщенные жирные кислоты и кристаллы холестерина нельзя без оговорок перечислять как доказанные прямые агонисты одного рецептора.
Кристаллические частицы и изменения обмена могут вызывать воспаление через повреждение органелл и другие сенсорные системы. TLR-сигналинг способен обеспечить подготовку клетки к такому ответу, но подготовка и непосредственное распознавание повреждения — разные стадии. Это различие защищает от ошибочной логики «вещество связано с воспалением, значит оно непосредственно связывает TLR».
Сигнал от мембраны к ядру
MyD88, убиквитин и киназы
Большинство хорошо охарактеризованных TLR используют MyD88; TLR3 является важным исключением, а TLR4 использует два адаптерных маршрута. TIRAP помогает организовать MyD88-сигналинг от TLR2 и TLR4 у мембраны. Домены смерти MyD88, IRAK4 и IRAK1/2 образуют сигнальную сборку — миддосому. В кристаллографической модели комплекса доменов MyD88–IRAK4–IRAK2 описана стехиометрия 6:4:4; это результат структурного исследования определённого комплекса, а не фиксированный размер каждой сборки живой клетки.
IRAK4 и связанные киназы используют ATP и Mg²⁺ для переноса фосфатных групп на белки. TRAF6 совместно с убиквитин-конъюгирующей системой участвует в образовании сигнальных полиубиквитиновых цепей. K63-связанные цепи служат платформами сборки; это иной смысл убиквитинирования, чем K48-связанное направление белка на протеасомную деградацию. TAK1 и регуляторные TAB-белки связывают эту платформу с IKK и MAP-киназами.
Фосфорилирование IκB способствует его убиквитинированию и разрушению, после чего NF-κB получает доступ к ядру. MAP-киназы, включая p38 и JNK, участвуют в активации AP-1. Результат зависит от совместной работы транскрипционных факторов, доступности хроматина и обратной связи. IL-12p70 состоит из субъединиц p35 и p40; IL-23 использует p19 и ту же p40, поэтому измерение p40 не доказывает образование исключительно IL-12.
TRIF и интерфероновый ответ
TLR3 использует TRIF, а эндосомальный TLR4 подключает TRIF при участии TRAM. Этот маршрут связывает рецепторную активацию с TBK1 и IKKε, фосфорилированием IRF3 и индукцией IFN-β. TRIF также способен активировать воспалительные ветви, поэтому схема «MyD88 только воспаление, TRIF только защитный интерферон» чрезмерно упрощена. В pDC выраженная активация IRF7 и интерферонового ответа через TLR7/9 может происходить по MyD88-зависимому маршруту.
Секретированный интерферон I типа связывает IFNAR и через JAK1/TYK2 активирует STAT1, STAT2 и IRF9 — комплекс ISGF3. Он изменяет экспрессию интерферон-стимулированных генов в самой клетке и её соседях. Такой ответ полезен при инфекции, но длительная активация может участвовать в аутоиммунном повреждении. Значение сигнала определяется его временем, локализацией и длительностью, а не одним названием цитокина.
Как белок становится пептидом–MHC
MHC-II: эндолизосомальная обработка
Внешние белки попадают в дендритную клетку через рецепторный эндоцитоз, фагоцитоз или макропиноцитоз. Созревание эндосом сопровождается работой V-ATPase: гидролиз ATP поддерживает перенос протонов в просвет. От ранних эндосом с приблизительным pH 6–6,5 путь ведёт к более кислым поздним эндосомам и лизосомам, часто около pH 4,5–5,5. Эти значения ориентировочны и зависят от клетки и стадии созревания, а не являются универсальными настройками всех антигенных компартментов.
Катепсины S, L и B относятся к цистеиновым протеазам, катепсин D — к аспартильным; набор действующих ферментов зависит от типа клетки. GILT способствует восстановлению дисульфидных связей и доступности белка для обработки. Протеолиз должен создать подходящие эпитопы, а не обязательно полностью разрушить антиген. MHC-II имеет открытый пептид-связывающий желоб: в нём часто находятся пептиды порядка 13–25 аминокислот, но возможны более длинные последовательности.
В эндоплазматическом ретикулуме α- и β-цепи MHC-II собираются с инвариантной цепью CD74, которая защищает желоб и направляет комплекс в эндосомальный путь. После её протеолиза остаётся CLIP. HLA-DM катализирует обмен CLIP на антигенный пептид и редактирование репертуара в специализированном компартменте MIIC. HLA-DM — не протеаза и не ATP-зависимый насос: его действие связано с конформационными изменениями MHC-II. Загруженный комплекс переносится на поверхность для распознавания CD4+ T-клеткой.
MHC-I: цитозоль, TAP и эндоплазматический ретикулум
Обычный путь MHC-I показывает пептиды белков, синтезированных внутри клетки. Протеасома расщепляет белки посредством каталитических N-концевых треонинов β-субъединиц; ATP-зависимая регуляторная часть участвует в распознавании и разворачивании ряда субстратов. Интерфероны изменяют состав каталитических субъединиц с включением PSMB9/LMP2, PSMB10/MECL-1 и PSMB8/LMP7. Иммунопротеасома меняет набор образующихся пептидов, но не гарантирует нарезку каждого белка ровно на один заданный размер.
Гетеродимер TAP1/TAP2 переносит подходящие пептиды из цитозоля в просвет ЭПР с использованием ATP. ERAP1 и ERAP2 — цинк-зависимые аминопептидазы — могут укорачивать N-концевые остатки; их действие иногда создаёт эпитоп, а иногда уничтожает его избыточным расщеплением. Тяжёлая цепь MHC-I и β₂-микроглобулин взаимодействуют с загрузочным комплексом, включающим тапазин, калретикулин и ERp57. Последний участвует в тиол-дисульфидном контроле белковой сборки.
В желобе MHC-I часто представлены пептиды 8–10 аминокислот, но длина и допустимые якорные остатки зависят от HLA-аллеля. После отбора стабильного пептида комплекс проходит через аппарат Гольджи на поверхность и распознаётся CD8+ T-клеткой. Генетический полиморфизм HLA означает, что два человека могут показывать разный набор пептидов одного белка. Именно поэтому химическая идентичность антигена не гарантирует идентичность T-клеточного ответа.
Кросс-презентация и её нерешённые вопросы
Кросс-презентация означает загрузку внешнего антигена на MHC-I. В цитозольном варианте часть захваченного белка получает доступ к цитозолю, обрабатывается протеасомой, а пептиды используют TAP-зависимые этапы. В вакуолярных вариантах обработка и загрузка происходят в эндосомальном окружении и могут не требовать протеасомы или TAP. Отдельное явление, перенос уже готовых комплексов пептид–MHC между клетками, называют cross-dressing; оно не тождественно самостоятельной переработке антигена.
NOX2 использует NADPH для передачи электронов кислороду с образованием активных форм кислорода. В определённых моделях DC это ограничивает фагосомальное закисление и протеолиз, сохраняя антиген для кросс-презентации. Другие исследования выявили влияние на протеазы, не сводящееся к pH. Поэтому фагосому cDC1 нельзя описывать как обязательный резервуар с постоянным pH 7,2–7,5. Баланс окисления, подкисления и протеолиза изменяется во времени.
Роль Sec61 и точный механизм выхода белка из эндосомы в цитозоль обсуждаются; нельзя выдавать одну поровую модель за окончательно доказанный универсальный путь. Кросс-презентация также не равна кросс-праймингу: первая обозначает образование комплекса, второй — продуктивную активацию наивной CD8+ клетки. Без подходящего контекста презентация может вести к толерантности, а не к цитотоксическому ответу.
Созревание, миграция и встреча с T-клеткой
CCR7 и стабильность поверхностных комплексов
Созревание изменяет экспрессию костимуляторов, секрецию цитокинов, транспорт MHC и миграцию. Уменьшение активности MARCH1, убиквитинлигазы, участвующей в обороте MHC-II и CD86, способствует сохранению этих молекул на поверхности. Однако время жизни комплекса зависит от пептида, клетки и условий; утверждение «всегда больше 100 часов» слишком универсально. Захват антигена после созревания тоже не обязательно полностью выключается.
CCR7 помогает DC перемещаться по сигналам CCL19 и CCL21 к лимфатическим сосудам и T-клеточным зонам лимфатического узла. Цитоскелет и адгезия приспосабливаются к трёхмерной ткани, а не только к поверхности культуральной чашки. Миграция может происходить при поддержании толерантности без выраженного воспаления. Поэтому наличие CCR7 или «зрелого» маркера само по себе не устанавливает иммуногенный исход.
Три сигнала и динамический синапс
Первый сигнал — распознавание TCR комплекса пептид–MHC; CD4 или CD8 помогают организовать контакт. Второй связан с костимуляцией, в том числе CD28–CD80/CD86, третий — с цитокиновым окружением. CD40 на DC и CD40L на активированной хелперной клетке могут усиливать лицензирование CD8+ ответа. Тормозные взаимодействия, включая CTLA-4 и PD-1, ограничивают активацию, причём их действие не описывается одним универсальным отношением аффинностей.
LFA-1 и ICAM-1 поддерживают контакт, а перемещение актиновых структур и рецепторных микрокластеров меняет передачу сигнала. Классическая схема центрального и периферического SMAC полезна, но контакты с DC часто динамичны и не образуют идеальные концентрические кольца. Локальное исключение крупных фосфатаз и работа Lck/ZAP-70 создают условия для TCR-сигналинга. Более подробно связь этих сигналов с дифференцировкой разобрана в материале о программах Th1, Th2, Th17 и Treg.
Метаболическая цена активации и толерантность
ATP, восстановительные эквиваленты и видовые различия
В экспериментальных моделях ранняя активация DC повышает поток глюкозы через гликолиз; TBK1/IKKε и Akt связывают рецепторный сигнал с изменениями обмена и локализации гексокиназы. Реакция гексокиназы — глюкоза + ATP → глюкозо-6-фосфат + ADP — требует Mg²⁺. Пентозофосфатный путь образует NADPH, необходимый для восстановительных реакций и липидного синтеза. Выход цитрата из митохондрий и ATP-цитратлиаза обеспечивают цитозольный ацетил-CoA для синтеза мембран ЭПР и аппарата Гольджи.
Поздняя зависимость от гликолиза и угнетение дыхания оксидом азота убедительно показаны в некоторых мышиных воспалительных DC. iNOS использует аргинин, кислород и NADPH; её работа требует гема, тетрагидробиоптерина, FAD и FMN. NO влияет на митохондриальные ферменты, включая цитохром-c-оксидазу. Но NOS2-ответ у человеческих DC и разных первичных популяций неодинаков: модель «через 12 часов у всех клеток полностью выключается дыхание» неверна. Метаболические признаки нельзя использовать как самостоятельную классификацию иммуногенности.
Толерогенное состояние и кишечный барьер
Толерогенная DC — функциональное состояние, а не одна неизменная линия с обязательным отсутствием CD80/CD86. Представление собственных или пищевых антигенов без соответствующей костимуляции может поддерживать анергию, удаление реагирующих клонов или регуляторные программы. IL-10, TGF-β и ингибиторные взаимодействия участвуют в этом балансе; ни один из них не гарантирует полного подавления любого воспаления. Толерантность требует сохранения защиты от инфекции и потому не равнозначна общему выключению иммунитета.
IDO1 — гем-содержащая диоксигеназа, превращающая триптофан и кислород в N-формилкинуренин; далее образуется кинуренин. Изменения доступности аминокислоты и сигналы AhR могут влиять на T-клетки. Здесь нельзя объявлять одну концентрацию триптофана универсальным порогом остановки всех лимфоцитов или считать каждый эффект кинуренина прямой и неизбежной индукцией FOXP3. Результат зависит от метаболической среды и взаимодействующих клеток.
В кишечнике антигены поступают через M-клетки и другие пути переноса через эпителий; прямое взятие проб дендритными отростками зависит от анатомической области и модели. Ретинальдегиддегидрогеназы, включая ALDH1A2, окисляют ретиналь до ретиноевой кислоты с участием NAD⁺. Ретиноиды совместно с локальными сигналами поддерживают кишечный хоминг и некоторые регуляторные ответы. Эти клеточные процессы не доказывают, что большие дозы витамина A или D способны безопасно создавать толерогенные DC у человека.
Сенсоры работают совместно
TLR взаимодействуют с лектиновыми рецепторами и внутриклеточными системами распознавания. Dectin-1 и другие CLR способны передавать сигналы через Syk и CARD9-связанные комплексы. Для NLRP3 различают подготовку, включающую изменение экспрессии воспалительных компонентов, и последующую сборку с активацией каспазы-1. Эти стадии варьируют по клеткам; IL-18 не всегда требует такой же транскрипционной индукции, как IL-1β.
Отрицательная обратная связь включает A20/TNFAIP3, IRAK3 и DUSP-фосфатазы. Убиквитин-редактирование, ограничение киназ и изменения хроматина уменьшают ответ при длительной стимуляции. С возрастом меняются численность популяций, тканевые сигналы и функциональный резерв, но общий тезис «все DC стареют одинаково» не подтверждён. Кровь не является точной копией клеточного состава кишечника, кожи или опухоли.
Что показали клинические испытания
Адъювантная вакцина: ZOE-50
В двойном слепом плацебо-контролируемом исследовании ZOE-50 оценивали рекомбинантную вакцину против опоясывающего лишая у взрослых не моложе 50 лет. Анализ включал 15 411 участников; две внутримышечные дозы вводили с интервалом два месяца. Вакцина содержала 50 мкг гликопротеина E с системой AS01B, объединяющей MPL и QS-21 в липосомальной композиции. Первичной целью была профилактика подтверждённого опоясывающего лишая; среднее наблюдение составляло 3,2 года.
Заболевание развилось у 6 участников вакцинной группы и 210 получивших плацебо: эффективность составила 97,2%, 95% ДИ 93,7–99,0. Выраженные местные или системные реакции встречались чаще после вакцинации. Это доказательство пользы целой вакцины в изученной популяции, а не изолированного MPL или выборочной «реактивации cDC1». Результат не является прямым сравнением с живой вакциной. Данные о более старших группах и длительности защиты требуют собственных исследований, а не переноса одной цифры на все сроки.
Клеточная иммунотерапия: IMPACT
IMPACT — двойное слепое рандомизированное исследование III фазы у 512 мужчин с бессимптомным или малосимптомным метастатическим кастрационно-резистентным раком предстательной железы. В соотношении 2:1 назначали сипулейцел-T или контроль: 341 и 171 участник. Вводили три аутологичных клеточных инфузии внутривенно с интервалом две недели; первичной конечной точкой была общая выживаемость. Клеточный продукт содержит антигенпрезентирующие клетки и другие клетки, а не очищенную однородную популяцию cDC1; его дозу нельзя описывать одной массой белка.
При медиане наблюдения 34,1 месяца медиана общей выживаемости составила 25,8 против 21,7 месяца. Отношение рисков смерти было 0,78, 95% ДИ 0,61–0,98, p=0,03. Значимого улучшения времени до объективного прогрессирования не показано; характерны инфузионные реакции, включая озноб и лихорадку. Польза конкретного клеточного продукта в этой ситуации не доказывает эффективность любых «дендритноклеточных вакцин» при любых опухолях и не превращает увеличение антигенспецифических T-клеток в эквивалент продления жизни.
Блокада TLR4: отрицательный результат ACCESS
В ACCESS 1961 пациент с тяжёлым сепсисом получил эриторан или плацебо в рандомизированном двойном слепом исследовании: 1304 и 657 участников. Эриторан, антагонист MD-2–TLR4, вводили внутривенно шестидневным курсом, суммарно 105 мг, начиная в пределах 12 часов после первой органной дисфункции. Первичной конечной точкой была смертность от всех причин на 28-й день. Обе группы продолжали получать лечение сепсиса.
Смертность составила 28,1% против 26,9%; значимого преимущества не было. Молекулярно обоснованная блокада рецептора не превратилась в доказанное уменьшение смертности в этой популяции. Гетерогенность инфекции, сроки и сочетание воспаления с иммунной дисфункцией ограничивают перенос простой схемы сигнала на клиническое течение. Отрицательный результат нельзя скрывать за обещанием «точечного подавления цитокинового каскада».
Экспериментальные клеточные подходы и нутрицевтики
Ранние исследования персонализированных и толерогенных клеточных препаратов могут оценивать переносимость, миграцию и антигенспецифические ответы. Небольшая когорта без подходящего контроля не устанавливает прирост выживаемости и не подтверждает универсальную ремиссию аутоиммунитета. Различия антигенов, происхождения клеток, опухолей и сопутствующей терапии не позволяют объединять все такие препараты в один доказанный класс эффективности. В ранних исследованиях иммуногенность необходимо отделять от доказанной клинической эффективности.
Для витамина D, омега-3, сульфорафана и лактоферрина описаны экспериментальные изменения воспалительных и клеточных показателей. Они зависят от формы вещества, концентрации, доступности и модели. Нельзя переносить действие кальцитриола в культуре на эффект обычной добавки холекальциферола, а связывание компонента воспаления в пробирке — на лечение сепсиса. Клиническая рекомендация требует исходов у людей и оценки вреда; «модуляция TLR» сама по себе не является доказанным показанием к приёму добавки.
Как читать результаты без ложной точности
Для исследовательской работы необходимо различать число клеток, их фенотип, сигнальную активность, способность презентировать антиген и фактический клинический исход. Экспрессия CD80, концентрация интерферона или увеличение T-клеточного клона отвечает лишь на часть этих вопросов. Результаты зависят от ткани, HLA, времени забора образца и метода; универсального анализа крови на «правильную активность всех дендритных клеток» нет.
Дендритная клетка объединяет молекулярное распознавание, ферментативную обработку белков, транспорт пептидов, метаболизм и межклеточный контакт. Защитный ответ возникает из согласованной работы этих процессов и сохраняет механизмы ограничения. Убедительное объяснение механизма должно показывать компартменты, причинные связи и неопределённость; убедительное обещание лечения дополнительно требует контролируемого клинического результата.
Частые вопросы
TLR определяет специфичность T-клеточного ответа?
Специфичность задаёт распознавание пептид–MHC рецептором T-клетки; TLR участвуют в передаче контекста.
cDC1 — единственные клетки, способные к кросс-презентации?
Нет. Это выраженная специализация cDC1, но другие клетки тоже способны к ней в определённых условиях.
Доказывает ли снижение маркера эффективность добавки?
Нет. Нужны клинические результаты у людей и оценка вреда.
Источники
- Wilson KR, Jenika D, Blum AB, et al. MHC Class II Ubiquitination Regulates Dendritic Cell Function and Immunity.
- Lawand M, Evnouchidou I, Baranek T, et al. Impact of the TAP-like transporter in antigen presentation and phagosome maturation.
- Luchner M, Reinke S, Milicic A. TLR Agonists as Vaccine Adjuvants Targeting Cancer and Infectious Diseases.
- Rodrigues PF, Trsan T, Cvijetic G, et al. Progenitors of distinct lineages shape the diversity of mature type 2 conventional dendritic cells.
- Cui Q, Li W, Wang D, et al. Immune signature and phagocytosis of circulating DC subsets in healthy adults during aging.
- Reitsema RD, Kumawat AK, Hesselink BC, et al. Effects of ageing and frailty on circulating monocyte and dendritic cell subsets.
- Feng J, Pucella JN, Jang G, et al. Clonal lineage tracing reveals shared origin of conventional and plasmacytoid dendritic cells.
- Balan S, Saxena M, Bhardwaj N. Dendritic cell subsets and locations.
- Collin M, Bigley V. Human dendritic cell subsets: an update.
- Deifl S, Kitzmüller C, Steinberger P, et al. Differential activation of dendritic cells by toll-like receptors causes diverse differentiation of naïve CD4+ T cells from allergic patients.
- Park et al. The structural basis of lipopolysaccharide recognition by the TLR4–MD-2 complex.
- Lin et al. Helical assembly in the MyD88-IRAK4-IRAK2 complex in TLR/IL-1R signalling.
- Pos et al. Crystal structure of the HLA-DM–HLA-DR1 complex defines mechanisms for rapid peptide selection.
- Savina et al. NOX2 controls phagosomal pH to regulate antigen processing during crosspresentation by dendritic cells.
- Phagosomal proteolysis in dendritic cells is modulated by NADPH oxidase in a pH-independent manner.
- Everts et al. TLR-driven early glycolytic reprogramming via the kinases TBK1-IKKε supports the anabolic demands of dendritic cell activation.
- Lal et al. Efficacy of an adjuvanted herpes zoster subunit vaccine in older adults.
- Kantoff et al. Sipuleucel-T immunotherapy for castration-resistant prostate cancer.
- Opal et al. Effect of eritoran, an antagonist of MD2-TLR4, on mortality in patients with severe sepsis: the ACCESS randomized trial.