Th1, Th2, Th17 и Treg: как контекст формирует ответ CD4+ T-клеток
Четыре программы CD4+ T-клеток: рецепторы, транскрипция, эпигенетика и метаболизм, клинические испытания и границы нутрицевтических обещаний.
Четыре программы CD4+ T-клеток: рецепторы, транскрипция, эпигенетика и метаболизм, клинические испытания и границы нутрицевтических обещаний.
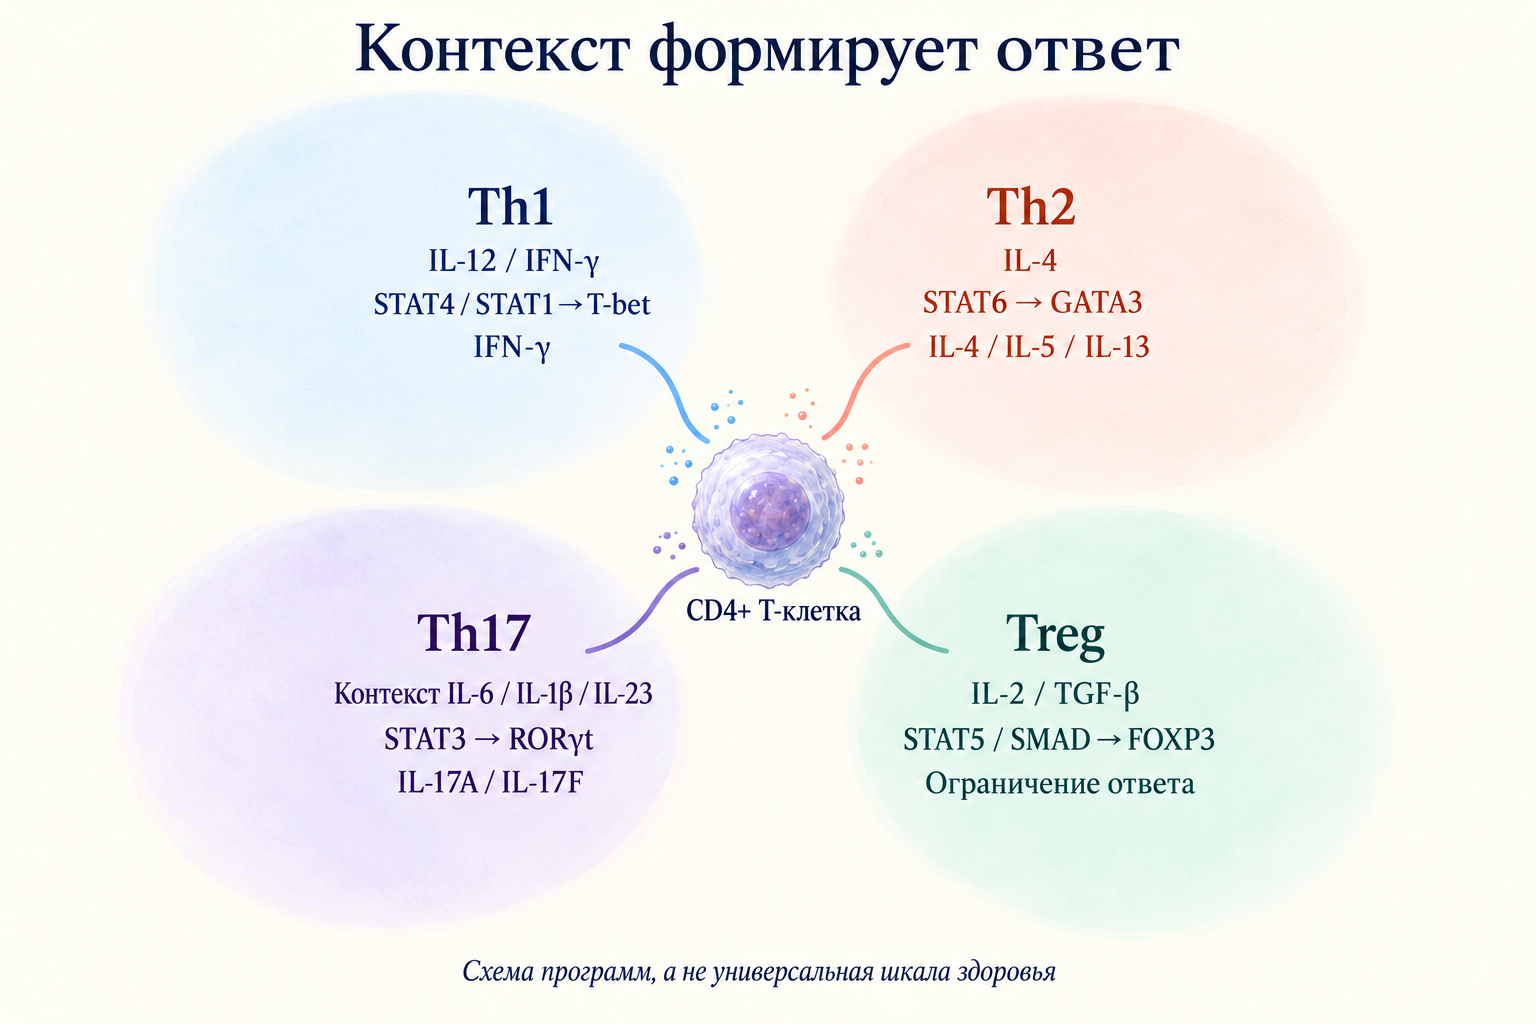
CD4+ T-лимфоциты связывают распознавание антигена с организацией тканевого ответа. Th1, Th2, Th17 и регуляторные T-клетки, или Treg, обозначают четыре хорошо изученные функциональные программы этого семейства. Их различают по сочетанию рецепторов, транскрипционных факторов, продукции цитокинов и способности воздействовать на другие клетки. Эти названия полезны для объяснения механизмов, однако не исчерпывают разнообразия CD4+ лимфоцитов: существуют также фолликулярные хелперы, клетки памяти, тканевые состояния и смешанные фенотипы.
Th1 помогают защите от внутриклеточных возбудителей, Th2 участвуют в противогельминтной защите и аллергическом воспалении, Th17 поддерживают нейтрофильный ответ и барьерные ткани, а Treg ограничивают иммунную агрессию. В зависимости от органа и стадии заболевания каждая программа может приносить пользу или способствовать патологии. Поэтому выражение «ребалансировка иммунитета» имеет смысл только вместе с конкретной болезнью, тканью и измеряемым клиническим исходом. Универсального здорового отношения Th1/Th2 или Th17/Treg для всех людей не установлено.
Поляризация определяется совместным действием антигенного сигнала, костимуляции, цитокинового окружения, метаболизма и истории клетки. Мастер-регуляторы T-bet, GATA3, RORγt и FOXP3 организуют соответствующие программы, но не работают как четыре взаимоисключающих тумблера. Эпигенетическая память стабилизирует функцию, а тканевые сигналы иногда меняют её. Увеличение числа клеток с определённым маркером ещё не доказывает восстановление их функции или улучшение здоровья.
В тимусе развивающиеся T-клетки проходят отбор, который одновременно обеспечивает распознавание собственных молекул главного комплекса гистосовместимости и ограничивает выраженную аутореактивность. Часть клеток получает регуляторную программу ещё в тимусе. Наивные CD4+ клетки, вышедшие на периферию, мигрируют между кровью и лимфоидными органами; сочетание CD45RA и CCR7 часто используют для их фенотипического выделения у человека. Эти маркеры описывают состояние, а не неизменную судьбу.
Первый сигнал возникает при контакте T-клеточного рецептора TCR с пептидом, представленным MHC-II на антигенпрезентирующей клетке. Корецептор CD4 помогает организовать контакт и связан с тирозинкиназой Lck. Lck фосфорилирует ITAM-мотивы комплекса CD3; затем включаются ZAP-70, LAT и SLP-76. Продолжительность и организация контакта влияют на результат, однако универсальные значения сродства, времени полужизни или размера синапса не заменяют измерений для конкретного комплекса.
Второй сигнал включает костимуляцию, в частности взаимодействие CD28 с CD80/CD86. Она усиливает выживание, метаболическую перестройку и продукцию IL-2; ингибиторные рецепторы и отсутствие достаточной костимуляции меняют ответ. Третий сигнал представляет собой цитокиновое окружение. Один и тот же антиген может сопровождаться разными функциональными программами, если его предъявляют разные дендритные клетки в различных тканях.
Фосфолипаза PLCγ1 расщепляет мембранный фосфатидилинозитол-4,5-бисфосфат на IP3 и диацилглицерин. IP3 способствует освобождению кальция из эндоплазматического ретикулума; кальций-кальмодулин активирует фосфатазу кальциневрин, которая дефосфорилирует NFAT и облегчает его перемещение в ядро. Диацилглицерин поддерживает ветви PKCθ–NF-κB и Ras–MAPK–AP-1. Их совместная работа объясняет, почему один цитокин не воспроизводит полноценную активацию клетки.
Рецепторы многих поляризующих цитокинов используют связанные с ними янус-киназы. Эти ферменты переносят фосфат с ATP на тирозиновые остатки белков; для катализа необходима организация комплекса с двухвалентными ионами, обычно Mg²⁺. Фосфорилированные STAT-белки формируют димеры и регулируют транскрипцию в ядре. TGF-β устроен иначе: его рецепторные серин/треонинкиназы передают сигнал через SMAD. Поэтому нельзя обозначать все четыре программы единственной линейной цепью JAK–STAT.
IL-12 состоит из субъединиц p35 и p40. Его рецептор объединяет IL-12Rβ1 и IL-12Rβ2, связанные преимущественно с TYK2 и JAK2; далее важен STAT4. Интерферон-γ действует через IFNGR1/IFNGR2, JAK1/JAK2 и STAT1, поддерживая экспрессию T-bet, кодируемого TBX21. Эти входы дополняют друг друга, а чувствительность клетки зависит от экспрессии рецепторов и отрицательной обратной связи.
T-bet способствует доступности регуляторных элементов IFNG, взаимодействует с другими транскрипционными факторами и организует программу миграции, включая CXCR3. Его лиганды CXCL9, CXCL10 и CXCL11 связывают локальное воспаление с привлечением клеток. Интерферон-γ активирует микробицидные функции макрофагов и изменяет антигенную презентацию. Th1 поэтому особенно важны в ответе на внутриклеточные инфекции, но их избыточная или неадекватно направленная активность может повреждать собственные ткани.
Антагонизм T-bet с GATA3 и RORγt зависит от взаимодействий белков и состояния хроматина. Он не означает, что Th1 всегда патологичны или что подавление T-bet безопасно при любой аутоиммунной болезни. В экспериментальных системах этот фактор способен также ограничивать отдельные Th17-программы. Общий клинический ярлык «Th1-доминантное заболевание» не заменяет описание конкретного патогенетического звена.
В T-клетках IL-4 преимущественно использует рецептор I типа, включающий IL-4Rα и общую γ-цепь CD132. С этими цепями связаны JAK1 и JAK3; важным ядерным посредником становится STAT6, который поддерживает GATA3. Рецептор II типа объединяет IL-4Rα с IL-13Rα1 и передаёт сигналы IL-4 и IL-13 во многих тканевых клетках. Различие рецепторов помогает объяснить, почему блокада IL-4Rα влияет одновременно на иммунные клетки и эффекторные реакции эпителия.
GATA3 организует доступность локуса цитокинов типа 2 и поддерживает продукцию IL-4, IL-5 и IL-13. IL-4 способствует переключению классов антител в B-клетках, IL-5 поддерживает эозинофильное звено, а IL-13 меняет секрецию слизи, реактивность дыхательных путей и тканевое ремоделирование. Эпителиальные алармины IL-25, IL-33 и TSLP усиливают этот ответ через несколько клеточных популяций. В частности, врождённые лимфоидные клетки второго типа способны производить сходные цитокины без принадлежности к CD4+ T-хелперам.
Противогельминтная защита, восстановление ткани, аллергия и фиброз используют частично перекрывающиеся механизмы. Поэтому «Th2» и «аллергия» не являются синонимами, а высокие эозинофилы не измеряют непосредственно число Th2. Снижение типичных маркеров воспаления под действием препарата может подтверждать воздействие на соответствующую сеть, но не доказывает превращение Th2 в Treg.
IL-6 и IL-21 поддерживают STAT3-зависимую программу, связанную с экспрессией RORγt — изоформы ядерного рецептора, кодируемого RORC. IL-1β и IL-23 существенно меняют развитие, выживание и эффекторные свойства этих клеток. IL-23 объединяет p19 и p40 и действует через IL-23R/IL-12Rβ1. Общая p40 у IL-12 и IL-23 объясняет различие между препаратами против p40 и более избирательными антителами против p19.
Роль TGF-β зависит от вида, стадии дифференцировки и остальных сигналов. Классическая мышиная модель противопоставляет TGF-β с IL-2 регуляторному направлению и TGF-β с IL-6 направлению Th17. Но экспериментальные работы показали образование патогенных Th17 при отсутствии сигнала TGF-β; данные человека также не сводятся к одному обязательному набору цитокинов. Нельзя переносить условия клеточной культуры в универсальный алгоритм человеческой иммунной системы.
IL-17A и IL-17F действуют прежде всего на тканевые клетки и запускают образование хемокинов, факторов роста и антимикробных молекул. Через рецепторный комплекс и адаптер ACT1 они поддерживают привлечение нейтрофилов и защиту барьеров. IL-22 воздействует преимущественно на негематопоэтические клетки и может поддерживать эпителиальное восстановление, но в другом контексте способствует воспалению или патологической пролиферации. Эти цитокины производят также другие лимфоциты; измеренная концентрация IL-17 не эквивалентна подсчёту Th17.
Программы Th17 неоднородны. Различаются способность продуцировать IL-10, GM-CSF или интерферон-γ, устойчивость к локальным сигналам и тканевая миграция. Термин «патогенные Th17» описывает функцию в конкретной модели, а не любое присутствие RORγt. Для понимания роли IL-6 полезен отдельный разбор его рецепторного контекста и транс-сигналинга.
Регуляторные клетки формируются в тимусе и на периферии. FOXP3 организует их транскрипционную программу, взаимодействуя с другими факторами и уже существующим ландшафтом регуляторных элементов. IL-2 поддерживает выживание и функцию через высокоаффинный рецептор CD25/CD122/CD132 и STAT5. Treg эффективно используют IL-2, но сами обычно производят его мало; зависимость от внешнего источника связывает регуляторный ответ с активностью эффекторных клеток.
TGF-β через SMAD2/3 способствует периферической индукции FOXP3, однако наличие FOXP3 в одной точке наблюдения недостаточно для доказательства устойчивого регуляторного состояния. У человека обычные активированные T-клетки могут временно экспрессировать этот фактор. Для фенотипирования часто используют CD4, высокий CD25 и низкий CD127 в сочетании с внутриклеточным FOXP3. Функциональные свойства и эпигенетические признаки дают дополнительную информацию.
Регион CNS2 локуса FOXP3, включающий Treg-специфический деметилированный участок TSDR, связан с устойчивостью программы. DNMT используют S-аденозилметионин как донор метильной группы. Ферменты TET окисляют 5-метилцитозин и относятся к Fe²⁺- и 2-оксоглутарат-зависимым диоксигеназам; молекулярный кислород участвует в реакции, а аскорбат может поддерживать ферментную активность. Эти биохимические зависимости не доказывают, что витаминная добавка автоматически деметилирует нужный участок в организме пациента.
CTLA-4 на Treg взаимодействует с CD80/CD86 и может уменьшать доступную костимуляцию на антигенпрезентирующих клетках. Потребление IL-2 меняет доступность этого фактора для других лимфоцитов. IL-10 и TGF-β участвуют в регуляции воспаления, однако не являются эксклюзивными продуктами Treg. Значимость IL-35 у человека и вклад отдельных механизмов различаются между тканями и экспериментальными условиями.
Эктонуклеотидазы CD39 и CD73 последовательно переводят внеклеточные ATP/ADP в AMP и затем в аденозин. Аденозин через соответствующие рецепторы может ограничивать эффекторный ответ. Не каждая человеческая Treg одновременно экспрессирует весь набор этих ферментов. Супрессия представляет собой распределённую систему контактов, метаболитов и цитокинов, а не единственный растворимый тормоз.
Карта H3K4me3 и H3K27me3 в дифференцированных мышиных CD4+ клетках показала, что функциональные локусы и гены ключевых регуляторов имеют различную организацию хроматина. Сочетание активирующих и репрессивных меток на некоторых участках согласуется с сохранением возможности перепрограммирования. Оно не означает, что любая зрелая клетка свободно меняет идентичность в ответ на один пищевой компонент.
Клетки с историей Th17 могут приобрести продукцию интерферона-γ и другие свойства; термин ex-Th17 особенно информативен там, где происхождение действительно прослежено. Одновременное обнаружение IL-17 и интерферона-γ в крови не доказывает направление перехода. Аналогично снижение FOXP3 под действием воспаления не всегда означает, что стабильные тимусные Treg массово превратились в патогенные клетки: возможны примесь активированных обычных лимфоцитов и различия стратегии фенотипирования.
Сосуществование T-bet или RORγt с FOXP3 может отражать адаптацию регуляторных клеток к конкретному тканевому ответу. Значение такого смешанного состояния определяют сохранённая супрессорная функция, устойчивость программы и контекст. Жёсткое разделение всех клеток на четыре непересекающиеся категории теряет эту информацию.
При псориазе ось IL-23/IL-17 представляет собой важную терапевтическую мишень. При воспалительных заболеваниях кишечника отдельные компоненты той же сети могут защищать эпителий. Рассеянный склероз, ревматоидный артрит и диабет первого типа включают взаимодействия CD4+ клеток с B-клетками, CD8+ лимфоцитами, врождённым иммунитетом и тканевыми элементами. Их нельзя диагностировать или выбирать лечение только по отношению Th17/Treg в крови.
Редкие дефекты FOXP3 демонстрируют принципиальную необходимость регуляторного звена для системной толерантности. При распространённых аутоиммунных заболеваниях нарушения намного сложнее: меняются локализация клеток, чувствительность эффекторных лимфоцитов к супрессии и сигнализация тканевого окружения. Нормальное число Treg в крови не исключает недостаточной регуляции в воспалённом органе.
При аллергическом воспалении важны IL-4/IL-13, эозинофильное звено, эпителиальные алармины и антитела IgE. Но клиническая тяжесть определяется не одной субпопуляцией. Ремоделирование тканей, инфекции и ответ на базисное лечение меняют значение каждого механизма. Снижение симптомов при блокаде IL-4Rα подтверждает полезность конкретной мишени в выбранной группе пациентов, а не универсальную пользу подавления Th2.
В опухолевом микроокружении регуляторные клетки способны ограничивать противоопухолевый ответ. Одновременно контроль воспаления может уменьшать повреждение тканей и отдельные механизмы канцерогенеза. Значение инфильтрации Treg зависит от типа опухоли, локализации и остальных клеток. Поэтому системное увеличение Treg не является общей целью профилактики, а их уменьшение не является общей целью лечения рака.
С возрастом меняются продукция наивных клеток, состав памяти, хроническая антигенная нагрузка и тканевая регуляция. Сон, циркадные сигналы и гормоны влияют на миграцию и активацию лимфоцитов. Однако из этого не следует валидированный график приёма добавок для переключения Th17 в Treg. Время взятия образца и сопутствующая инфекция важны прежде всего как условия интерпретации результатов.
В двойном слепом рандомизированном исследовании участвовали 59 пациентов с активной болезнью Крона, CDAI от 220 до 450. Секукинумаб, антитело против IL-17A, вводили внутривенно дважды по 10 мг/кг; 39 пациентов получали препарат и 20 — плацебо. Первичная оценка на шестой неделе проверяла вероятность дополнительного снижения CDAI как минимум на 50 пунктов по сравнению с плацебо. Эта вероятность оказалась меньше 0,1%; вторичный анализ площади под кривой CDAI за недели 4–10 благоприятствовал плацебо.
На секукинумабе зарегистрировали 20 инфекций, включая четыре локальные грибковые, тогда как на плацебо инфекций не зарегистрировали. Малое исследование не определяет риск для всех пациентов, но его отрицательный результат принципиален: успешная мишень при одной болезни может оказаться неэффективной или неблагоприятной в другом органе. Подавление маркера Th17 нельзя считать клиническим успехом само по себе.
В исследовании QUEST 1902 пациента в возрасте от 12 лет с неконтролируемой астмой средней или тяжёлой степени получали в дополнение к базисному лечению дупилумаб 200 или 300 мг подкожно каждые две недели либо соответствующее плацебо в течение 52 недель. Совместные первичные исходы включали годовую частоту тяжёлых обострений и изменение FEV1 на двенадцатой неделе. В группе 200 мг частота обострений составила 0,46 против 0,87 в год, то есть была ниже на 47,7%; преимущество FEV1 перед плацебо составило 0,14 л.
Эффект был выражен сильнее у пациентов с более высокими исходными эозинофилами; у части участников возникала эозинофилия на лечении. Результат относится к добавочной терапии выбранной популяции, а не к здоровым людям или любой форме дыхательных симптомов. Дупилумаб блокирует общий рецепторный компонент IL-4/IL-13, но исследование не ставило задачей доказать клеточное превращение Th2 в Treg.
В двойном слепом испытании 60 пациентов с активной системной красной волчанкой рандомизировали по 30 в группы IL-2 или плацебо на фоне стандартного лечения. IL-2 вводили подкожно по 1 миллион международных единиц через день в течение двух недель с последующим двухнедельным перерывом; циклы продолжались 12 недель, затем проводили ещё 12 недель наблюдения. Первичным исходом был ответ SRI-4 на двенадцатой неделе. Ответ составил 55,17% против 30,00%, но p=0,052: заранее заданная первичная точка не была достигнута.
На двадцать четвёртой неделе ответ составил 65,52% против 36,67% при p=0,027; наблюдалось увеличение регуляторных клеток. Это поддерживает исследовательский интерес, но поздний результат не отменяет отрицательной первичной оценки. Небольшая выборка, анализ отдельных подгрупп и ограниченное наблюдение не позволяют считать подход универсальным восстановлением толерантности или доказательством отсутствия редких осложнений.
Антитела против IL-23p19, IL-12/23p40 и IL-17 воздействуют на разные участки сети. Ингибиторы JAK вмешиваются в передачу сигнала сразу нескольких рецепторов, а аллостерические ингибиторы TYK2 используют иной принцип связывания. Селективность молекулы, её концентрация и клеточный контекст определяют итоговый спектр воздействия. Подавление фосфорилирования STAT в лаборатории нельзя напрямую переводить в относительную клиническую эффективность препаратов.
Риски инфекций и другие осложнения оценивают по конкретному препарату, показанию и пациенту. Клеточные регуляторные терапии исследуют возможность более адресного воздействия, но инженерная конструкция сама по себе не гарантирует устойчивости, тканевой специфичности или безопасности. Их обсуждение требует клинических данных и остаётся отдельным направлением исследований; описание концепции не является инструкцией по изготовлению клеточного продукта.
После активации клетке необходимы ATP, нуклеотиды, аминокислоты и липиды для роста. PI3K–Akt–mTOR связывает ростовые сигналы с транспортом питательных веществ и синтезом макромолекул. Гликолиз происходит в цитозоле: глюкоза превращается в пируват, а образование лактата восстанавливает NAD⁺ для продолжения потока. Пентозофосфатный путь даёт рибозные предшественники и NADPH. Митохондриальные реакции обеспечивают не только энергию, но и метаболиты для биосинтеза и регуляции хроматина.
HIF-1α связывает доступность кислорода и метаболическое состояние с частью Th17-программы. Участие гликолиза в дифференцировке не означает, что употребление сахара непосредственно создаёт патогенные Th17. Глюкоза крови, транспорт через мембрану, сигналы активации и внутриклеточный поток — разные уровни регуляции. Эффекторные клетки также используют митохондрии, а активированные Treg могут нуждаться в гликолизе для пролиферации, миграции и функции.
При β-окислении жирных кислот в митохондриях образуются ацетил-CoA, NADH и FADH₂. Карнитиновый транспорт участвует в доставке длинноцепочечных ацильных групп, а малонил-CoA регулирует CPT1. Но генетические исследования показали, что CPT1A-зависимое окисление длинноцепочечных жирных кислот не является обязательным условием формирования Treg во всех моделях. Высокие концентрации этомоксира имеют эффекты вне CPT1A. Поэтому схема «эффекторы живут на гликолизе, Treg только на жирах» слишком жёсткая и способна привести к неверным диетическим выводам.
Ацетил-CoA служит донором ацетильных групп для гистонацетилтрансфераз, S-аденозилметионин — для метилтрансфераз, NAD⁺ — субстратом для сиртуинов, а 2-оксоглутарат — кофактором ряда диоксигеназ. Доступность этих веществ связывает метаболизм с экспрессией генов. Однако направление эффекта зависит от фермента, компартмента и времени; изменение одного метаболита не определяет судьбу лимфоцита целиком.
Ферментация части пищевых волокон в толстой кишке образует ацетат, пропионат и бутират. В мышиных экспериментах бутират усиливал дифференцировку регуляторных клеток в толстой кишке и ацетилирование гистона H3 в регуляторных областях Foxp3. Ингибирование отдельных гистондеацетилаз и взаимодействие с рецепторами жирных кислот представляют разные механизмы, вклад которых зависит от концентрации и клеточного типа. Универсальная константа ингибирования для всех HDAC и всех КЦЖК некорректна.
FFAR2, FFAR3 и HCAR2 связывают микробные метаболиты с иммунными и эпителиальными ответами, но распределены неодинаково. Бутират одновременно служит метаболическим субстратом для эпителия. Концентрация в просвете кишки, слизистой, портальной и периферической крови существенно различается; фекальное измерение отражает итог продукции, всасывания и транзита, а не прямую дозу, полученную T-клетками. Эти обстоятельства ограничивают перенос опытов с добавлением метаболита в культуру на пищевые вмешательства у человека.
Сегментированные нитчатые бактерии вызывали накопление кишечных Th17 в мышиных исследованиях. Этот результат подчёркивает локальный характер связи микробиоты с барьерной защитой, но не превращает одну бактерию в универсальный человеческий биомаркер аутоиммунитета. Различные микробные продукты и антигенные контакты способны поддерживать также регуляторные ответы. Общее количество бактерий или коммерческий индекс разнообразия не измеряют функциональную ось Th17/Treg.
Кальцитриол связывается с VDR, который совместно с RXR регулирует транскрипцию. Пищевой холекальциферол должен пройти метаболические превращения; сывороточный 25(OH)D, активный гормон и рецепторный ответ — разные величины. Ретиноевая кислота образуется из ретинола через ретиналь, причём ALDH участвуют в окислении ретиналя с использованием NAD⁺. Рецепторы RAR/RXR связывают её с тканевой дифференцировкой и отдельными регуляторными иммунными программами. Эти механизмы не обосновывают самостоятельный приём высоких доз витаминов A или D.
Куркумин, EGCG и ресвератрол меняют сигнальные и эпигенетические показатели в отдельных экспериментальных системах. Однако концентрации, экспозиция и доступность вещества часто отличаются от ситуации после перорального приёма. Для EGCG утверждение о гарантированном поддержании полностью деметилированного TSDR у пациентов не подтверждается такими опытами; для ресвератрола цепь через SIRT1 также не означает однозначной стабилизации FOXP3. Побочный эффект или изменение маркера нельзя заменять общей формулировкой «восстанавливает иммунный баланс».
Образование специализированных медиаторов разрешения воспаления из полиненасыщенных жирных кислот является ферментативным процессом. Приём EPA/DHA не эквивалентен введению определённого медиатора в заданной ткани и концентрации. Аналогично общая рекомендация разнообразного питания не является клинически доказанной дозовой программой изменения Th1/Th2/Th17/Treg. Для пищевых вмешательств нужны исследования с клиническими исходами и контролем сопутствующей терапии.
В одноцентровом двойном слепом рандомизированном пилоте 40 пациентов с рецидивирующе-ремиттирующим рассеянным склерозом получали холекальциферол 10 400 либо 800 международных единиц в сутки в течение шести месяцев. Первичные задачи касались безопасности и иммунологических изменений. В группе высокой дозы наблюдали уменьшение продукции IL-17 CD4+ клетками и сдвиги состава клеток памяти. В обеих группах было по одному рецидиву; исследование не имело достаточной мощности для доказательства предотвращения клинических обострений.
Из этой работы нельзя вывести точные универсальные проценты увеличения Treg или целевой «иммунный» диапазон 25(OH)D. Высокая исследовательская доза не является общей рекомендацией. Переносимость в небольшой контролируемой выборке не исключает гиперкальциемии и других осложнений при иных условиях применения.
В двойном слепом испытании D-Lay MS 316 участников с недавно возникшим клинически изолированным синдромом, типичным для рассеянного склероза, рандомизировали на пероральный холекальциферол 100 000 международных единиц каждые две недели или плацебо. Наблюдение продолжалось до 24 месяцев; первичный анализ включал 303 человека, получивших хотя бы одну дозу. Первичный комбинированный исход объединял клинический рецидив и/или активность на MRI. Он наблюдался у 60,3% против 74,1%, отношение рисков 0,66 с 95%-м доверительным интервалом 0,50–0,87.
Эффект поддерживали прежде всего результаты MRI; клинические вторичные исходы не показали убедительного отдельного преимущества. Исследование раннего демиелинизирующего события не доказывает лечение всех форм рассеянного склероза и не измеряет нормализацию отношения Th17/Treg как причину результата. Эти данные усиливают интерес к направлению, но не заменяют обсуждения базисной терапии со специалистом.
Два многоцентровых двойных слепых плацебо-контролируемых испытания EPIC оценивали 363 и 375 пациентов с болезнью Крона в ремиссии. Участники получали 4 г свободных жирных кислот омега-3 в сутки либо плацебо до 52 недель в EPIC-1 и до 58 недель в EPIC-2. Первичным исходом был клинический рецидив. Годовая частота составила 31,6% против 35,7% в первом испытании и 47,8% против 48,8% во втором; статистически значимого преимущества не получили.
Различия исследовательской формы, фонового лечения и стадий болезни ограничивают перенос на другие показания. Но отрицательный результат нельзя скрывать за биохимическим рассказом о резольвинах или изменении отдельных цитокинов. Он показывает, почему клиническая проверка необходима даже для правдоподобного механизма.
Проточная цитометрия описывает клетки через комбинации поверхностных и внутриклеточных признаков. Результат зависит от стратегии выделения популяций, жизнеспособности, обработки образца, способа стимуляции и используемой панели. Процент клеток и абсолютное количество отвечают на разные вопросы. Продукция цитокина после лабораторной стимуляции отражает потенциал ответа в этих условиях, а не непрерывную секрецию в организме.
Кровь не воспроизводит клеточную композицию слизистой, кожи, синовии или опухоли. Изменение доли Th17 может отражать миграцию, изменение знаменателя или лекарственный эффект, а не исчезновение патогенной функции. FOXP3, CD25, CD127 и деметилирование TSDR дополняют друг друга; ни один из них в одиночку не определяет полноценную супрессию. Отношение Th17/Treg без стандартизованной методики и клинической валидации нельзя считать универсальным диагностическим тестом.
При клиническом решении важны подтверждённый диагноз, активность болезни, органное повреждение, инфекции, сопутствующие лекарства и валидированные исходы. Пищевые привычки, дефициты и переносимость вмешательств оценивают в этом контексте. Коррекция установленного дефицита и выбор таргетного препарата — разные задачи; нормализация лабораторного маркера не гарантирует выполнения ни одной из них.
Механистическая работа отвечает на вопрос, может ли определённый сигнал изменять программу клетки в заданной системе. Наблюдательное исследование показывает связь, но часто не устанавливает её направление. Рандомизированное испытание оценивает конкретное вмешательство в конкретной популяции с определённым первичным исходом. Эти уровни взаимно дополняют друг друга, однако не взаимозаменяемы.
Практически полезно проследить всю цепь: рецептор и фермент, клеточная функция, тканевое последствие, клинический исход и ограничения. При этом необходимо сохранять отрицательные результаты и различать заранее заданную первичную точку от поздних или подгрупповых сигналов. Такая последовательность позволяет говорить об управлении иммунным ответом без обещания универсальной «ребалансировки».
Нет. Метод, ткань, заболевание и состояние пациента меняют значение показателя.
Нет. У человека активированные обычные T-клетки могут временно экспрессировать FOXP3; нужны дополнительные признаки и функция.
Нет. Экспериментальный маркер не заменяет клинические исходы, а отрицательные испытания необходимо учитывать.