BSH және өт қышқылдары: микробтық деконъюгациядан рецепторлар мен клиникалық деректерге дейін
BSH өт қышқылы конъюгаттарын қалай ыдырататыны, bai арқылы DCA мен LCA түзілуінен айырмасы және FXR, TGR5, диарея мен тежегіштер туралы деректердің шегі.
BSH өт қышқылы конъюгаттарын қалай ыдырататыны, bai арқылы DCA мен LCA түзілуінен айырмасы және FXR, TGR5, диарея мен тежегіштер туралы деректердің шегі.
«Өт тұздарының гидролазасы» атауын дезоксихол қышқылы мен литохол қышқылын түзетін ферменттің атауы деп түсіну оңай. Алайда бактериялық BSH өт қышқылы мен глициннің немесе тауриннің арасындағы амидтік байланысты үзеді. Стероид ядросынан 7α-гидроксил тобын алып тастау — функционалды bai гендері бар аз ғана бактерия тобы атқаратын бөлек, көпсатылы үдеріс. BSH бөлген бос өт қышқылы осы жолға субстрат болуы, эпимерленуі, сіңуі немесе организмнен шығуы мүмкін. Қай бағыт басым болатыны тек bsh геніне емес, иесіне, микробтық қауымдастыққа, субстраттың қолжетімділігіне және реакция орнына байланысты.
Бұл — фермент химиясы, микроб генетикасы, рецептор физиологиясы және клиникалық жағдайлар туралы баяндау шолуы. 2026 жылғы 9 қазанда BSH құрылымы мен таралуы, BSH тежегіштері, bai-ге тәуелді екіншілік қышқылдардың түзілуі, колонизацияға төзімділік және өт қышқылдары диареясына жүргізілген сынақтар жөніндегі бастапқы зерттеулер нысаналы түрде қайта тексерілді. Жүйелі толық іздеу де, ығысу қаупін формалды бағалау да жасалмады; GRADE бағасы және сыртқы сарапшылық рецензия болған жоқ. Тазартылған фермент, гнотобиотикалық тышқан, дені сау ерікті және диареясы бар пациент жөніндегі нәтижелер әртүрлі ортадан шыққандықтан, бірінен біріне автоматты түрде көшірілмейді.
Адамның негізгі бастапқы өт қышқылдары — хол қышқылы (CA; 3α, 7α және 12α гидроксил топтары) және хенодезоксихол қышқылы (CDCA; 3α және 7α). Бауырдағы классикалық жол эндоплазмалық тордағы CYP7A1 ферментінен басталады: холестерин 7α-гидроксихолестеринге айналып, кейін HSD3B7 7α-гидрокси-4-холестен-3-онды түзеді; оны C4 деп те атайды. CYP8B1 12α-гидроксил тобының қосылуын басқарып, синтезді CA жағына ығыстырады; бұл қадам болмаса, CDCA үлесі салыстырмалы түрде артады. Балама жол митохондриядағы CYP27A1 ферментінің бүйір тізбекті тотықтыруынан басталып, CYP7B1-ді де қамтиды. Бұл — компартменттер мен реттеушілер желісі, бауыр холестеринді тікелей «DCA-ға айналдыратын» жол емес. Өт қышқылдарының нәжіспен жоғалуы холестериннен жаңа синтезді қолдайды, бірақ әр жолдың тұрақты үлесі немесе барлық адамға ортақ CA:CDCA арақатынасы жоқ.
Бөлініп шыққанға дейін бауыр SLC27A5/BACS арқылы ATP жұмсап, қышқылдың карбоксил тобын белсендіреді, содан соң BAAT ацил тобын глицинге не тауринге тасымалдайды. Бұл — амидтік конъюгация, сульфаттау емес. Хол қышқылы үшін екі жиынтық кезеңді былай жазуға болады:
Тауринмен түзілетін өнім — таурохолат (TCA), ал CDCA GCDCA немесе TCDCA түзеді. Ішек ортасында глицин конъюгаттарының карбоксил тобы мен таурин конъюгаттарының сульфонаты күшті иондалған. Олардың амфипатиялық беті фосфатидилхолин және липолиз өнімдерімен аралас мицеллалар түзіп, липидтерді шырышты қабатқа тасымалдауға жәрдемдеседі. Ерігіштік, мицелла түзудің критикалық концентрациясы және мембранаға әсері pH-қа, тұздарға, фосфолипидтерге және қоспаның құрамына байланысты. Тазартылған бос қышқылға өлшенген CMC-ны ішек ішіндегісіне сол күйі қолдануға болмайды; гидрофобты метаболит кез келген концентрацияда «у» емес.
BSEP/ABCB11 конъюгацияланған тұздарды ATP жұмсап, гепатоциттің каналдық мембранасы арқылы шығарады. MDR3/ABCB4 өтке фосфатидилхолин береді, ал ABCG5/ABCG8 холестерин шығаруға қатысады. Тамақтан кейін тұздар аш ішекке түсіп, негізінен терминалды мықын ішекте қайта сіңеді: апикальды ASBT/SLC10A2 натрий градиентін пайдаланады; FABP6/IBABP энтероцит ішінде өт қышқылдарын байланыстырады; базолатеральды OSTα–OSTβ оларды қақпа қанына өткізеді. NTCP/SLC10A1 мен OATP бірнеше конъюгацияланған және конъюгацияланбаған түрдің бауырға өтуіне қатысады. Қайтып келген қышқылдар қайта конъюгациялануы мүмкін. Тоқ ішекке жететін мөлшер секрецияға, транзит уақытына, мықын ішек қызметіне және микробтық түрленуге байланысты. «95%» — қалыпты айналымға арналған жуық бағдар, мықын ішегі алынған адамдағы өзгермейтін үлес емес.
Дені сау циклде салыстырмалы түрде шағын өт қышқылы қоры тәулігіне бірнеше рет ішектен өтеді. Сондықтан бірнеше тамақтан кейін бөлінген өт қышқылының массасы қор көлеміне де, нәжіспен жоғалған мөлшерге де тең емес. Бұл «BSH жоғарылауын» түсіндіру үшін маңызды: деконъюгация сіңу орнын, рецептор сигналын және жоғалуды өзгерте алады, бірақ осы үш массаны бір нәжіс талдауынан есептеу мүмкін емес. Терминалды мықын ішегінің ауруы немесе резекциясы конъюгаттардың басым белсенді сіңуін бұзады, бірақ бос қышқылдар басқа бөліктерде пассивті сіңе алады. Химиялық түрлену мен тасымал аш ішек пен тоқ ішекте әртүрлі экспозиция жасайды.
| Орны | Реакция немесе тасымал | BSH үшін маңызы |
|---|---|---|
| Бауыр: CYP7A1/CYP8B1 және CYP27A1 | Холестериннен CA және CDCA түзілуі | Субстрат құрамы синтез бен кері байланысқа тәуелді |
| Бауыр: BACS және BAAT | Глицинмен немесе тауринмен конъюгация | BSH үзетін амидтік байланысты түзеді |
| Өт және аш ішек | BSEP, MDR3, мицеллалар, ASBT | Микробтар мен иеге субстраттың қолжетімділігін анықтайды |
| Мықын ішек пен бауыр | OSTα/β, NTCP, OATP | Қышқылдарды айналымға қайтарады, микробтық BSH-ны өлшемейді |
| Тоқ ішек | BSH, HSDH, bai, пассивті сіңу | Әртүрлі ферменттер бөлек өнімдер мен сигналдар береді |
BSH немесе холоилглицин гидролазасы (EC 3.5.1.24) N-соңғы нуклеофилі бар амидогидролазалар тобына жатады. Зерттелген Clostridium perfringens құрылымында ақуыз тетрамер түзеді, ал белсенді орталық субстраттың стероид бөлігін де, амидтік байланысын да бағыттайды. Каталитикалық N-соңғы цистеиннің нөмірленуі бастапқы метиониннің алынып тасталуына қарай өзгереді; сондықтан әр сипаттамадағы Cys1 мен Cys2 функционалдық тұрғыдан бір қалдықты білдіруі мүмкін. Оның тиол тобы амидтік байланыстың карбониліне шабуылдайды. Тетраэдрлік аралық өнімнен кейін глицин немесе таурин бөлініп, ацил-фермент қалады; су тиоэфирді гидролиздеп, өт қышқылын босатады. Жалпы реакция стероид сақиналарындағы гидроксил тобын алып тастамайды:
C. perfringens құрылымдық жұмысы стероид және аминқышқыл бөліктерінің танылуын көрсетті; ол барлық BSH ферменттеріне ортақ бір пен мәнін анықтамайды. Әртүрлі штаммдардың изоферменттері стероид ядросының, глициннің және тауриннің бөлек комбинацияларына бейім. Мысалы, тазартылған Bacteroides thetaiotaomicron BSH туралы биохимиялық зерттеу TUDCA гидролизін тапқанымен, TCA гидролизін таппады; барлық Bacteroides BSH тауринді жылдамырақ алып тастайды деп жалпылау қате. көрсеткіштері нақты pH, температура, субстрат және бос аминқышқылды анықтау сияқты әдіс жағдайында өлшенеді. ферменттерді тек салыстырмалы жағдайларда салыстыруға көмектеседі. Нәжістегі bsh көшірмелерінің саны мықын ішекте әр өт тұзының гидролиз жылдамдығын өлшемейді.
Кинетикалық тәжірибеде әдетте тазартылған рекомбинант ақуыз, бір конъюгаттың белгіленген концентрациясы және бастапқы жылдамдыққа жақын кезеңде алынған сынамалар пайдаланылады. Нингидрин сынағы бөлініп шыққан аминқышқылды анықтайды, ал масс-спектрометриямен хроматография бастапқы субстратты бос өт қышқылынан ажыратуы мүмкін. Екі әдіске де бақылау қажет: бос глицин бактериялық ортада алдын ала болуы мүмкін, кейбір изомерлер стандартсыз нашар бөлінеді, субстраттың азаюы адсорбциядан немесе кейінгі түрленуден болуы ықтимал. Ішекте бірнеше бәсекелес тұз миллимолярлық деңгейде қатар болады, сондықтан бір субстраттың Михаэлис–Ментен бойынша гидролизі бүкіл қоспаны сипаттамайды. Белсенді ақуыз үлесі, N-соңғы өңделуі, өт қышқылы концентрациясы және судың қолжетімділігі зертханадағы жылдамдықты ішек ішіндегісіне көшіруге болатынын анықтайды.
BSH қызметі бар гендер әртүрлі бактериялық тармақтарда кездеседі. Jones және әріптестерінің функционалды метагеномикасы олардың кең әрі қайталама таралуын көрсетті және BSH кейбір бактериялардың өтке төзімділігіне үлес қосатынын анықтады. Нақты субстратпен тәжірибесіз гомолог ген белсенділікті дәлелдемейді, ал бір штамм қасиетін тұтас Lactobacillus, Bifidobacterium немесе Bacteroides туысына телуге болмайды. Ферменттің орны — жасуша ішінде, бетінде немесе жасушадан шыққаннан кейін болуы — өт тұздарына қолжетімділікті өзгертеді. Геннің бар болуы, транскрипт, белсенді ақуыз және соңғы өт қышқылы профилі әртүрлі өлшем. «Бактериялардың 80%-ында BSH бар» сияқты негізсіз пайыздар немесе субстрат таңдауының бәріне ортақ төрт санатты шкаласы нақты адамның функционалдық күйін анықтамайды.
Деконъюгация микробтың өтке төзімділігін арттыруы мүмкін, бірақ әсер бағыты ортаның химиясына байланысты: бір pH-та бос қышқыл оңай тұнуы мүмкін, ал басқа pH-та мембранадан өтіп, уыттырақ болуы ықтимал. Бөлінген таурин басқа организмдерді қоректендіруі мүмкін, бірақ бұл әр BSH-оң штаммның тауринді электрон акцепторы ретінде өзі пайдаланатынын білдірмейді. Нәтижені микробтық қауымдастық, шырыш, иенің өт қышқылдары және тағам рационы бірлесіп қалыптастырады. «BSH жоғары болса, ішек әрқашан қорғалады» деген тұжырым «BSH әрдайым уыт түзеді» дегендей тым қарапайым.
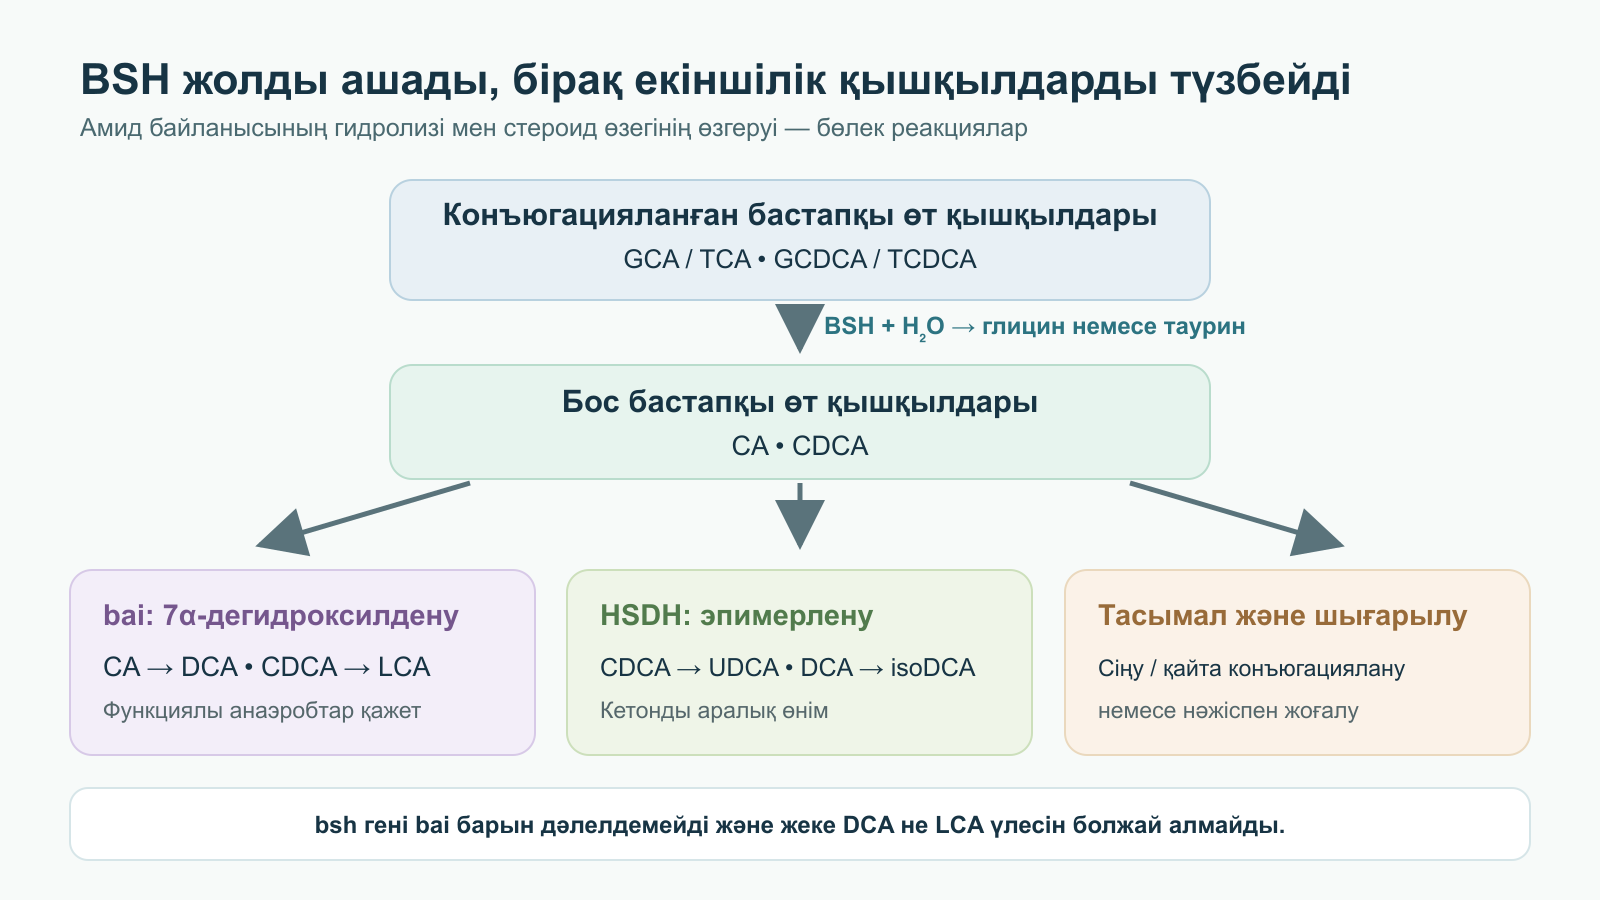
Бос CA мен CDCA 7α-дегидроксилдену жүргізетін бактерияларға субстрат бола алады, бірақ субстраттың болуы оның міндетті түрде түрленетінін білдірмейді. Функционалды bai гендері бар шектеулі анаэробтар тобы, соның ішінде зерттелген Clostridium scindens, тотығу, сусыздану және тотықсыздану кезеңдерін атқарады. Бос қышқылды тасымалдау, BaiB КоА-лигазасымен белсендіру және BaiA арқылы 3α-гидроксилді өзгерткеннен кейін жол конъюгацияланған қанықпаған аралық өнім түзеді де, BaiE дегидратазасының қатысуымен 7α-OH жояды. Кейінгі редуктазалар мен КоА тасымалы қаныққан құрылымды қайта қалпына келтіреді. Аралық өнімдердің нақты реті мен әр Bai ақуызының қызметі организм мен тәжірибеге қарай өзгереді; клиникалық нәжіс талдауы әр кезеңді көрсетпейді. Расталмаған егжей-тегжейлі жебелер тізбегінен гөрі жалпы химияны көрсету қауіпсіздеу:
DCA CA-ның 7α-гидроксилін жоғалтады, бірақ 12α-OH-ты сақтайды; LCA CDCA-дан түзіліп, тек 3α-OH-ты сақтайды. Екеуі де екіншілік өт қышқылдары деп аталады. bai тасымалдаушысы немесе тиісті өсу жағдайлары болмаса, BSH тек бос бастапқы қышқылдар жасайды. Екі гендік жүйе де бар кезде транзит уақыты, субстрат мөлшері, pH, оттек, бәсекелес микробтар және сіңу маңызды. Сондықтан «BSH-ны тежеу DCA түзілуін толығымен тоқтатады» немесе «аз ғана bai бактериясы бүкіл қорды дерлік түрлендіреді» деген сөздер әмбебап физиологиялық заң емес.
Гидроксистероид дегидрогеназалары (HSDH) өзге тармақтарды жүргізеді. 7α-HSDH және 7β-HSDH жұбы 7-оксо аралық өнімі арқылы CDCA гидроксилінің конфигурациясын кері айналдырып, урсодезоксихол қышқылын (UDCA) түзе алады. 3α/3β-HSDH жұбы isoDCA сияқты 3β-эпимерлерді түзеді. Devlin мен Fischbach Ruminococcus gnavus және басқа организмдерде isoDCA түзілуін сипаттады; тәжірибеде бұл DCA-ның Bacteroides өсуіне әсерін өзгертті. Жеке метаболиттермен жасалған тәжірибелер T-жасушалардың жіктелуіне де әсер көрсетті. Бұл бүкіл екіншілік өт қышқылы қоры «қабынуға қарсы» немесе HSDH бар штамм колитті емдейді дегенді білдірмейді.
HSDH реакциялары тотыққан және тотықсызданған NAD(P)⁺/NAD(P)H кофакторларына, реакция бағытына және гидроксил орнына тәуелді. bai арқылы оттекті алып тастау мен кетон аралық өнімі арқылы α→β айналдырудың атомдық теңгерімі бөлек. UDCA-ны «BSH түзген гидрофилді өнім» деуге болмайды: BSH субстратты босатуы мүмкін, бірақ стереоинверсияны басқа ферменттер орындайды. Сол сияқты isoDCA жалпы DCA азайды деген сөз емес: гидроксил конфигурациясы өзгеріп, бактериямен не рецепторлармен әрекеттесу басқаша болуы мүмкін.
| Бастапқы субстрат | Ферменттік қадам | Өнім | Негізгі шектеу |
|---|---|---|---|
| GCA немесе TCA | BSH: амид гидролизі | CA + глицин/таурин | CA бастапқы қышқыл болып қалады |
| GCDCA немесе TCDCA | BSH | CDCA + глицин/таурин | BSH LCA-ны тікелей түзбейді |
| Бос CA | bai каскады, 7α-дегидроксилдену | DCA | Қызметті штамм және қолайлы орта қажет |
| Бос CDCA | bai каскады | LCA | LCA сіңу мен детоксикацияға да тәуелді |
| CDCA | 7-оксо түрі арқылы 7α/7β-HSDH | UDCA | Эпимерлену дегидроксилденумен бірдей емес |
| DCA | 3-оксо түрі арқылы 3α/3β-HSDH | isoDCA | Изомер мен DCA бактерияларға әрқалай әсер етуі мүмкін |
Бос қышқылдар мен олардың конъюгаттары заряд, ерігіштік және кальциймен не аралас мицеллалармен байланысу қабілеті жағынан ерекшеленеді. Алайда «төмен pH барлық DCA-ны кальциймен бірге тұнбаға түсіреді» деген қарапайым түсінік нақты концентрацияларды, ион құрамын, тағам майын және ішек ішіндегісінің әркелкілігін ескермейді. Еріген және байланысқан фракциялар тепе-теңдігін зерттеуге болады, бірақ нәжіс pH-ы бойынша адамның шырышты қабатының зақымдану қаупін анықтау мүмкін емес.
Өт қышқылдары липидтермен қатар рецепторларға да байланысады. FXR/NR1H4 — ішек пен бауырда болатын ядролық транскрипциялық фактор. Лиганд байланысқанда оның RXR, коактиваторлар және ДНҚ жауап элементтерімен әрекеттесуі өзгереді. CDCA бірнеше жасушалық жүйеде күшті табиғи агонист; басқа қышқылдарға жауап түрге, конъюгацияға, мембрана арқылы тасымалға және сынақ жүйесіне тәуелді. мәндерінің тізімі DCA жоғарылаған кезде бүкіл ағза «FXR-ден TGR5-ке ауысады» деп болжауға мүмкіндік бермейді: әртүрлі жасушалар мен концентрацияларда екі сигнал бір мезгілде болуы мүмкін.
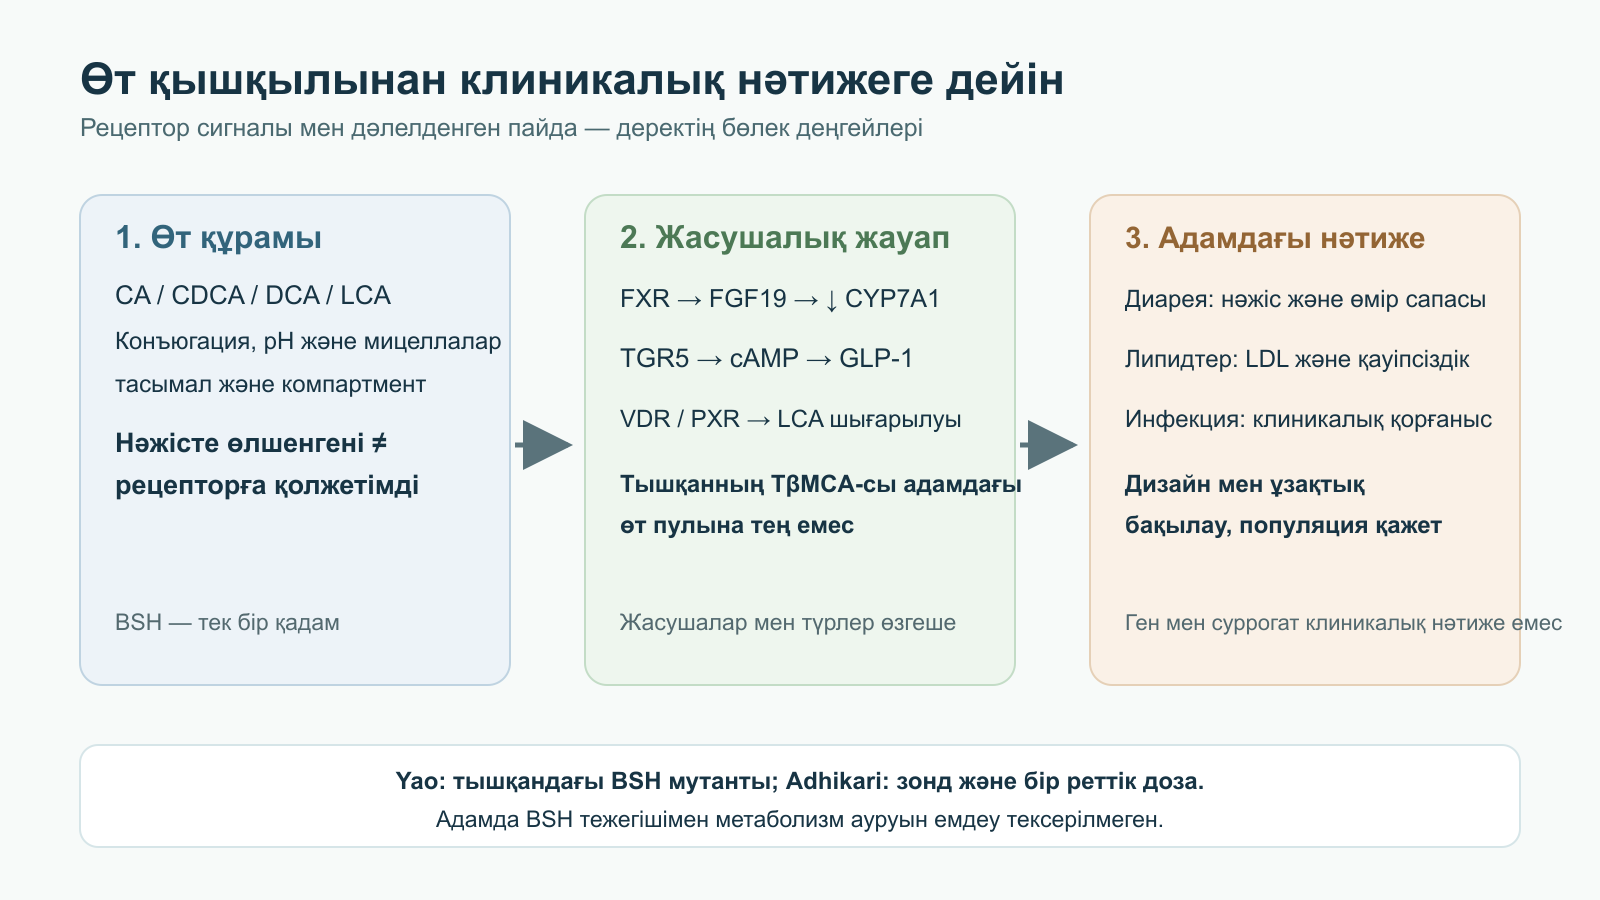
Мықын ішек энтероцитінде FXR адамда FGF19 түзілуін (тышқанда Fgf15) ынталандырады. Қақпа қанындағы FGF19 бауырдағы FGFR4/β-Klotho кешені арқылы CYP7A1 транскрипциясын және өт қышқылдарының жаңа синтезін тежейді. Бауыр FXR-і экспортқа, конъюгацияға және SHP/NR0B2 реттегішіне де әсер етеді; CYP7A1 өзгерісін жалғыз бір тармаққа жатқызуға болмайды. Ішектің терминалды бөлігі зақымданса немесе FGF19 кері байланысы жеткіліксіз болса, бауыр тоқ ішекке жететін қышқылдарды шамадан тыс өндіруі мүмкін. Бұл механизм өт қышқылдары диареясында маңызды. Walters шағын зерттеуінде өт қышқылдары бастапқы диареясы бар 10 адамға екі апта бойы күн сайын 25 мг обетихол қышқылын беріп, FGF19 жоғарылағанын және C4 азайғанын, кейбір симптомдар жақсарғанын байқаған; оған қоса екіншілік диареясы бар 10 және идиопатиялық диареясы бар 8 қатысушы болған. Плацебосыз қысқа ашық зерттеу FXR-ді кез келген жағдайда ынталандыру дайын әмбебап ем екенін дәлелдемейді.
TGR5/GPBAR1 — $G_s-пен байланысқан мембраналық рецептор. Оның белсенуі cAMP деңгейін көтеріп, PKA және басқа эффекторлық жолдарды іске қосады. Модельдік жүйелерде DCA мен LCA TGR5-ті күшті белсендіре алады. Энтероэндокриндік L-жасушаларда бұл GLP-1 бөлінуімен байланыстырылған; макрофагтарда NLRP3 қоса алғанда қабыну сигналдарына ықпалы сипатталған. GPBAR1 зерттеулері метаболизм мен иммундық жауапқа қатысты мүмкіндіктерді көрсетеді, бірақ нәжістегі бір метаболиттің артуы L-жасушаның базолатеральды мембранасындағы рецептордың байланысу деңгейін өлшемейді. GLP-2 бөлінуі, ішек бүрлерінің қалпына келуі және диабет профилактикасы BSH-дан басталатын тізбектің міндетті бөлігі емес.
Watanabe-нің тышқан тәжірибелерінде өт қышқылдары TGR5–cAMP–DIO2 жолын белсендірді: дейодиназа T4-ті T3-ке айналдырып, тіндердің термогенезін арттырды. Мұнда модель, қышқыл қолжетімділігі және түрге тән қоңыр май тіні маңызды. Осыдан BSH бар қоспа адамда энергия шығынын немесе UCP1 экспрессиясын елеулі арттырады деген қорытынды шықпайды. LCA сондай-ақ VDR және PXR-ді белсендіріп, өт қышқылдарының биотүрленуі мен шығарылуына қатысуы мүмкін. LCA сульфаттануы және басқа жолдар бос гидрофобты молекула әсерін азайтады; нақты ағын ішек, бауыр және қан арасында өзгеше.
Тышқандар FXR механизмдерін зерттеуге пайдалы, бірақ олардың өт қышқылы қорында адамда негізгі емес мурихол қышқылдары көп. Sayin жұмысында тауро-α- және тауро-β-мурихолаттар тышқандарда FXR антагонисі болды; микробтық түрлену мықын ішектегі Fgf15 пен бауырдағы Cyp7a1-ді өзгертті. Бұл механизмді «TUDCA — адамдағы TβMCA баламасы әрі міндетті FXR антагонисі» деп көшіруге болмайды. Yao кейбір субстраттарға таңдамалы B. thetaiotaomicron BSH-сын зерттеді; колонизацияланған тышқандардағы генетикалық өзгеріс өт қышқылы профилі мен дене салмағын өзгертті. Бұл жануар моделіндегі мутант зерттеуі, адамдарда BSH тежейтін дәрінің клиникалық сынағы емес.
| Рецептор немесе жол | Орны | Байқалған байланыс | Көшірудегі шек |
|---|---|---|---|
| Мықын ішек FXR → FGF19 | Энтероцит → қақпа қаны → бауыр | CYP7A1-ді тежеп, синтезге кері байланыс береді | Нәжістегі BSH FGF19-ды не жеке кері байланысты өлшемейді |
| Бауыр FXR/SHP | Гепатоцит | Синтезді, тасымалды және жиналудан қорғанысты реттейді | Бір қышқылға не генге келіп тірелмейді |
| TGR5 → cAMP | L-жасушалар, макрофагтар және өзге тіндер | Тәжірибеде GLP-1 және жасушалық иммундық әсерлер | BSH пробиотигімен салмақ азаюын не қабынуды емдеуді дәлелдемейді |
| TGR5–DIO2 | Тышқанның метаболизм модельдері | Жергілікті T3 белсенуі және термогенез | Адамдағы клиникалық нәтиже анықталмаған |
| VDR/PXR | Ішек пен бауыр | LCA жауабы, биотүрлену және шығарылу | Қорғаныс сигналы жоғары әсерді қауіпсіз етпейді |
7α-гидроксилдің алынуы әдетте гидрофобтылықты арттырады: бос DCA және әсіресе LCA жеткілікті биожетімді концентрацияда мембраналар мен жасуша ішіндегі органеллаларды зақымдай алады. Жасуша мәдениетінде DCA митохондриялық тотығу стрессін туғызып, жасуша желісі мен дозаға қарай NF-κB, апоптоз немесе пролиферация сигналдарын өзгертті. β-катенин мен басқа жолдардағы тәжірибелер зерттеуге арналған механизм береді, бірақ ісік жасушасының культурасы адам үшін қауіпсіз тағамдық май мөлшерін өлшемейді және нәжістегі DCA-ның тоқ ішек обырындағы тәуелсіз себептік рөлін дәлелдемейді.
Доза мен молекулалық форма әсерді анықтайды. Өлшенген қышқыл бос па, әлде конъюгацияланған ба, су фазасында еріген бе, аралас мицеллаға кірген бе, кальциймен байланысқан ба және эпителийге қанша уақыт жанасатыны белгілі болуы керек. Сіңгеннен кейін бауыр DCA-ның бір бөлігін қайта конъюгациялайды; LCA сульфаттанып шығарылуы мүмкін. Бұдан тірі ішек үшін «0,2 мМ әмбебап лизис шегі» шықпайды: модельдік ортадан алынған сан шырыш пен фосфолипид қорғанысын және нәжіспен динамикалық жоғалуды есепке алмайды. Сонымен бірге DCA-ның физиологиялық мөлшері басқа экспозицияда не тін сезімталдығында зиян болмайды дегенді білдірмейді.
Тәжірибелік зерттеулер DCA-ны реактивті оттек түрлерімен, митохондрия потенциалымен, каспазалармен, β-катенинмен, EGFR/MAPK және NF-κB-мен байланыстырады. Бұл құбылыстар міндетті түрде бір сызықты «қатерлі ісік жолын» құрамайды: бір жағдайда жасуша өледі, басқа жағдайда тірі қалып, пролиферацияны өзгертеді. Екіншілік қышқылдар, тағам рационы немесе неоплазия арасындағы эпидемиологиялық байланыстарды рацион құрамынан, транзиттен, қабынудан, микробтық қауымдастықтан және кері себептіліктен ажырату қиын. Метаболитті байқау, механизмнің қисындылығы және нақты BSH тежегіші қатерлі ісіктің алдын алатыны туралы дәлел — деректің үш бөлек деңгейі.
Екіншілік қышқылдар қарама-қарсы әсер де көрсете алады. C. difficile өсіріндісінде таурохолат глицинмен бірге споралардың өнуін бастаған; DCA да өнуге түрткі болып, кейінгі вегетативті өсуді тежеуі мүмкін. Buffie жұмысында 7α-дегидроксилдейтін C. scindens жоғалуы антибиотиктен кейінгі бейімділікпен байланысты болды, ал эксперименттік модельге бактерия енгізу екіншілік қышқылдар қатысқанда қорғанысты күшейтті. Сондықтан «микробиомды жақсарту үшін барлық DCA-ны жою» инфекцияға қарсы қорғанысты елемеуі мүмкін. Бұл адамға өз бетінше C. scindens енгізу немесе инфекцияны BSH капсуласымен емдеу үшін негіз емес: колонизацияға төзімділік моделі клиникалық сынақты алмастырмайды.
Өт қышқылдары диареясында негізгі мәселе басқа болуы мүмкін: терминалды мықын ішектің ауруы не резекциясы салдарынан тоқ ішекке тым көп қышқыл жетеді немесе FGF19 кері байланысы жеткіліксіз болып, синтез шамадан асады. Су секрециясы, транзиттің үдеуі және рецепторлық әсерлер симптомға қатысуы мүмкін; нақты бір DCA әсері диагнозды толық анықтамайды. «Мальабсорбция» термині синтездің шамадан тыс болуынан туатын бастапқы түрді толық қамтымайды. Өт қабы алынғаннан кейін, кей ішек ауруларында және белгілі дәрілерді қабылдағанда клиникалық жағдай бөлек. BSH профилі тексерусіз автоматты түрде «1–3 түрін» белгілемейді.
Тоқ ішектегі бос CDCA мен DCA секреция мен моториканы күшейте алады, бірақ артық мөлшерде келетін конъюгацияланған тұздар да маңызды. Нәжіс көлемі артса, шығарылу да өзгереді: транзиттің жылдамдауы BSH және bai әрекет ететін уақытты өзі азайтады; ол тек қышқылдардың салдары емес. Себептілік екі бағытта жүреді. Бір қышқылдың нәжістегі деңгейі жоғары болса, оның көбірек жеткізілуін, аз сіңуін немесе әрі қарай түрленуінің азаюын көрсетуі мүмкін. Клиникалық бағалау «артық BSH»-ға қарсы микробқа қарсы әсерден емес, созылмалы диарея сипаты мен мықын ішек зақымының себептерін анықтаудан басталады.
Өт қышқылдарының стеатогепатитпен және ішектің тамырлық тосқауылымен байланысы адам профильдері мен модельдерде зерттелуде. Өсіріндідегі эндотелий, PV-1, цитокиндер және LCA туралы деректер адамда «BSH → тамыр тосқауылының өткізгіштігі → MASH/метастаздар» тізбегін анықтамайды. Тін мен қандағы қышқыл экспозициясы нәжістегіден бөлек; нәжістегі bai гендерін азайту бауыр фиброзының алдын алмайды. Бауыр ауруы мен инфекцияны бір «уытты екіншілік өт қышқылы» көрсеткішімен бағалау мүмкін емес.
Өт қышқылдарын байланыстыру. Холестирамин мен колесевелам — сіңбейтін полимерлі секвестранттар: оң зарядты топтары өт қышқылы аниондарын байланыстырып, нәжіспен шығуын арттырады. Олар BSH-ның белсенді орталығына емес, иенің өт қышқылы қорына әсер етеді. Өт қышқылдары диареясында колоноциттерге қолжетімді қышқыл жүктемесін азайтуы мүмкін, бірақ жауап көтерімділікке, дозаға және дұрыс диагнозға байланысты. Camilleri-дің диарея басым тітіркенген ішек синдромы мен өт қышқылы мальабсорбциясы бар адамдардағы 10 күндік ашық зерттеуінде колесевелам күніне екі рет 1875 мг беріліп, 48 сағаттық нәжіс қышқылдары, C4 және нәжіс көрсеткіштері өлшенді. Бақылау тобы жасырын болмағандықтан, байқалған өзгерістерді барлық пациентке телуге болмайды; секвестранттың пайдасы анықталғанның өзінде мәселе артық BSH-дан басталды дегенді дәлелдемейді. Шайырлар басқа дәрілердің сіңуіне кедергі келтіріп, кейде іш қатуы мүмкін; қабылдау мөлшері мен аралығын препарат пен клиникалық жағдай анықтайды.
UDCA және TUDCA. Урсодезоксихол қышқылы — CDCA-ның 7β-эпимері. Рецептпен берілетін UDCA белгілі холестаз көрсеткіштерінде қолданылады; диагноз бен препаратқа қарай шамамен 13–15 мг/кг/тәулік мөлшері тағайындалады. Бұл дені сау адамға арналған жалпы «DCA детоксикациясы» мөлшері емес. UDCA/TUDCA зерттеулері апоптоз, митохондрия және эндоплазмалық тор стресінің өзгерісін сипаттайды, бірақ жасушалық қорғаныс өт қышқылы диареясын, MASH немесе тоқ ішек қатерін емдейді дегенді білдірмейді. UDCA айналымдағы қорға кіреді, конъюгацияланады және микробтар арқылы өзгеруі мүмкін. Өт жолы бітелгенде не бауырдың ауыр ауруында ерекше сақтықпен, нақты көрсеткіш және бақылау қажет.
BSH-оң пробиотиктер. Тостағаншада GCA гидролиздейтін штамм аш ішекте міндетті түрде сақталмайды, нәжіспен өт қышқылы жоғалуын өзгертпейді, LDL-ді төмендетпейді және клиникалық нәтижені жақсартпайды. Пробиотик зерттеулерінде BSH, холестеринді байланыстыру, рацион өзгерісі және штаммның өзге қасиеттері қатар кездеседі. Түр атауы бірыңғай әсерді дәлелдемейді, «аса белсенді BSH» әмбебап липид төмендететін ем емес. Нақты өнімді бағалағанда штамм, тірі доза, ұзақтық, бастапқы LDL, салыстыру тобы және өлшенген клиникалық нәтиже маңызды. Штамм қасиеті мен дәлелденген нәтиже айырмасын пробиотиктер мен қауіпсіздік материалынан да қараңыз.
BSH-ны тәжірибелік тежеу. Yao және әріптестері колонизацияланған тышқан моделінде B. thetaiotaomicron BSH генін өзгертіп, өт қышқылы профилі мен метаболизм көрсеткіштерінің өзгергенін байқады; бұл дәрімен тежеу емес. Кейін Adhikari және әріптестері каталитикалық Cys-ке бағытталған фторметилкетон тобы бар ковалентті химиялық зонд жасады. Тышқанға берілген бір реттік доза нәжістегі BSH белсенділігі мен деконъюгацияланған қышқылдардың үлесін азайтты, бірақ жарияланым адамдарда семіздік, стеатоз немесе диабеттің алдын алатынын көрсетпеді. Ұзақ уақыт тежеудің патогенге төзімділікке, микробтық экологияға және липид сіңуіне әсерін зерттеу қажет. DCA-ны ғана азайту үшін BSH-ны басу — тым тар мақсат.
Рацион, талшық және полифенолдар. David және әріптестерінің қысқа адам зерттеуінде он ерікті негізінен жануар немесе өсімдік өнімдерінен тұратын рацион ұстанды; жануарға негізделген рацион микробтық транскрипттерді өзгертті, нәжістегі өт қышқылдары мен DCA-ны арттырды және Bilophila көбеюімен қатар жүрді. Бұл қысқа экспозиция болашақтағы қатерлі ісікті өлшеген жоқ әрі жануар майы көп кез келген рацион DCA-ны үш-бес есе арттырады дегенді дәлелдемейді. Еритін тағамдық талшық қышқылдарды байланыстыру, транзит және ашу арқылы өт қышқылы қорына әсер етуі мүмкін; нәтиже түрі мен дозаға байланысты. Тағамдық талшықты жеткілікті тұтынудың негізі BSH гипотезасынан кең. Берберин, куркумин және силимарин тәжірибелік жүйелерде көптеген нысанаға әсер етеді; бір нәжіс арақатынасына қарап оларды BSH немесе FXR-дің дәлелденген селективті реттегіші ретінде ұсынуға негіз жоқ. Берберин фармакологиясы бұл механизмдерді клиникалық уәделерден ажыратуға көмектеседі.
| Араласу не зерттеу | Популяция және ұзақтығы | Бақыланғаны | Дәлелденбегені |
|---|---|---|---|
| Walters: обетихол қышқылы, 25 мг/тәулік | Бастапқы диареясы бар 10, екіншілік түрі бар 10, басқа түрі бар 8 адам; екі апта, ашық | FGF19 өсті, C4 түсті; бастапқы топта нәжістің кей көрсеткіштері жақсарды | Барлығына рандомизацияланған ұзақ пайда не BSH арқылы әсер |
| Camilleri: колесевелам, 1875 мг күніне екі рет | Диарея басым тітіркенген ішек синдромы және мальабсорбция; 10 күн, ашық | 48 сағаттық нәжіс қышқылдары, C4 және нәжіс көрсеткіштері өзгерді | Нәжістегі BSH-ның әмбебап диагностика не ем рөлі |
| David: жануар текті және өсімдік текті рацион | 10 ерікті, қысқа кезеңдер | Микробиота, нәжіс қышқылдары, DCA және Bilophila жылдам өзгерді | Ұзақ қатерлі ісік профилактикасы не жеке DCA межесі |
| Yao: генетикалық өзгерген BSH | Гнотобиотикалық тышқандар | Өт қышқылы құрамы мен метаболизм сипаттары өзгерді | Адамдағы тежегіш дәрінің әсері |
| Adhikari: BSH ковалентті зонды | Биохимиялық зерттеу және тышқанға бір доза | Нәжістегі BSH мен деконъюгацияланған қышқылдар азайды | Адамда семіздік, MASH не инфекция профилактикасы |
| Buffie: C. scindens | Тышқандар және ауруханада жатқан пациенттердегі байланыстар | Екіншілік қышқылдар C. difficile-ге төзімділікпен қатар болды | CDI бар пациентті бір бактериямен емдеу |
LC–MS/MS CA, CDCA, олардың глицин және таурин конъюгаттары, DCA, LCA, UDCA, эпимерлер мен сульфаттарды ажырата алады. Қан, мықын ішек ішіндегісі және 48 сағаттық нәжіс әртүрлі ағындарды көрсетеді. Тамақтан кейінгі уақыт, антибиотик, секвестрант, транзит, сынама алу тәсілі және аналитикалық калибрлеу нәтижені өзгертеді. Бос түрлердің конъюгацияланған түрлерге арақатынасы — жанама көрсеткіш қана, өйткені бос қышқыл сіңуі, әрі қарай түрленуі немесе сынамаға түспеуі мүмкін. DCA+LCA-ның CA+CDCA-ға қатынасы BSH, bai, сіңу және бауыр кері байланысын араластырады; «>80% = канцерогендік қауіп» клиникалық тұрғыдан расталған шек емес.
Өт қышқылдары диареясына күдік болса, қолжетімді жағдайда SeHCAT сақталуын, 48 сағаттық нәжіс өт қышқылдарын, синтездің суррогаты ретінде ашқарындағы сарысулық C4 пен әдісіне сай түсіндірілетін FGF19 өлшеуге болады. Ешбір маркер BSH белсенділігін тікелей білдірмейді. C4 тәулік уақытына, бауыр күйіне және дәрілерге қарай өзгереді, сондықтан зертхана контекстінсіз 47 нг/мл сияқты мәнді барлық әдіс пен популяцияға қолдануға болмайды. Бауыр немесе колоректалды ауру мәселесі болса, үйдегі «дегидроксилдену индексі» емес, тиісті клиникалық алгоритм шешуші болады.
Бұл биохимиядан шығатын практикалық қорытынды — BSH-ны барынша күшейтуге де, тежеуге де үндеу емес. Қай қышқыл, қай компартментте және қандай концентрацияда өзгергенін, оны қалай өлшегенін және адамдарда қандай нәтиже көрсетілгенін нақтылау керек. BSH конъюгаттардан бос қышқылдарға жол ашады; bai мен HSDH өзге молекулалар түзеді; ие рецепторлары мен тасымалдаушылары жауаптың тағы бір қабатын анықтайды. Осы шекараларды сақтау өт қышқылы профилін зерттеуге пайдалы етеді, бірақ оны жеке диагнозға немесе әмбебап қоспа жоспарына айналдырмайды.
Жоқ. BSH конъюгаттан глицинді не тауринді ажыратады. Бос CA-дан DCA, CDCA-дан LCA түзу үшін бөлек бактериялық bai 7α-дегидроксилдену жолы қажет.
Жоқ. Деконъюгация ерігіштікке, сіңуге, рецептор сигналдарына және микроб қоректенуіне әр бағытта ықпал етуі мүмкін. Нәтиже басқа ферменттер мен ие физиологиясына тәуелді.
Олар микробтың ықтимал қабілетін көрсетеді, бірақ белсенді ақуызды, субстрат таңдауын, жергілікті реакция жылдамдығын немесе клиникалық нәтижені өлшемейді.
Бір DCA концентрациясы жеке онкологиялық қауіптің расталған шегі емес. Тін экспозициясы, қышқыл қоры, рацион, транзит, қабыну және әдеттегі клиникалық баға маңызды.
Тоқ ішекке қышқылдың артық жетуі мықын ішек зақымынан немесе FGF19 кері байланысы жеткіліксіз болып синтез артқаннан болуы мүмкін. BSH жалғыз не жеткілікті түсінік емес.
Жоқ. Тышқандардағы генетикалық және химиялық тәжірибелер өт қышқылы қорын өзгерту мүмкіндігін көрсетеді, бірақ адамдағы тиімділік пен қауіпсіздікті дәлелдемейді.