BSH va o‘t kislotalari: mikrob dekon’yugatsiyasidan retseptorlar va klinik dalillargacha
BSH o‘t kislotasi kon’yugatlarini qanday uzishi, bai orqali DCA va LCA hosil bo‘lishidan farqi hamda FXR, TGR5, diareya va ingibitorlar haqidagi dalillar chegarasi.
«O‘t tuzlari gidrolazasi» atamasini dezoksixol va litoxol kislotalarini ishlab chiqaradigan ferment nomi deb tushunish oson. Aslida bakterial BSH o‘t kislotasi bilan glitsin yoki taurin orasidagi amid bog‘ini uzadi. Steroid yadrosidan 7α-gidroksil guruhini olib tashlash esa funksional bai genlariga ega kam sonli bakteriyalar bajaradigan boshqa, ko‘p bosqichli jarayondir. BSH ajratgan erkin o‘t kislotasi shu yo‘lga substrat bo‘lishi, epimerlanishi, so‘rilishi yoki tanadan chiqib ketishi mumkin. Qaysi yo‘l ustun bo‘lishi faqat bsh geniga emas, xo‘jayin organizmga, mikrob jamoasiga, substrat mavjudligi va reaksiya joyiga bog‘liq.
Bu ferment kimyosi, mikrob genetikasi, retseptor fiziologiyasi va klinik holatlar bo‘yicha bayoniy sharhdir. 2026-yil 9-oktabrda BSH tuzilishi va tarqalishi, BSH ingibitorlari, bai ga bog‘liq ikkilamchi kislota hosil bo‘lishi, kolonizatsiya rezistentligi va o‘t kislotali diareya sinovlariga oid birlamchi ishlar maqsadli ravishda qayta tekshirildi. To‘liq qamrovli qidiruv yoki tarafkashlik xavfining formal bahosi o‘tkazilmadi; GRADE baholash va tashqi taqriz ham bo‘lmadi. Tozalangan ferment, gnotobiotik sichqon, sog‘lom ko‘ngilli va diareyali bemor haqidagi natijalar alohida ko‘riladi, chunki ularni bir vaziyatdan boshqasiga avtomatik ko‘chirish mumkin emas.
Xo‘jayin organizmidagi havza: sintez, kon’yugatsiya va qaytish
Insondagi asosiy birlamchi o‘t kislotalari — xol kislota (CA; 3α, 7α va 12α gidroksil guruhlari) va xenodezoksixol kislota (CDCA; 3α va 7α). Jigardagi klassik yo‘l endoplazmatik retikulumdagi CYP7A1 dan boshlanadi: xolesterin 7α-gidroksixolesteringa aylanadi, keyin HSD3B7 7α-gidroksi-4-xolesten-3-onni hosil qiladi; u C4 deb ham ataladi. CYP8B1 12α-gidroksil guruhining qo‘shilishini belgilab, sintezni CA tomon yo‘naltiradi; bu qadam bo‘lmasa CDCA ning nisbiy ulushi ortadi. Muqobil yo‘l mitoxondrial CYP27A1 ning yon zanjirni oksidlashidan boshlanadi va CYP7B1 ni ham o‘z ichiga oladi. Bu kompartmentlar va boshqaruvchilardan iborat tarmoq, jigarda xolesterinning bevosita «DCA ga aylanishi» emas. O‘t kislotalarining najas bilan yo‘qotilishi xolesterindan yangi sintezni qo‘llab-quvvatlaydi, ammo har bir yo‘lning o‘zgarmas ulushi yoki barcha odamlar uchun yagona CA:CDCA nisbati yo‘q.
Sekretsiyadan oldin jigar SLC27A5/BACS orqali ATP sarflab, kislotaning karboksil guruhini faollashtiradi; BAAT esa atsil guruhini glitsin yoki taurinning biriga ko‘chiradi. Bu amid kon’yugatsiyasi, sulfatlanish emas. Xol kislota uchun ikki umumiy bosqichni quyidagicha yozish mumkin:
Taurin bilan hosila tauroxolat (TCA), CDCA bilan esa GCDCA yoki TCDCA bo‘ladi. Ichak muhitida glitsin kon’yugatlarining karboksil guruhi va taurin kon’yugatlarining sulfonati kuchli ionlashgan. Ularning amfipatik yuzasi fosfatidilxolin va lipoliz mahsulotlari bilan aralash mitsellalar hosil qilib, lipidlarni shilliq qavatga tashishga yordam beradi. Eruvchanlik, mitsella hosil bo‘lishining kritik konsentratsiyasi va membranaga ta’sir pH, tuzlar, fosfolipidlar hamda aralashma tarkibiga bog‘liq. Tozalangan erkin kislotada o‘lchangan CMC ni ichak tarkibiga shunchaki ko‘chirib bo‘lmaydi; gidrofob metabolit har qanday konsentratsiyada «zahar» bo‘lib qolmaydi.
BSEP/ABCB11 kon’yugatsiyalangan tuzlarni ATP sarflab gepatotsitning kanal membranasi orqali chiqaradi. MDR3/ABCB4 o‘tga fosfatidilxolin yetkazadi, ABCG5/ABCG8 esa xolesterin chiqarilishiga hissa qo‘shadi. Ovqatdan keyin tuzlar ingichka ichakka tushadi va asosan terminal yonbosh ichakda qayta so‘riladi: apikal ASBT/SLC10A2 natriy gradientidan foydalanadi; FABP6/IBABP ularni enterotsit ichida bog‘laydi; bazolateral OSTα–OSTβ portal qonga o‘tkazadi. NTCP/SLC10A1 va OATP bir nechta kon’yugatsiyalangan va kon’yugatsiyalanmagan shakllarning jigarga olinishi uchun xizmat qiladi. Qaytgan kislotalar yana kon’yugatsiyalanishi mumkin. Yo‘g‘on ichakka yetadigan miqdor sekretsiya, tranzit vaqti, yonbosh ichak funksiyasi va mikrob o‘zgarishlariga bog‘liq. «95%» normal aylanish uchun taxminiy ko‘rsatkich, yonbosh ichagi rezeksiya qilingan odamdagi qat’iy ulush emas.
Sog‘lom aylanishda nisbatan kichik havza bir kunda ichakdan ko‘p marta o‘tadi. Shu bois bir necha ovqatdan keyin ajratilgan kislotalar massasi havza hajmiga ham, najas bilan yo‘qotilgan miqdorga ham teng emas. Bu «BSH oshganini» talqin qilishda muhim: dekon’yugatsiya so‘rilish joyi, retseptor signali va yo‘qotilishni o‘zgartirishi mumkin, ammo bu uch massani bitta najas tahlilidan hisoblab bo‘lmaydi. Terminal yonbosh ichak kasalligi yoki rezeksiyasi kon’yugatlarning afzal faol so‘rilishini buzadi, biroq erkin kislotalar boshqa bo‘limlarda passiv so‘rilishi mumkin. Kimyoviy o‘zgarish va tashilish ingichka hamda yo‘g‘on ichakda turlicha ekspozitsiya yaratadi.
| Joy | Reaksiya yoki tashilish | BSH uchun ahamiyati |
|---|---|---|
| Jigar: CYP7A1/CYP8B1 va CYP27A1 | Xolesterindan CA va CDCA hosil bo‘lishi | Substrat tarkibi sintez va qayta aloqa bilan belgilanadi |
| Jigar: BACS va BAAT | Glitsin yoki taurin bilan kon’yugatsiya | BSH uzadigan amid bog‘ini hosil qiladi |
| O‘t va ingichka ichak | BSEP, MDR3, mitsellalar, ASBT | Mikrob va xo‘jayinning substratga kirishini belgilaydi |
| Yonbosh ichak va jigar | OSTα/β, NTCP, OATP | Kislotalarni aylanishga qaytaradi, mikrob BSH sini o‘lchamaydi |
| Yo‘g‘on ichak | BSH, HSDH, bai, passiv so‘rilish | Turli fermentlar turli mahsulot va signal beradi |
Bakterial BSH aynan nima qiladi
BSH yoki xoloylglitsin gidrolaza (EC 3.5.1.24) N-terminal nukleofilga ega amidogidrolazalar oilasiga kiradi. O‘rganilgan Clostridium perfringens tuzilishida oqsil tetramer hosil qiladi; faol markaz substratning steroid qismini ham, amid bog‘ini ham joylashtiradi. Katalitik N-terminal sisteinning raqamlanishi boshlang‘ich metionin olib tashlanishiga bog‘liq; shu bois turli bayonlardagi Cys1 va Cys2 funksional jihatdan ayni qoldiqni anglatishi mumkin. Uning tiol guruhi amid bog‘ining karboniliga hujum qiladi. Tetraedrik oraliq mahsulotdan so‘ng glitsin yoki taurin ajraladi va atsil-ferment qoladi; suv tioefirni gidrolizlab o‘t kislotasini chiqaradi. Umumiy reaksiya steroid halqalaridan gidroksil guruhini olib tashlamaydi:
C. perfringens ning struktur tadqiqoti steroid va aminokislota qismlarining tanilishini ko‘rsatdi; u barcha BSH lar uchun yagona va qiymatlarini belgilamaydi. Turli shtammlarning izofermentlari steroid yadrosi, glitsin va taurinning turli birikmalarini afzal ko‘radi. Masalan, tozalangan Bacteroides thetaiotaomicron BSH sini o‘rgangan biokimyoviy ish TUDCA gidrolizini aniqlagan, ammo TCA gidrolizini aniqlamagan; barcha Bacteroides BSH lari taurinni tezroq ajratadi deb umumlashtirish xato. ma’lum pH, harorat, substrat va ajralgan aminokislotani aniqlash kabi tahlil usulida o‘lchanadi. fermentlarni faqat taqqoslanadigan sharoitlarda solishtirishga yordam beradi. Najasdagi bsh nusxalari soni yonbosh ichakda har bir o‘t tuzining gidroliz tezligini o‘lchamaydi.
Odatdagi kinetik tajribada tozalangan rekombinant oqsil, bitta kon’yugatning belgilangan konsentratsiyasi va tezlik boshlang‘ich holatga yaqin bo‘lgan paytdagi namuna ishlatiladi. Ninhidrin sinovi ajralgan aminokislotani aniqlaydi; mass-spektrometriyali xromatografiya boshlang‘ich substratni erkin o‘t kislotasidan farqlashi mumkin. Ikkala usul ham nazoratlarni talab qiladi: bakterial muhitda erkin glitsin avvaldan bo‘lishi mumkin, ayrim izomerlar standart bo‘lmasa yomon ajraladi, substratning kamayishi esa adsorbsiya yoki keyingi o‘zgarishni aks ettirishi mumkin. Ichakda millimolyar darajada bir nechta raqobat qiluvchi tuzlar mavjud; shu sabab bir substratning Michaelis–Menten bo‘yicha gidrolizi butun aralashmani ifodalamaydi. Faol oqsil ulushi, N-terminal ishlov, o‘t kislotalari konsentratsiyasi va suv mavjudligi laboratoriya tezligini ichak tarkibiga ko‘chirish mumkinligini belgilaydi.
BSH vazifasidagi genlar bakteriyalarning turli shoxlarida uchraydi. Jones va hamkasblarining funksional metagenomikasi keng va takroriy tarqalishni aniqladi hamda ayrim bakteriyalarda BSH o‘tga chidamlilikka hissa qo‘shishini ko‘rsatdi. Muayyan substrat bilan tahlil qilinmagan gomolog gen faollikni isbotlamaydi; bir shtamm xususiyatini butun Lactobacillus, Bifidobacterium yoki Bacteroides turkumiga ko‘chirib bo‘lmaydi. Fermentning joylashuvi — hujayra ichida, yuzasida yoki tashqariga chiqqanidan keyin — o‘t tuzlariga kirishni o‘zgartiradi. Gen mavjudligi, transkript, faol oqsil va yakuniy o‘t kislota profili boshqa-boshqa o‘lchovlardir. «Bakteriyalarning 80% ida BSH bor» kabi asossiz foizlar yoki substrat tanlovining universal to‘rt toifali shkalasi muayyan insonning funksional holatini bildirmaydi.
Dekon’yugatsiya mikrobning o‘tga chidashiga yordam berishi mumkin, ammo ta’sir yo‘nalishi muhit kimyosiga bog‘liq: bir pH da erkin kislota osonroq cho‘kishi, boshqa pH da membranadan o‘tib ko‘proq toksik bo‘lishi mumkin. Ajralgan taurin boshqa organizmlarni oziqlantirishi mumkin, lekin bu BSH-musbat har bir shtamm taurinni o‘zi elektron akseptori sifatida ishlatishini anglatmaydi. Natijani mikrob jamoasi, shilliq, xo‘jayin o‘t kislotalari va ratsion birgalikda belgilaydi. «BSH ko‘p bo‘lsa ichak doim himoyalanadi» deyish «BSH doim zahar hosil qiladi» degan gap kabi soddalashtirilgan.
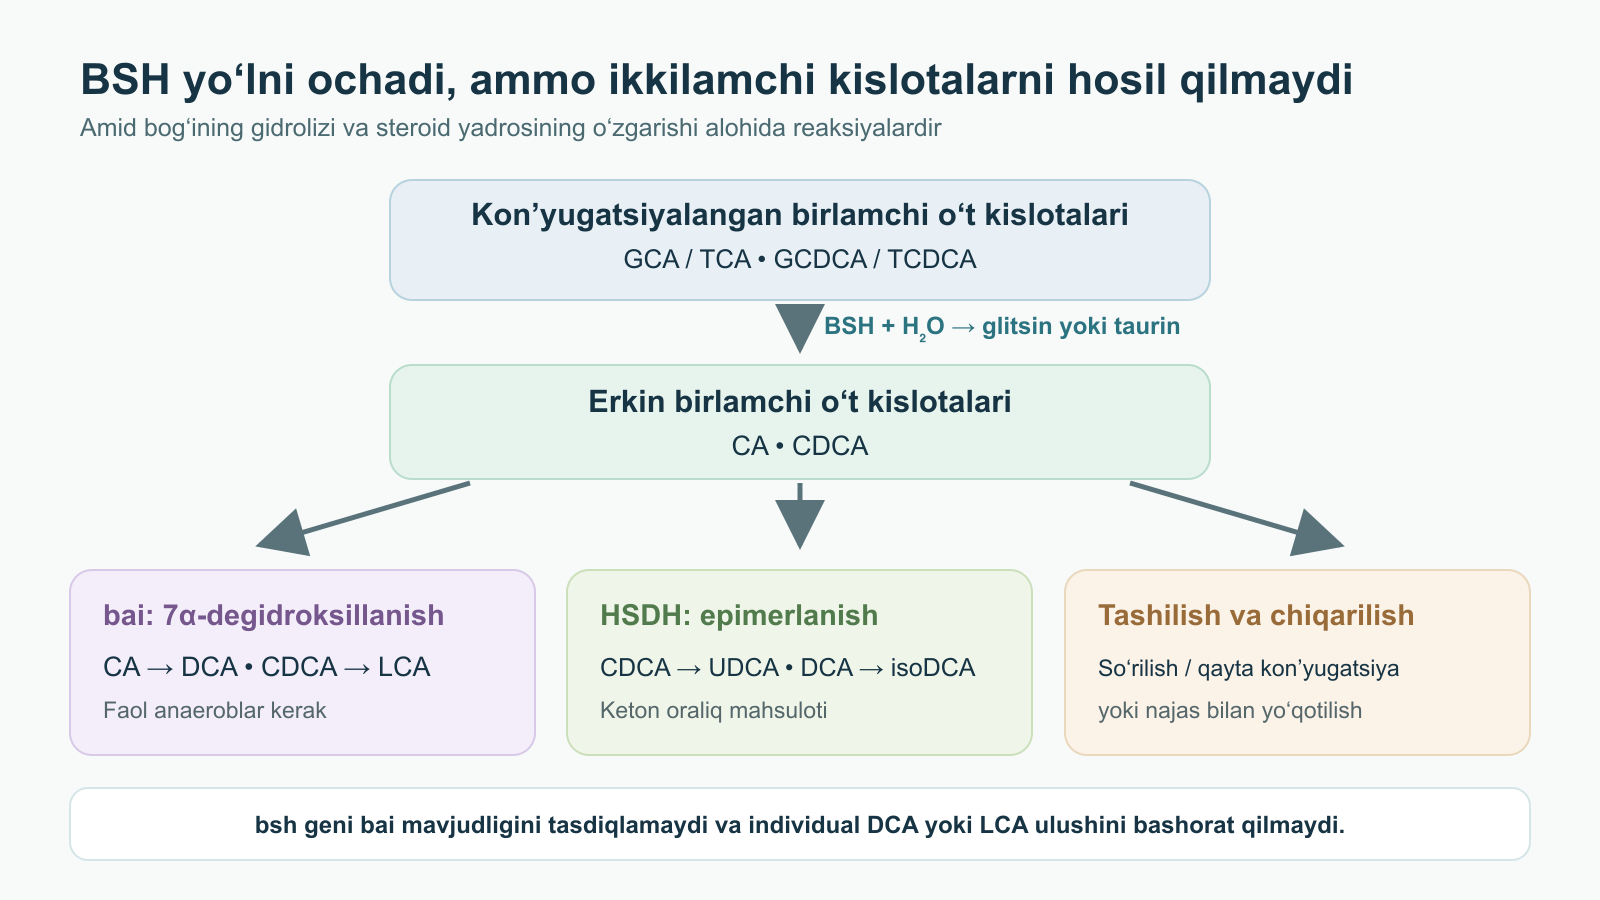
Dekon’yugatsiya bir nechta mikrob yo‘lini ochadi
Erkin CA va CDCA 7α-degidroksillanish bajaradigan bakteriyalar uchun substrat bo‘lishi mumkin, ammo substrat mavjudligi uning albatta o‘zgarishini anglatmaydi. Funksional bai genlariga ega kam sonli anaeroblar, jumladan o‘rganilgan Clostridium scindens, oksidlanish, suvsizlanish va qaytarilish bosqichlarini bajaradi. Erkin kislotaning tashilishi, BaiB KoA-ligaza bilan faollashishi va BaiA orqali 3α-gidroksilning o‘zgarishidan so‘ng yo‘l kon’yugatsiyalangan to‘yinmagan oraliq mahsulot hosil qiladi va BaiE degidraza ishtirokida 7α-OH ni olib tashlaydi. Keyingi reduktazalar va KoA ko‘chishi to‘yingan tuzilmani tiklaydi. Oraliq mahsulotlarning aniq tartibi va ayrim Bai oqsillarining vazifasi organizm hamda tajribaga qarab farq qiladi; klinik najas tahlili har bir bosqichni ko‘rsatmaydi. Tasdiqlanmagan batafsil strelkali sxemadan ko‘ra umumiy kimyoni ko‘rsatish xavfsizroq:
DCA CA ning 7α-gidroksilini yo‘qotadi, ammo 12α-OH ni saqlaydi; LCA CDCA dan hosil bo‘lib, faqat 3α-OH ni saqlaydi. Ikkalasi ikkilamchi o‘t kislotalari deb ataladi. bai tashuvchisi yoki mos o‘sish sharoiti bo‘lmasa, BSH faqat erkin birlamchi kislotalarni hosil qiladi. Ikkala gen tizimi mavjud bo‘lganda ham tranzit vaqti, substrat miqdori, pH, kislorod, raqobatchi mikroblar va so‘rilish muhim. Shuning uchun «BSH ni to‘sish DCA ni butunlay to‘xtatadi» yoki «oz sonli bai bakteriyasi havzaning deyarli hammasini o‘zgartiradi» degan fikrlar universal fiziologik qonun emas.
Gidroksisteroid degidrogenazalar (HSDH) boshqa yo‘nalishlarni ta’minlaydi. 7α-HSDH va 7β-HSDH jufti 7-okso oraliq mahsulot orqali CDCA gidroksilining konfiguratsiyasini teskarilab, ursodezoksixol kislota (UDCA) hosil qilishi mumkin. 3α/3β-HSDH jufti isoDCA kabi 3β-epimerlarni hosil qiladi. Devlin va Fischbach Ruminococcus gnavus hamda boshqa organizmlarda isoDCA hosil bo‘lishini ta’riflagan; tajribalarda bu DCA ning Bacteroides o‘sishiga ta’sirini o‘zgartirgan. Alohida metabolitlar bilan o‘tkazilgan tajribalar T-hujayra differensiatsiyasiga ham ta’sir topgan. Bu ikkilamchi kislotalarning butun havzasi «yallig‘lanishga qarshi» yoki HSDH li shtamm kolitni davolaydi degani emas.
HSDH reaksiyalari oksidlangan va qaytarilgan NAD(P)⁺/NAD(P)H kofaktorlariga, reaksiya yo‘nalishi va gidroksil joyiga bog‘liq. bai orqali kislorodni olib tashlash va keton oraliq mahsuloti orqali α→β konfiguratsiyani o‘zgartirishning atom muvozanati turlicha. UDCA ni «BSH hosil qiladigan gidrofil mahsulot» deyish noto‘g‘ri: BSH substratni bo‘shatishi mumkin, ammo stereoinversiyani boshqa fermentlar bajaradi. Xuddi shunday, isoDCA umumiy DCA miqdori kamaydi degani emas: gidroksil konfiguratsiyasi o‘zgargan va bakteriya yoki retseptor bilan o‘zaro ta’sir ham boshqacha bo‘lishi mumkin.
| Boshlang‘ich substrat | Ferment bosqichi | Mahsulot | Muhim cheklov |
|---|---|---|---|
| GCA yoki TCA | BSH: amid gidrolizi | CA + glitsin/taurin | CA birlamchi kislota bo‘lib qoladi |
| GCDCA yoki TCDCA | BSH | CDCA + glitsin/taurin | BSH LCA ni bevosita hosil qilmaydi |
| Erkin CA | bai kaskadi, 7α-degidroksillanish | DCA | Faol shtamm va mos sharoit kerak |
| Erkin CDCA | bai kaskadi | LCA | LCA so‘rilish va zararsizlantirishga ham bog‘liq |
| CDCA | 7-okso shakl orqali 7α/7β-HSDH | UDCA | Epimerlanish degidroksillanish emas |
| DCA | 3-okso shakl orqali 3α/3β-HSDH | isoDCA | Izomer va DCA bakteriyalarga turlicha ta’sir qilishi mumkin |
Erkin kislotalar va ularning kon’yugatlari zaryad, eruvchanlik, kalsiy yoki aralash mitsellalarga bog‘lanish jihatidan farqlanadi. Ammo «past pH barcha DCA ni kalsiy bilan cho‘ktiradi» degan sodda fikr haqiqiy konsentratsiyalar, ion tarkibi, ovqat yog‘i va ichak tarkibining notekisligini hisobga olmaydi. Eruvchan va bog‘langan ulushlar muvozanatini o‘rganish mumkin, lekin najas pH iga qarab muayyan odam shilliq qavatining shikastlanish xavfini aniqlab bo‘lmaydi.
Molekuladan signalga: FXR, TGR5 va himoya javoblari
O‘t kislotalari lipidlar bilan birga retseptorlarga ham bog‘lanadi. FXR/NR1H4 — ichak va jigardagi yadro transkripsiya omili. Ligand bog‘langanda uning RXR, koaktivatorlar va DNK javob elementlari bilan o‘zaro ta’siri o‘zgaradi. CDCA bir necha hujayra tizimlarida kuchli tabiiy agonist; boshqa kislotalarga javob tur, kon’yugatsiya, membrana orqali tashilish va tahlil tizimiga bog‘liq. qiymatlari ro‘yxati DCA oshganda butun tana «FXR dan TGR5 ga o‘tadi» degan xulosani bermaydi: turli hujayralar va konsentratsiyalarda ikkala signal bir vaqtda yuz berishi mumkin.
Yonbosh ichak enterotsitida FXR odamda FGF19 (sichqonda Fgf15) hosil bo‘lishini rag‘batlantiradi. Portal qondagi FGF19 jigar FGFR4/β-Klotho kompleksi orqali CYP7A1 transkripsiyasi va yangi o‘t kislota sintezini susaytiradi. Jigar FXR si eksport, kon’yugatsiya va SHP/NR0B2 boshqaruvchisiga ham ta’sir qiladi; CYP7A1 o‘zgarishini yagona yo‘lga bog‘lab bo‘lmaydi. Ichakning terminal qismi shikastlansa yoki FGF19 qayta aloqasi yetarli bo‘lmasa, jigar yo‘g‘on ichakka yetadigan kislotalarni ortiqcha ishlab chiqarishi mumkin. Bu mexanizm o‘t kislotali diareyada ahamiyatli. Walters ning kichik tadqiqotida birlamchi o‘t kislotali diareyasi bo‘lgan 10 kishiga ikki hafta davomida har kuni 25 mg obetixol kislota berilib, FGF19 oshgani va C4 kamaygani, ayrim simptomlar yaxshilangani kuzatildi; ikkilamchi diareyali 10 va idiopatik diareyali 8 kishi ham qatnashdi. Platsebosiz qisqa, ochiq tajriba FXR ni rag‘batlantirish universal tayyor davo ekanini isbotlamaydi.
TGR5/GPBAR1 — bilan bog‘langan membrana retseptori. Uning faollashuvi cAMP ni oshirib, PKA va boshqa effektor yo‘llarni ishga tushiradi. Model tizimlarida DCA va LCA TGR5 ni kuchli faollashtirishi mumkin. Enteroendokrin L-hujayralarda bu GLP-1 ajralishi bilan bog‘langan; makrofaglarda NLRP3 ham kiradigan yallig‘lanish signallariga ta’sir ta’riflangan. GPBAR1 ishlari metabolik va immun imkoniyatlarni ko‘rsatadi, ammo najasdagi metabolitning ortishi L-hujayra bazolateral membranasidagi retseptor bandligini o‘lchamaydi. GLP-2 ajralishi, ichak vorsinkalarining tiklanishi va diabetning oldini olish BSH dan boshlanadigan zanjirning muqarrar bo‘g‘inlari emas.
Watanabe ning sichqon tajribalarida o‘t kislotalari TGR5–cAMP–DIO2 ni faollashtirgan: deyodinaza T4 ni T3 ga aylantirib, to‘qimalardagi termogenezni oshirgan. Model, kislota mavjudligi va turga xos jigarrang yog‘ to‘qimasi muhim. Bundan BSH li qo‘shimcha odamda energiya sarfini yoki UCP1 ifodasini sezilarli oshiradi degan xulosa chiqmaydi. LCA VDR va PXR ni ham faollashtirishi, bular esa o‘t kislotalarining biotransformatsiyasi va chiqarilishiga bog‘liq bo‘lishi mumkin. LCA sulfatlanishi va boshqa yo‘llar erkin gidrofob molekulaga ta’sirni kamaytiradi; ichak, jigar va qondagi haqiqiy oqimlar farqlanadi.
Sichqonlar FXR mexanizmlari uchun foydali, lekin ularning o‘t kislotasi havzasida insondagi asosiy kislotalar hisoblanmaydigan murixol kislotalari ko‘p. Sayin ishida tauro-α- va tauro-β-murixolatlar sichqonda FXR antagonisti bo‘lgan; mikrob o‘zgarishlari yonbosh ichak Fgf15 va jigar Cyp7a1 ni o‘zgartirgan. Buni «TUDCA insondagi TβMCA ekvivalenti va FXR ning zarur antagonisti» deb ko‘chirish mumkin emas. Yao ayrim substratlarga tanlab ta’sir qiluvchi B. thetaiotaomicron BSH sini o‘rgangan; kolonizatsiyalangan sichqonda genni o‘chirish o‘t kislotasi profilini va tana vaznini o‘zgartirgan. Bu hayvon modelidagi mutant tajribasi, odamda BSH ingibitori dori sinovi emas.
| Retseptor yoki yo‘l | Joyi | Kuzatilgan bog‘lanish | Ko‘chirish chegarasi |
|---|---|---|---|
| Yonbosh ichak FXR → FGF19 | Enterotsit → portal qon → jigar | CYP7A1 ni susaytirib, sintezga qayta aloqa beradi | Najas BSH si FGF19 yoki shaxsiy qayta aloqani o‘lchamaydi |
| Jigar FXR/SHP | Gepatotsit | Sintez, tashilish va to‘planishdan himoyani boshqaradi | Bitta kislota yoki genga qisqartirilmaydi |
| TGR5 → cAMP | L-hujayralar, makrofaglar va boshqa to‘qimalar | Tajribada GLP-1 va hujayraviy immun ta’sirlar | BSH probiotigi bilan ozish yoki yallig‘lanish davosini isbotlamaydi |
| TGR5–DIO2 | Sichqon metabolik modellari | Mahalliy T3 faollashuvi va termogenez | Insondagi klinik natija belgilanmagan |
| VDR/PXR | Ichak va jigar | LCA javobi, biotransformatsiya va chiqarilish | Himoya signali yuqori ekspozitsiyani zararsiz qilmaydi |
Nega «ikkilamchi kislota» «zahar» degani emas
7α-gidroksilning olib tashlanishi odatda gidrofoblikni oshiradi: erkin DCA va ayniqsa LCA yetarli biologik mavjud konsentratsiyada membranalar va hujayra ichidagi organellalarga zarar yetkazishi mumkin. Hujayra kulturasida DCA mitoxondrial oksidlovchi stress va NF-κB, apoptoz yoki proliferatsiya signallaridagi o‘zgarishlarni keltirib chiqargan; ta’sir hujayra liniyasi va dozaga bog‘liq. β-katenin va boshqa yo‘llar bo‘yicha tajribalar o‘rganish uchun mexanizm beradi, lekin o‘sma hujayrasi kulturasi odam uchun xavfsiz ovqat yog‘i miqdorini o‘lchamaydi va najas DCA si kolorektal saratonning mustaqil sababi ekanini isbotlamaydi.
Doza va molekulyar shakl ekspozitsiyani belgilaydi. O‘lchangan kislota erkinmi yoki kon’yugatsiyalanganmi, suv fazasida eriganmi, aralash mitsellaga kirganmi, kalsiyga bog‘langanmi va epiteliy bilan qancha vaqt tegishib turgani ma’lum bo‘lishi lozim. So‘rilgach jigar DCA ning bir qismini yana kon’yugatsiyalaydi; LCA sulfatlanib chiqarilishi mumkin. Bundan tirik ichak uchun «0,2 mM universal lizis chegarasi» kelib chiqmaydi: model muhitdagi son shilliq va fosfolipid himoyasini hamda najas bilan dinamik yo‘qotilishni hisobga olmaydi. Shu bilan birga DCA ning fiziologik mavjudligi boshqa ekspozitsiya yoki to‘qima sezgirligida zarar bo‘lmaydi degani emas.
Eksperimental ishlar DCA ni reaktiv kislorod shakllari, mitoxondrial potensial, kaspazalar, β-katenin, EGFR/MAPK va NF-κB bilan bog‘laydi. Bu hodisalar yagona chiziqli «saraton yo‘li» bo‘lishi shart emas: bir vaziyatda hujayra nobud bo‘ladi, boshqasida yashab qolib proliferatsiyasi o‘zgaradi. Ikkilamchi kislotalar, ratsion yoki neoplaziya o‘rtasidagi epidemiologik aloqalarni ratsion tarkibi, tranzit, yallig‘lanish, mikrob jamoasi va teskari sababiylikdan ajratish qiyin. Metabolit kuzatuvi, mexanistik ehtimollik va muayyan BSH ingibitori saratonni oldini olishi haqidagi dalil — uch xil dalil darajasidir.
Ikkilamchi kislotalar qarama-qarshi ta’sir ham ko‘rsatishi mumkin. C. difficile kulturasi sharoitida tauroxolat glitsin bilan spora unishini boshlab bergan; DCA ham unishni rag‘batlantirishi, biroq keyingi vegetativ o‘sishni to‘xtatishi mumkin. Buffie ishida 7α-degidroksillovchi C. scindens yo‘qolishi antibiotiklardan keyingi sezgirlik bilan bog‘liq bo‘lgan; tajriba modeliga bu bakteriyani qo‘shish ikkilamchi kislotalar ishtirokida himoyani kuchaytirgan. Shuning uchun «mikrobiomni yaxshilash uchun barcha DCA ni yo‘qotish» infeksiyaga qarshi himoyani e’tibordan chetda qoldirishi mumkin. Bu odamga o‘zboshimchalik bilan C. scindens berish yoki infeksiyani BSH kapsulasi bilan davolashga asos emas: kolonizatsiya rezistentligi modeli klinik sinovni almashtirmaydi.
O‘t kislotali diareyada asosiy savol ko‘pincha boshqa: terminal yonbosh ichak kasalligi yoki rezeksiyasi sabab yo‘g‘on ichakka ortiqcha kislota yetib boradi yoxud FGF19 qayta aloqasi yetishmay, sintez ortadi. Suv sekretsiyasi, tranzitning tezlashishi va retseptor ta’sirlari simptomlarga qo‘shilishi mumkin; alohida DCA ta’siri butun tashxisni belgilamaydi. «Malabsorbsiya» atamasi sintez ortishi sababli bo‘ladigan birlamchi shaklni to‘liq qamramaydi. O‘t pufagi olinganidan keyin, ayrim ichak kasalliklarida va ba’zi dorilar qabulida klinik vaziyat o‘zgaradi. BSH profili tekshiruvsiz «1–3 tur» tashxisini avtomatik qo‘ymaydi.
Yo‘g‘on ichakdagi erkin CDCA va DCA sekretsiya va harakatni oshirishi mumkin, ammo ortiqcha keladigan kon’yugatsiyalangan tuzlar ham ahamiyatli. Najas hajmi bilan chiqarilish o‘zgaradi: tez tranzitning o‘zi BSH va bai uchun qoladigan vaqtni o‘zgartiradi, u faqat kislotalarning oqibati emas. Sababiylik ikki tomonlama. Bitta kislotaning najasdagi yuqori miqdori uning ko‘proq yetkazilganini, kam so‘rilganini yoki keyingi konversiyasi kamligini ko‘rsatishi mumkin. Klinik baholash «ortiqcha BSH» ga qarshi antimikrob ta’sirdan emas, surunkali diareya xususiyatlari va yonbosh ichak zararlanishi sabablarini aniqlashdan boshlanadi.
O‘t kislotalarining steatogepatit va ichak tomir to‘sig‘i bilan aloqasi inson profillari va modellarda o‘rganilmoqda. Ekilgan endoteliy, PV-1, sitokinlar va LCA haqidagi ma’lumotlar odamda «BSH → tomir to‘sig‘i o‘tkazuvchanligi → MASH/metastazlar» zanjirini belgilamaydi. To‘qima va qondagi kislota ekspozitsiyasi najasdagidan farq qiladi; najasda bai genlari kamayishi jigar fibrozining oldini olmaydi. Jigar kasalligi va infeksiyani «zaharli ikkilamchi o‘t kislotalari» degan bitta universal ko‘rsatkich bilan baholab bo‘lmaydi.
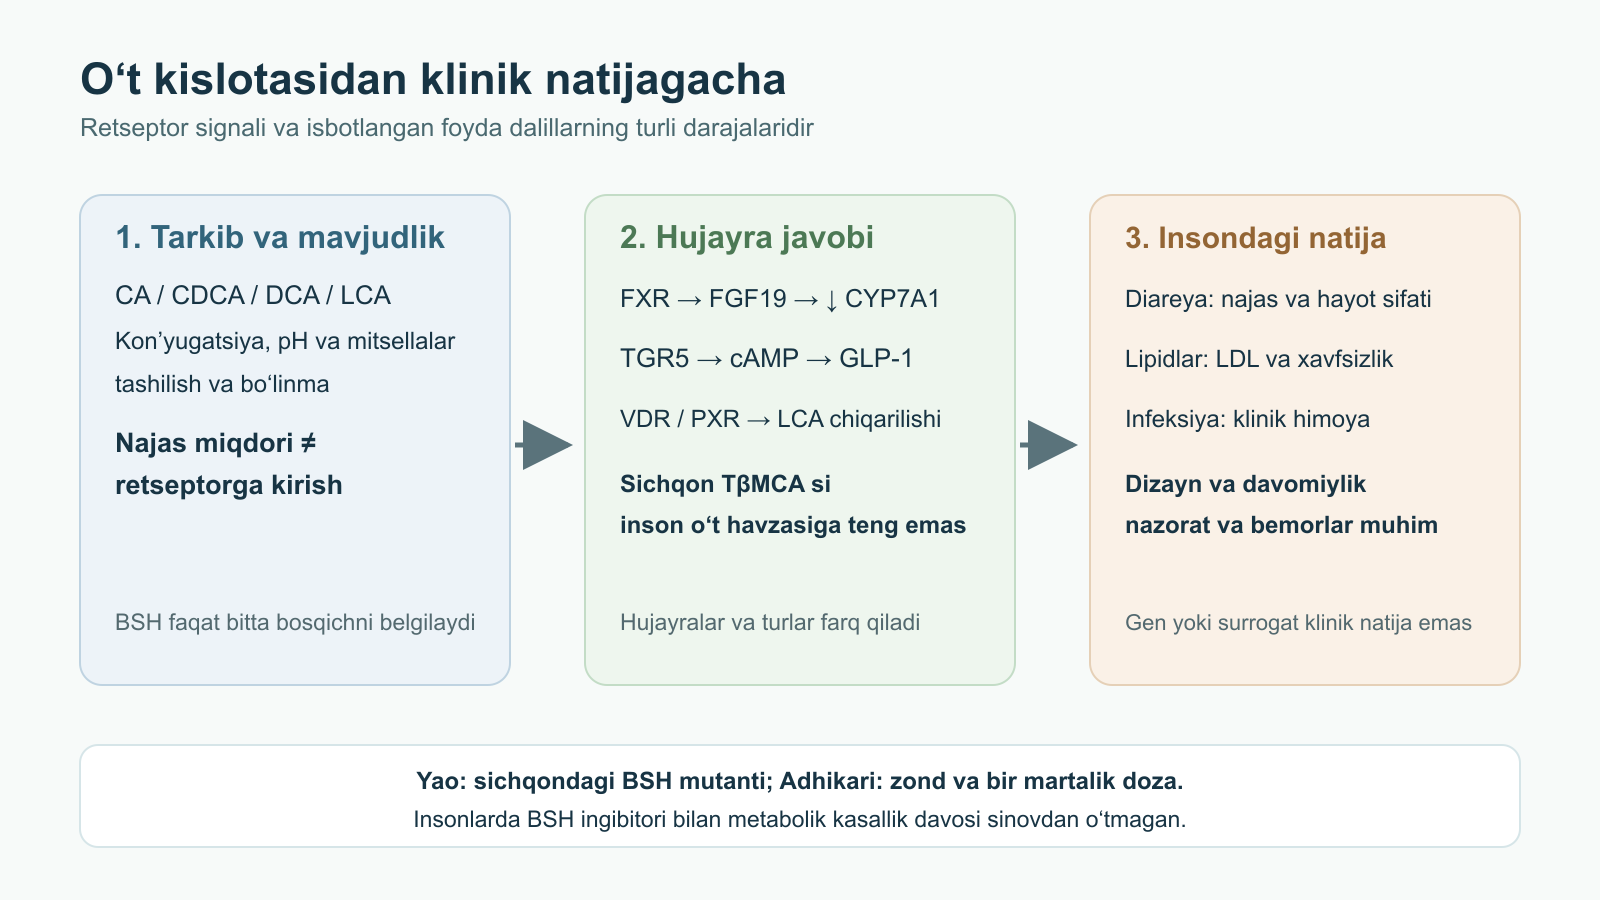
Insonlarda natija o‘lchangan aralashuvlar
O‘t kislotalarini bog‘lash. Xolestiramin va kolesevelam so‘rilmaydigan polimer sekvestrantlardir: musbat zaryadlangan guruhlari o‘t kislotalari anionlarini bog‘lab, najas bilan yo‘qotilishini oshiradi. Ular BSH faol markaziga xos emas, xo‘jayin havzasiga ta’sir qiladi. O‘t kislotali diareyada kolonotsitlarga mavjud kislota yukini kamaytirishi mumkin, ammo javob ko‘tara olish, doza va to‘g‘ri tashxisga bog‘liq. Camilleri ning diareya ustun bo‘lgan ta’sirlangan ichak sindromi va o‘t kislota malabsorbsiyasi bor bemorlardagi 10 kunlik ochiq tadqiqotida kolesevelam kuniga ikki mahal 1875 mg berilgan; 48 soatlik najas kislotalari, C4 va najas ko‘rsatkichlari o‘lchangan. Ko‘r-ko‘rona nazorat bo‘lmagani uchun kuzatilgan o‘zgarishlarni barcha bemorlarga tegishli deb bo‘lmaydi; sekvestrantning tasdiqlangan foydasi ham muammo ortiqcha BSH dan boshlanganini ko‘rsatmaydi. Smolalar boshqa dorilar so‘rilishiga xalaqit berishi va ba’zan qabziyat qilishi mumkin; qabul miqdori va oralig‘ini preparat hamda klinik holat belgilaydi.
UDCA va TUDCA. Ursodezoksixol kislota CDCA ning 7β-epimeridir. Retseptli UDCA muayyan xolestatik ko‘rsatmalarda ishlatiladi; tashxis va preparatga qarab taxminan 13–15 mg/kg/kun dozalar qo‘llanadi. Bu sog‘lom odam uchun umumiy «DCA detoks» dozasi emas. UDCA/TUDCA tajribalari apoptoz, mitoxondriya va endoplazmatik retikulum stressidagi o‘zgarishlarni tasvirlaydi, ammo hujayra himoyasi har qanday o‘t kislotali diareya, MASH yoki kolorektal xavfni davolash degani emas. UDCA aylanuvchi havzaga kiradi, kon’yugatsiyalanadi va mikroblar ta’sirida o‘zgarishi mumkin. Ayniqsa o‘t yo‘li to‘silganda yoki jiddiy jigar kasalligida davolash uchun alohida ko‘rsatma va nazorat zarur.
BSH-musbat probiotiklar. GCA ni laboratoriya plastinkasida gidrolizlaydigan shtamm ingichka ichakda albatta saqlanib qolmaydi, najasdagi o‘t kislota yo‘qotilishini o‘zgartirmaydi, LDL ni tushirmaydi yoki klinik natijani yaxshilamaydi. Probiotik tajribalarida BSH bilan birga xolesterin bog‘lanishi, ratsion o‘zgarishi va shtammning boshqa xususiyatlari bo‘lishi mumkin. Tur nomidan bir xil ta’sirni chiqarib bo‘lmaydi va «giperfaol BSH» universal lipid tushiruvchi davo emas. Muayyan mahsulot uchun aniq shtamm, tirik doza, muddat, boshlang‘ich LDL, taqqoslash guruhi va o‘lchangan klinik natija muhim. Shtamm xususiyati bilan isbotlangan natija farqi haqida probiotiklar va xavfsizlik sahifasida ham o‘qing.
BSH ni tajribada ingibitsiya qilish. Yao va hamkasblari kolonizatsiya qilingan sichqon modelida B. thetaiotaomicron ning BSH genini o‘zgartirib, o‘t kislotasi profillari va metabolik o‘lchovlar o‘zgarganini kuzatdi; bu dori bilan ingibitsiya emas edi. Adhikari va hamkasblari keyin katalitik Cys ga ta’sir qiladigan ftor-metil-keton guruhli kovalent kimyoviy zond yaratdi. Sichqonga bir martalik doza berilgach najas BSH faolligi va dekon’yugatsiyalangan kislotalar ulushi kamaydi, lekin maqola odamlarda semizlik, steatoz yoki diabetning oldini olishni ko‘rsatmadi. Uzoq muddatli susaytirishning patogenga qarshilik, mikrob ekologiyasi va lipid so‘rilishiga ta’sirini o‘rganish kerak. Faqat DCA ni kamaytirish uchun BSH ni bostirish haddan tashqari tor maqsaddir.
Ratsion, kletchatka va polifenollar. David va hamkasblarining qisqa insoniy taqqoslashida o‘n ko‘ngilli asosan hayvon yoki o‘simlik mahsulotlariga tayangan ratsion olgan; hayvon mahsulotlari ko‘p ratsion mikrob transkriptlarini o‘zgartirib, najasdagi o‘t kislotalari va DCA ni ko‘paytirgan va Bilophila ortishi bilan birga kuzatilgan. Bu qisqa ekspozitsiya kelajakdagi saratonni o‘lchamagan va hayvon yog‘i ko‘p har qanday ratsion DCA ni uch-besh baravar oshiradi degani emas. Eruvchan oziq kletchatkasi kislotalarni bog‘lash, tranzit va fermentatsiya orqali o‘t havzasiga ta’sir qilishi mumkin; natija turi va dozaga bog‘liq. Oziq kletchatkasi ni yetarli iste’mol qilishning sabablari BSH gipotezasidan kengroq. Berberin, kurkumin va silimarin tajriba tizimlarida ko‘p nishonlarga ta’sir qiladi; bitta najas nisbati asosida ularni BSH yoki FXR ning isbotlangan selektiv boshqaruvchisi sifatida buyurishga asos yo‘q. Berberin farmakologiyasi bu mexanizmlarni klinik va’dalardan ajratishga yordam beradi.
| Aralashuv yoki tadqiqot | Populyatsiya va muddat | Kuzatilgan holat | Nimani isbotlamadi |
|---|---|---|---|
| Walters: obetixol kislota, 25 mg/kun | Birlamchi diareyali 10, ikkilamchi diareyali 10, boshqa turdagi 8 kishi; ikki hafta, ochiq | FGF19 oshdi, C4 pasaydi; birlamchi guruhning ayrim najas ko‘rsatkichlari yaxshilandi | Barcha bemorlarda randomizatsiyalangan uzoq foyda yoki BSH orqali ta’sir |
| Camilleri: kolesevelam, 1875 mg kuniga ikki marta | Diareya ustun ichak sindromi va malabsorbsiya; 10 kun, ochiq | 48 soatlik najas kislotalari, C4 va najas ko‘rsatkichlari o‘zgardi | Najas BSH sining universal tashxis yoki davo rolini |
| David: hayvon mahsulotli va o‘simlik mahsulotli ratsion | 10 ko‘ngilli, qisqa davrlar | Mikrobiota, najas kislotalari, DCA va Bilophila tez o‘zgardi | Uzoq muddatli saraton profilaktikasi yoki shaxsiy DCA me’yorini |
| Yao: genetik o‘zgartirilgan BSH | Gnotobiotik sichqonlar | O‘t kislota tarkibi va metabolik belgilar o‘zgardi | Odamlarda ingibitor dori ta’sirini |
| Adhikari: kovalent BSH zondi | Biokimyoviy ishlar va sichqonga bir doza | Najas BSH va dekon’yugatsiyalangan kislotalar kamaydi | Odamlarda semizlik, MASH yoki infeksiya profilaktikasini |
| Buffie: C. scindens | Sichqonlar va shifoxonadagi bemorlardagi assotsiatsiyalar | Ikkilamchi kislotalar C. difficile ga rezistentlik bilan birga kuzatildi | CDI bemorini bitta bakteriya bilan davolashni |
Nimani o‘lchash va qaysi savolni berish kerak
LC–MS/MS CA, CDCA, ularning glitsin va taurin kon’yugatlari, DCA, LCA, UDCA, epimerlar va sulfatlarni farqlashi mumkin. Qon, yonbosh ichak tarkibi va 48 soatlik najas turli oqimlarni aks ettiradi. Ovqatdan keyingi vaqt, antibiotiklar, sekvestrantlar, tranzit, namuna olish usuli va analitik kalibrlash natijani o‘zgartiradi. Erkin va kon’yugatsiyalangan shakllar nisbati faqat bilvosita ko‘rsatkich, chunki erkin kislota so‘rilishi, keyinroq aylanishi yoki namunaga tushmasligi mumkin. DCA+LCA ning CA+CDCA ga nisbati ham BSH, bai, so‘rilish va jigar qayta aloqasini aralashtiradi; «>80% = kanserogen xavf» klinik tasdiqlangan chegara emas.
O‘t kislotali diareyaga shubha bo‘lganda tegishli klinik o‘lchovlar mavjud joyda SeHCAT saqlanishini, 48 soatlik najas o‘t kislotalarini, sintez surrogati sifatida och qoringa serum C4 ni va usuliga mos talqin qilinadigan FGF19 ni o‘z ichiga olishi mumkin. Hech bir marker bevosita BSH faolligiga teng emas. C4 sutka vaqti, jigar holati va dorilarga bog‘liq; shu sabab laboratoriya kontekstisiz 47 ng/ml kabi bitta raqamni barcha usul va populyatsiyaga tatbiq etib bo‘lmaydi. Jigar yoki kolorektal kasallik savoli bo‘lsa, uy sharoitidagi «degidroksillanish indeksi» emas, tegishli klinik yo‘riqnoma hal qiluvchi bo‘ladi.
Ushbu biokimyodan chiqadigan amaliy xulosa BSH ni imkon qadar kuchaytirish yoki bostirishga chaqiriq emas. Qaysi kislota, qaysi kompartment va konsentratsiyada o‘zgarganini, qanday o‘lchanganini va odamlarda qaysi natija ko‘rsatilganini aniq aytish kerak. BSH kon’yugatlardan erkin kislotalarga yo‘l ochadi; bai va HSDH boshqa molekulalarni hosil qiladi; xo‘jayin retseptorlari va tashuvchilari javobning yana bir qatlamini belgilaydi. Bu chegaralarni saqlash o‘t kislotalari profilini foydali tadqiqot vositasi qiladi, lekin mustaqil tashxis yoki universal qo‘shimchalar rejasiga aylantirmaydi.
Tez-tez beriladigan savollar
BSH dezoksixol va litoxol kislotalarini bevosita hosil qiladimi?
Yo‘q. BSH kon’yugatidan glitsin yoki taurin ajratadi. Erkin CA ni DCA ga va CDCA ni LCA ga aylantirish uchun alohida bakterial bai 7α-degidroksillanish yo‘li kerak.
BSH faolligi yuqori bo‘lsa, u doim zararlimi?
Yo‘q. Dekon’yugatsiya eruvchanlik, so‘rilish, retseptor signali va mikrob oziqlanishini turli yo‘nalishda o‘zgartirishi mumkin. Natija boshqa fermentlar va xo‘jayin fiziologiyasiga bog‘liq.
Najasdagi bsh genlari nimani ko‘rsatadi?
Ular mikrobning ehtimoliy qobiliyatini ko‘rsatadi, ammo faol oqsil, substrat tanlovi, mahalliy reaksiya tezligi yoki klinik natijani o‘lchamaydi.
Najas DCA si bilan saraton xavfini baholash mumkinmi?
Bitta DCA konsentratsiyasi tasdiqlangan shaxsiy onkologik chegara emas. To‘qima ekspozitsiyasi, kislota havzasi, ratsion, tranzit, yallig‘lanish va odatdagi klinik baholash muhim.
O‘t kislotali diareya nimadan kelib chiqadi?
Yo‘g‘on ichakka ortiqcha kislota yetishi yonbosh ichak shikasti yoki FGF19 qayta aloqasi yetishmay, sintez ortishidan bo‘lishi mumkin. BSH yagona yoki yetarli izoh emas.
BSH ingibitorlari semizlik yoki steatogepatitni hozir davolaydimi?
Yo‘q. Sichqondagi genetik va kimyoviy tajribalar o‘t havzasini o‘zgartirish mumkinligini ko‘rsatadi, ammo odamlarda samaradorlik va xavfsizlikni isbotlamaydi.
Manbalar
- Hofmann A. F. The continuing importance of bile acids in liver and intestinal disease. Arch Intern Med. 1999;159(22):2647-2658.
- Ridlon J. M., Kang D. J., Hylemon P. B. Bile salt biotransformations by human intestinal bacteria. J Lipid Res. 2006;47(2):241-259.
- Begley M., Gahan C. G., Hill C. The interaction between bacteria and bile. FEMS Microbiol Rev. 2005;29(4):625-651.
- Jones BV et al. Functional and comparative metagenomic analysis of bile salt hydrolase activity in the human gut microbiome. Proc Natl Acad Sci U S A. 2008;105(36):13580-13585.
- Dawson P. A., Lan T., Rao A. Bile acid transporters. J Lipid Res. 2009;50(12):2340-2357.
- Chiang J. Y. Bile acids: regulation of synthesis. J Lipid Res. 2009;50(10):1955-1966.
- Makishima M., Okamoto A. Y., Repa J. J., Tu H., Learned R. M., Luk A., Hull M. V., Lustig K. D., Mangelsdorf D. J., Shan B. Identification of a nuclear receptor for bile acids. Science. 1999;284(5418):1362-1365.
- Maruyama T., Miyamoto Y., Nakamura T., Tamai Y., Okada H., Sugiyama E., Nakamura T., Itadani H., Tanaka K. Identification of membrane-type receptor for bile acids (M-BAR). Biochem Biophys Res Commun. 2002;298(5):714-719.
- Kawamata Y., Fujii R., Hosoya M., Harada M., Yoshida H., Miwa M., Fukusumi S., Habata Y., Itoh T., Shintani Y., Hinuma S., Fujisawa Y. A G protein-coupled receptor responsive to bile acids. J Biol Chem. 2003;278(11):9435-9440.
- Inagaki T., Choi M., Moschetta A., Peng L., Cummins C. L., McDonald J. G., Luo G., Jones S. A., Goodwin B., Mangelsdorf D. J., Kliewer S. A. Fibroblast growth factor 15 functions as an enterohepatic signal to regulate bile acid homeostasis. Cell Metab. 2005;2(4):217-225.
- Ridlon J. M., Devendran S., Alves J. M., Doden H., Wolf P. G., Pereira G. V., Ly L., Wang S., Gaskins H. R. The 'in vivo lifestyle' of bile acid 7alpha-dehydroxylating gut bacteria. Gut Microbes. 2020;11(6):1604-1624.
- Rossocha M et al. Conjugated bile acid hydrolase is a tetrameric N-terminal thiol hydrolase with specific recognition of its cholyl but not of its tauryl product. Biochemistry. 2005;44(15):5739-5748.
- Devlin AS, Fischbach MA. A biosynthetic pathway for a prominent class of microbiota-derived bile acids. Nat Chem Biol. 2015;11(9):685-690.
- Buffie CG et al. Precision microbiome reconstitution restores bile acid mediated resistance to Clostridium difficile. Nature. 2015;517(7533):205-208.
- Sorg J. A., Sonenshein A. L. Bile salts and glycine as cogerminants for Clostridium difficile spores. J Bacteriol. 2008;190(7):2505-2512.
- Thomas C., Gioiello A., Noriega L., Strehle A., Oury J., Rizzo G., Macchiarulo A., Yamamoto H., Mataki C., Pruzanski M., Pellicciari R., Auwerx J., Schoonjans K. TGR5-mediated bile acid sensing controls glucose homeostasis. Cell Metab. 2009;10(3):167-177.
- Watanabe M., Houten S. M., Mataki C., Christoffolete M. A., Kim B. W., Sato H., Messaddeq N., Harney J. W., Ezaki O., Kodama T., Schoonjans K., Bianco A. C., Auwerx J. Bile acids induce energy expenditure by promoting intracellular thyroid hormone activation. Nature. 2006;439(7075):484-489.
- Guo C., Xie S., Chi Z., Zhang J., Liu Y., Zhang L., Zheng M., Zhang X., Xia J., Ke H., Lu L., Wang D. Bile acids control inflammation by detecting the presence of bacteria through the TGR5-NLRP3 inflammasome axis. Immunity. 2016;45(4):802-816.
- Makishima M., Lu T. T., Xie W., Whitfield G. K., Domoto H., Evans R. M., Haussler M. R., Mangelsdorf D. J. Vitamin D receptor as an intestinal bile acid sensor. Science. 2002;296(5571):1313-1316.
- Staudinger JL et al. The nuclear receptor PXR is a lithocholic acid sensor that protects against liver toxicity. Proc Natl Acad Sci U S A. 2001;98(6):3369-3374.
- Payne C. M., Weber C., Crowley-Skillicorn C., Dvorak K., Bernstein H., Bernstein C., Holubec H., Sampliner R., Martinez J. Deoxycholate induces mitochondrial oxidative stress and activates NF-kappaB through calcineurin in human colon cells. Carcinogenesis. 2007;28(1):215-222.
- Pai R., Tarnawski A. S., Tran T. Deoxycholic acid activates beta-catenin signaling pathway and promotes colon cancer cell growth and invasiveness. Mol Biol Cell. 2004;15(7):3527-3536.
- Camilleri M. Advances in understanding of bile acid diarrhea. Expert Rev Gastroenterol Hepatol. 2014;8(1):49-61.
- Walters J. R., Johnston I. M., Nolan J. D., Vassie C., Paveletz M. E., Ellis C. E. The response of patients with bile acid diarrhoea to the farnesoid X receptor agonist obeticholic acid. Aliment Pharmacol Ther. 2015;41(1):54-64.
- Rodrigues C. M., Fan G., Wong P. Y., Kren B. T., Steer C. J. Ursodeoxycholic acid may inhibit deoxycholic acid-induced apoptosis by modulating mitochondrial transmembrane potential and reactive oxygen species production. Mol Med. 1998;4(3):165-178.
- Ozcan U., Yilmaz E., Ozcan L., Furuhashi M., Vaillancourt E., Smith R. O., Görgün C. Z., Hotamisligil G. S. Chemical chaperones reduce ER stress and restore glucose homeostasis in a mouse model of type 2 diabetes. Science. 2006;313(5790):1137-1140.
- David L. A., Maurice C. F., Carmody R. N., Gootenberg D. B., Button J. E., Wolfe B. E., Ling A. V., Devlin A. S., Varma Y., Fischbach M. A., Biddinger S. B., Dutton R. J., Turnbaugh P. J. Diet rapidly and reproducibly alters the human gut microbiome. Nature. 2014;505(7484):559-563.
- Sayin S. I., Wahlström A., Felin J., Jäntti S., Marschall H. U., Bamberg K., Angelin B., Hyötyläinen T., Orešič M., Bäckhed F. Gut microbiota regulates bile acid metabolism by reducing the levels of tauro-beta-muricholic acid, a naturally occurring FXR antagonist. Cell Metab. 2013;17(2):225-235.
- Yao L et al. A selective gut bacterial bile salt hydrolase alters host metabolism. eLife. 2018;7:e37182.
- Adhikari AA et al. Development of a covalent inhibitor of gut bacterial bile salt hydrolases. Nat Chem Biol. 2020;16:318-326.
- Song X., Sun X., Oh S. F., Wu M., Zhang Y., Zheng W., Geva-Zatorsky N., Janoir C., Goursandy C., Xu G., Perez-Lopez A., Kasper D. L. Microbial bile acid metabolites modulate gut RORgamma(+) regulatory T cell homeostasis. Nature. 2020;577(7790):410-415.
- Hang S et al. Bile acid metabolites control T(H)17 and T(reg) cell differentiation. Nature. 2019;576(7785):143-148.
- Campbell C., McKenney P. T., Shen Y., Feinman R. B., Jiang Z. D., DuPont H. L., Pamer E. G., Littman D. R. Bacterial metabolism of bile acids promotes generation of peripheral regulatory T cells. Nature. 2020;581(7809):475-479.
- Mouzaki M., Wang A. Y., Bandsma R., Comelli E. M., Arendt B. M., Zhang L., Fung S., Fischer S. E., McGilvray I. D., Allard J. P. Bile acids and dysbiosis in non-alcoholic fatty liver disease. PLoS One. 2016;11(5):e0151829.
- Camilleri M et al. Effect of colesevelam on faecal bile acids and bowel functions in diarrhoea-predominant irritable bowel syndrome. Aliment Pharmacol Ther. 2015;41:438-448.