Комплемент жүйесі: C3a, C5a және қорғаныс пен зақымдану арасындағы шекара
Комплемент жолдары C3b, анафилатоксиндер мен C5b–9-ды қалай түзеді; эндотелий неге таңдамалы зақымданады және оң, теріс әрі кері қайтарылған клиникалық деректер нені көрсетеді.
Комплементті көбіне мембранадағы тесікпен аяқталатын әріптер мен жебелер тізбегі ретінде көрсетеді. Алайда бұл сызба оның жұмысының бір бөлігін ғана түсіндіреді. Каскад беттерді фагоцитозға белгілейді, иммундық кешендер мен жасуша қалдықтарын жоюға көмектеседі, қабыну жасушаларын бағыттайды және туа біткен тануды адаптивті иммунитетпен байланыстырады. Реакцияның күшеюі пайдалы болатын бет пен уақыт шегінен шыққанда зақым пайда болады. Сондықтан қандағы C3 концентрациясы бірдей болса да, бүйрек шумағында, тамыр қабырғасында немесе көз тінінде комплемент белсенділігі әртүрлі болуы мүмкін.
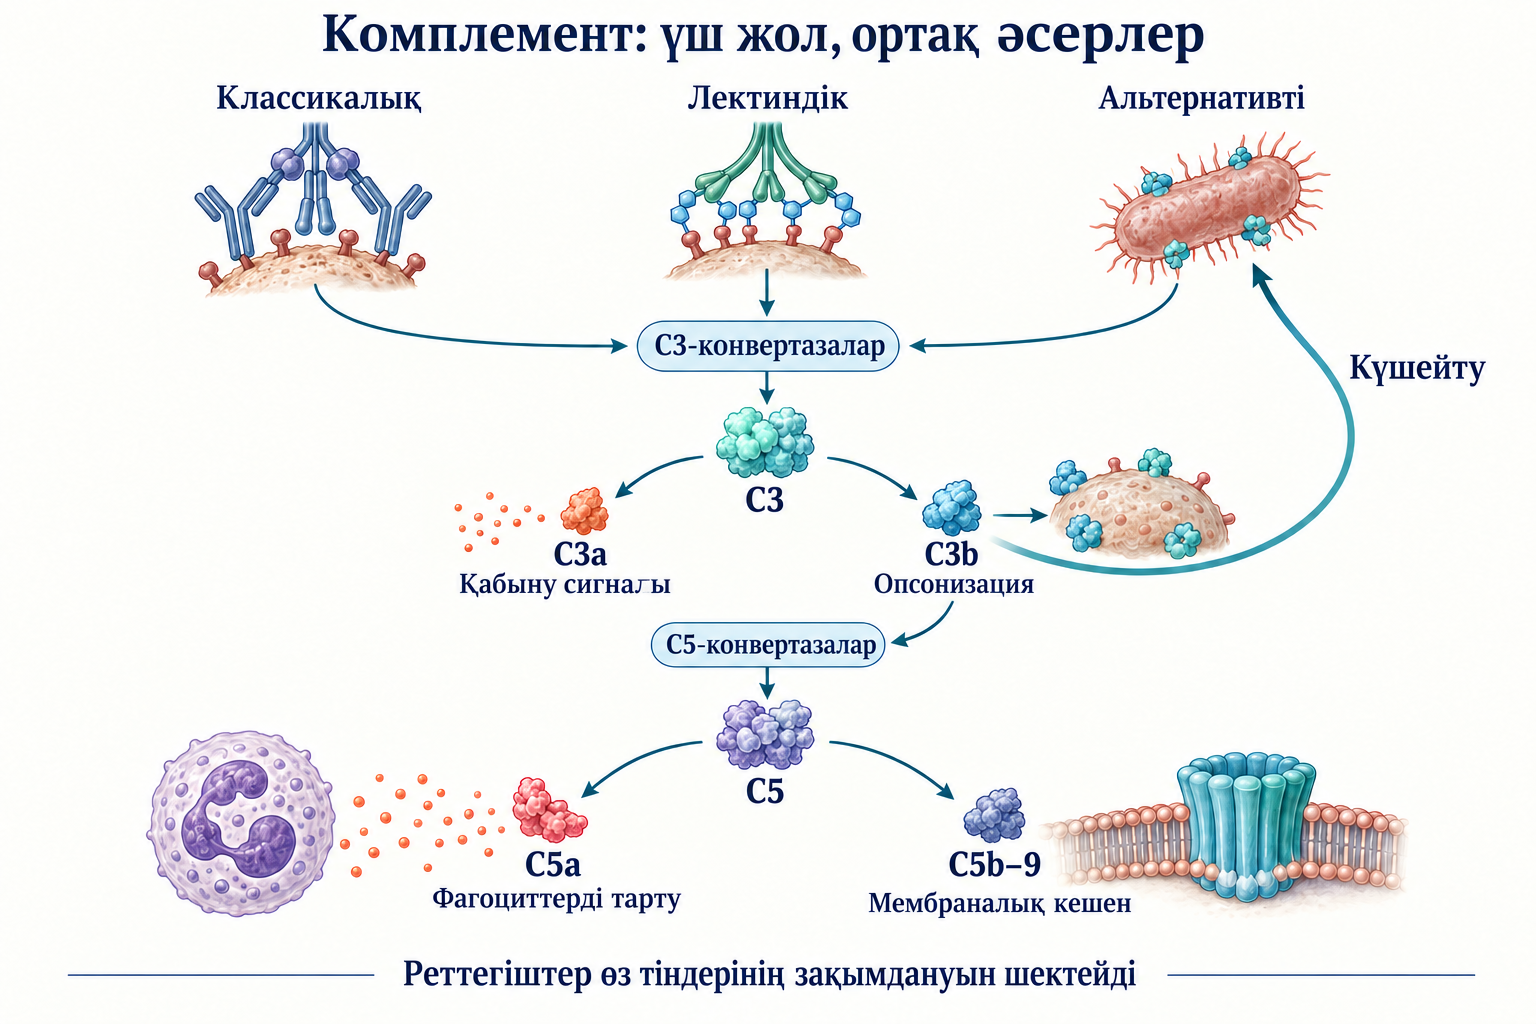
Айналымдағы компоненттердің көпшілігін бауыр синтездейді, бірақ эндотелий, бүйрек және иммундық жасушалар да жекелеген компоненттерді жергілікті өндіре алады. Плазмалық каскадты, жасуша бетіндегі реакцияны және жасушаішілік процестерді автоматты түрде бір механизмге біріктіруге болмайды. Клиникалық түсіндіру үшін үш нәтиже маңызды: C3 фрагменттерімен опсонизация, C3a/C5a анафилатоксиндерінің сигналдары және терминалдық C5b–9 кешенінің түзілуі. Әрқайсысының рецепторлары, реттегіштері және емдеуге әсері бөлек.
Каскадқа үш кіру жолы: тану жолдың атауынан маңызды
Классикалық жол танушы C1q мен C1r/C1s сериндік протеазаларынан тұратын C1 кешенінен басталады. Бетке байланысқан IgM немесе IgG молекулаларының кеңістіктік ұйымдасуы кешенді белсендіруге мүмкіндік береді; ерітіндідегі бос антидене мұндай бетке тең емес. C1q зақымданған жасушалардың кейбір құрылымдарымен және туа біткен тану молекулаларымен де әрекеттеседі, сондықтан «классикалық» тек антиденеге тәуелді дегенді білдірмейді. C1s C4 пен C2-ні ыдыратып, бетте C3-конвертаза C4b2a құрылады. Мұнда C2-нің ірі каталитикалық фрагментін C2a деп атайтын кең таралған тарихи номенклатура қолданылған; басқа бірізді жүйе оны C2b деп атайды. Атаудың өзгеруі басқа фермент бар деген сөз емес.
Лектиндік жол маннозаны байланыстыратын MBL лектині, фиколиндер және коллектиндер арқылы көмірсу мен ацетилденген топтардың қолайлы орналасуын таниды. Олармен байланысқан MASP — сериндік протеазалар, мырышқа тәуелді металлопротеазалар емес. Кальций кейбір танушы кешендердің ұйымдасуы мен байланыстарына қажет, бірақ ферменттің каталитикалық класын өзгертпейді. MASP-1 іске қосуға және MASP-2 белсенділенуіне қатысады; MASP-2 C4 пен C2-ні ыдыратады. Кешендердің жақындасуы мен MASP кинетикасы жөніндегі зерттеулер белсенділенудің плазмадағы лектиннің кездейсоқ болуына емес, лигандты беттегі кеңістіктік ұйымдасуға тәуелді екенін көрсетеді.
MASP-3 бұл жүйені альтернативті жолдағы D факторының жетілуімен байланыстырады. Тыныш күйдегі адам қанына жүргізілген тәжірибелерде белсенді MASP-3 про-D факторын жетілген протеазаға айналдырған. Бұл — ферментті дайындау деңгейіндегі жоларалық байланыс; әр альтернативті белсенділену үшін жаңа лектиндік іске қосу керек деген тұжырым емес. Тыныш қанға қатысты нәтижені ұйып жатқан үлгіге немесе ауыр жүйелік қабынуға ескертусіз көшіруге де болмайды.
Альтернативті жол C3-тегі фондық өзгерістермен сақталады және басталып қойған реакцияны күшейтетін ілмек ретінде ерекше маңызды. Ішкі тиоэфирдің гидролизі пептидтік қаңқа мен C3a доменін сақтай отырып C3(H2O) түзеді: бұл C3a мен C3b-ні протеолиз арқылы шығаратын реакция емес. C3(H2O) B факторын байланыстырады, D факторы байланысқан B-ні Ba және Bb-ге бөліп, сұйық фазадағы C3(H2O)Bb конвертазасын түзеді. Альтернативті конвертаза байланыстары Mg2+-ке тәуелді. Гидролиз жылдамдығының бастапқы биохимиялық өлшемдері орта мен басқа ақуыздарға байланысты өзгерген; олар «ағзадағы бүкіл C3-тің сағатына 1–2%-ы» деген әмбебап ереже бермейді.
C3b: химиялық белгі және күшейту платформасы
Нативті C3-тегі реактивті тиоэфир ақуыз құрылымымен қорғалған. C3-конвертаза ыдыратқаннан кейін C3a бөлініп, қалған C3b конформациясын өзгертеді. Janssen және әріптестерінің құрылымдық жұмыстары тиоэфирі бар доменнің елеулі жылжуын және B факторы мен реттегіштерге арналған байланысу орындарының ашылуын көрсетті. Қысқа өмір сүретін белсенді күй көрші беттің гидроксил немесе амин топтарымен коваленттік байланыс түзуге мүмкіндік береді. Сумен бәсекелес реакция бекіну қашықтығын шектейді; сұйық фазада гидролизденген C3b толыққанды жаңа коваленттік белгі емес.
Бетке бекіген C3b B факторын қосады. D факторы B-ні тиісті кешенде ыдыратады, ал Bb беттегі C3bBb C3-конвертазасының каталитикалық суббірлігі болып қалады. Мұнда C3b — платформа, протеаза емес. Пропердин конвертазаны тұрақтандырады және кей жағдайда беттерді тануға қатысады; оны міндетті әмбебап бастапқы сенсор деп сипаттауға болмайды. Жаңа C3b молекулалары қосымша платформалар түзеді, сондықтан классикалық не лектиндік басталу альтернативті жолмен айтарлықтай күшеюі мүмкін. Оның үлесі активаторға, үлгіге және өлшенетін нәтижеге тәуелді; бүкіл ағза үшін тұрақты пайыз белгіленбеген.
C3b тығыздығының артуы C5-конвертазалық белсенділігі бар кешендерді қалыптастырады. Олар көбіне C4b2a3b және C3bBbC3b деп жазылады, бірақ бұл формулалар беттегі фермент пен субстраттың кеңістіктік ұйымдасуын қысқартып көрсетеді. C5 ыдырауы еритін сигналдық C5a мен терминалдық кешенді құрастыруды бастайтын C5b береді. Сондықтан C5 пен C3 блокадасы түбегейлі өзгеше: біріншісі C3b түзілуі мен опсонизацияны сақтайды, екіншісі ертерек және кеңірек араласады.
C3b мен оның өнімдері тек күшейтуге қатыспайды. Тиісті кофакторлардың көмегімен I факторы C3b-ні iC3b-ге айналдырады; iC3b белсенді альтернативті конвертаза құрмайды, бірақ опсонизация қызметін сақтайды. CR1 C3b/C4b-ні байланыстырып, иммундық кешендерді өңдеуге қатысады; CR3 және CR4 iC3b-ні танып, фагоциттердің белгіленген объектілерді ұстауына көмектеседі. Кейінгі C3dg/C3d түзілуі CR2 арқылы адаптивті иммунитетпен байланысты сақтайды. Демек, конвертазаны протеолизбен өшіру белгінің барлық иммунологиялық салдарын бірден жоймайды.
Өз беттерін ағза қалай қорғайды
H факторы C3b мен ағзаның өз бетінің ерекшеліктерін, соның ішінде сиалилденген гликандар мен гликозаминогликандарды бірге таниды. Ол B факторымен бәсекелеседі, альтернативті конвертазаның ыдырауын жылдамдатады және I факторының кофакторы болады. H-тың C3b және сиалилденген қанттармен кешендерінің құрылымы танушы домендердің өзгеруі плазмада ақуыз бар болса да белгілі бір беттің қорғанысын бұза алатынын түсіндіреді. H мөлшері ғана емес, оның C3b пайда болған жерге орналасуы да маңызды.
I факторы — субстрат пен кофактордың тиісті кешені болмаса белсенділігі шектеулі сериндік протеаза. Жасушадағы CD46 C3b/C4b ыдырауына кофакторлық қолдау береді; CD55 конвертазалардың ажырауын жылдамдатады; CD59 терминалдық құрастыруды және C9-дың мембраналық кешенге қосылуын шектейді. CD55 пен CD59 GPI-якорь арқылы бекіген, ал CD46 — трансмембраналық ақуыз. Серпиндерге жататын C1-ингибитор белсенді C1r/C1s және кейбір MASP-ке ертерек әсер етеді; C4 байланыстыратын ақуыз C4b бар кешендерді реттейді. Бұл механизмдер бірін-бірі алмастырмайды және бір маркердің артуы қалған деңгейлердің сақталуына кепіл емес.
Конвертазаның ажырауы мен оның платформасының протеолизі — екі бөлек реакция. CD55 каталитикалық суббірліктің ажырауын жылдамдата алады, ал I факторы кофактормен бірге C3b-ні қайтымсыз өзгертеді. Терминалдық реттегіштер C5b пайда болғаннан кейін әрекет етеді. Сондықтан өз тіндерінің зақымдануы бетті тану ақауынан, кофактор жеткіліксіздігінен, конвертазаның тұрақтылығынан немесе мембраналық қорғаныстың жоғалуынан туындауы мүмкін, тіпті соңғы зертханалық профильдер ішінара ұқсас болса да.
C3a және C5a: шағын пептидтің әсері шағын емес
Адамның C3a және C5a пептидтерінде тиісінше 77 және 74 аминқышқыл қалдығы бар. Олардың ықшам құрылымын дисульфидтік байланыстар тұрақтандырады, ал C-ұшындағы бөлік рецептор белсенділенуі үшін маңызды. Дегенмен олар өзара алмастырылатын хемоаттрактанттар емес. C5a нейтрофилдер мен моноциттерді тарту және белсендіру үшін ерекше маңызды; C3a жауабы жасуша түріне, күйіне және рецепторлар жиынтығына көбірек тәуелді. Бір жасушалық жүйеден алынған EC50 немесе аффинділік мәні адам тіндерінің әмбебап шегі бола алмайды.
Плазмалық N карбоксипептидазасы мен мембраналық M карбоксипептидазасы C-ұшындағы аргининді алып, desArg туындыларын түзеді. Олар — құрамында мырыш бар карбоксипептидазалар, конвертазалардың сериндік протеазаларынан бөлек ферменттер. C3a-desArg C3aR арқылы канондық белсенділігін едәуір жоғалтады; C5a-desArg контекстке тәуелді қалдық белсенділік пен рецепторлық байланыстарды сақтайды. Процессингті «екі пептид те толық өшеді» деген формулаға сыйғызуға болмайды. C3a-desArg-тің даулы метаболизмдік әсерлерін C5aR2 арқылы өтетін даусыз әмбебап ось деп сипаттау да дұрыс емес.
C3aR және C5aR1 — жеті трансмембраналық сегменті бар рецепторлар. C5aR1 үшін Gi-мен байланысу, сигналдық Gβγ суббірліктерінің босап шығуы, PI3Kγ және PLCβ белсенділенуі маңызды. PI3K мембранада PIP3 түзеді және қозғалатын фагоциттің алдыңғы шетін ұйымдастыруға көмектеседі; PLCβ PIP2-ні IP3 және DAG-қа ыдыратады. IP3 эндоплазмалық ретикулумнан Ca2+ шығуын күшейтеді, DAG PKC белсенділенуіне қатысады, ал Rac/Cdc42 осы сигналдарды актиннің қайта құрылуымен байланыстырады. Бұл — реттелетін қатарлас процестер желісі, жалғыз сызықтық «кальций — қозғалыс» тізбегі емес.
Бұрын C5L2 деп аталған C5aR2 C5aR1-ден өзгеше: ол G-ақуыздармен әдеттегі канондық байланыс көрсетпейді, бірақ β-аррестиндерді тартып, сигналдық жауаптарды өзгерте алады. Бастапқы зерттеулер «пассивті тұзақ» атауының жеткіліксіз екенін дәлелдейді. Сонымен қатар әсер бағыты жасушаға және қабыну контекстіне тәуелді; C5aR2-ні үнемі қабынуға қарсы немесе үнемі зақымды күшейтуші деп санауға болмайды. Рецептордың болуы, лиганд байланысы және оны блоктаудың клиникалық әсері — дәлелдің үш бөлек деңгейі.
Фагоцит, мес жасушасы және эндотелий әртүрлі жауап береді
Хемотаксис кеңістіктік градиент пен оны ажырата алатын жасушаны қажет етеді. C5a-ның жергілікті түзілуі фагоцитті ошаққа бағыттайды, ал ұзақ жүйелік стимуляция десенситизациямен, рецепторлардың интернализациясымен және бағытталған қозғалыстың бұзылуымен қатар жүруі мүмкін. Сепсистегі нейтрофил дисфункциясы көпфакторлы: рецепторлық сигналдар, метаболизм және басқа медиаторлар өзгереді. Беткі C5aR1-дің жоғалуы бүкіл иммундық салдануды түсіндірмейді, ал C5a концентрациясы міндетті түрде болатын нәтижені болжамайды.
Нейтрофилдің белсенділенуі және прайминг дегрануляция мен респираторлық жарылысты жеңілдетуі мүмкін. NOX2 электрондарды NADPH-тан FAD және гем орталықтары арқылы оттекке тасымалдайды: O2 супероксидке, кейін H2O2-ге айналады. Миелопероксидаза H2O2, хлорид пен протонды пайдаланып гипохлорлы қышқыл түзеді: H2O2 + Cl− + H+ → HOCl + H2O. Бұл реакциялар тиісті микробқа қарсы компартментте пайдалы, бірақ протеазалар мен тотықтырғыштардың жасушадан тыс шығуы эндотелий мен матриксті зақымдауы мүмкін. Нейтрофилдердің жасушадан тыс торларының түзілуі стимул мен жағдайға тәуелді; C5a әмбебап NETosis бағдарламасын автоматты түрде іске қоспайды.
Анафилатоксиндер сезімтал мес жасушалары мен базофил популяцияларының дегрануляциясына қатыса алады. Қордағы гистаминнің босауын лейкотриендер мен простагландиндер сияқты липидтік медиаторлардың жаңадан синтезделуінен ажырату керек. C3aR/C5aR1 экспрессиясы мен жауап сипаты популяциялар арасында өзгеше; «анафилатоксин» атауы барлық анафилаксияны комплементке тәуелді етпейді. Рецепторлық сигнал мен клиникалық синдром байланысы мес жасушалары белсенділенуінің медиаторлық каскады туралы материалда кеңірек талданған.
Тамыр өткізгіштігінің артуына басқа жасушалардың медиаторлары және эндотелийге тікелей әсерлер қатыса алады. Shivshankar және әріптестері адам кіндік венасының эндотелиальді жасушаларында C3a/C5a рецепторларының реттелетін экспрессиясын, миграция өзгерісін және лимфоидты жасушалармен әрекеттесуге әсерін анықтады. Бұл барлық тамыр аймағы бірдей жауап береді деген дәлел емес. Sartain және әріптестерінің басқа бастапқы жұмысында ми микротамырларының эндотелийі шумақтық жасушаларға қарағанда альтернативті белсенділенуді аз және реттеуші қасиеттерді күштірек көрсетті. Айырмашылық тінге тән зақымды түсіндіруге көмектеседі, бірақ жасушалық модель жеке адамның ауру қаупін өлшемейді.
Қабынған эндотелий лейкоцит адгезиясын, тосқауыл байланыстарын және прокоагулянттық әрі антикоагулянттық сигналдардың балансын өзгертеді. Комплемент цитокиндермен, тромбоциттермен және ұюмен әрекеттеседі; тамырішілік гемолизде босайтын гем белсенділенуді қосымша қолдай алады. Нәтиже — бір бағытты тізбек емес, өзара күшейту ілмегі. Инфламмасомамен байланыстар да модельге тәуелді; NLRP3 және IL-1β түзілуі қабыну реттелуінің басқа деңгейін сипаттайды, оны C3 ыдырауының өзімен теңестіруге болмайды.
C5b–9: пора, сублитикалық сигнал және еритін кешен
C5 ыдырағаннан кейін тұрақсыз C5b C6-ны, одан соң C7, C8 және C9 молекулаларын байланыстырады. Кезеңдік құрастыру MACPF доменді ақуыздарды мембранаға енгізіп, пора түзуге мүмкіндік береді. Криоэлектрондық микроскопия күрделі асимметриялық архитектураны көрсетеді; бірдей цилиндрлерден тұратын оқу шеңбері нақты атомдық модель емес, шартты сурет. C9 саны мен кешен геометриясын барлық биологиялық мембранаға бір тұрақты мәнмен белгілеуге болмайды.
Беттің осалдығы C5b–9-дың болуынан маңыздырақ. Терминалдық комплемент кейбір грамтеріс бактериялардан қорғауда ерекше рөл атқарады; қалың қабырға және басқа бет ерекшеліктері мембрананы тиімді зақымдауға кедергі болуы мүмкін. Ядросы бар жасушалар зақымдалған мембрана бөліктерін алып тастай немесе интернализациялап, сублитикалық әсерге төзе алады. Мұндай әсер ион ағынын және сигналдық жолдарды өзгертіп, дереу осмостық лизиссіз қабынуды қолдай алады. Сондықтан реттеуші қорғанысын жоғалтқан эритроцит пен жөндеу механизмдері бар эндотелий жасушасы бірдей жауап бермейді.
Еритін sC5b–9 мембранаға енуді шектейтін ақуыздармен, соның ішінде витронектин және кластеринмен байланысты. Оның артуы тиісті үлгіде терминалдық белсенділену болғанын көрсетеді, бірақ бүйрек не тамыр қабырғасындағы пораларды тікелей санамайды. Мембраналық және еритін терминалдық кешендер синоним емес. Сол сияқты, жаппай лизистің болмауы клиникалық маңызды комплементке тәуелді зақымды жоққа шығармайды.
Әртүрлі ауруға әртүрлі себептік модель қажет
Пароксизмальді түнгі гемоглобинурияда, ПТГ, қан түзуші жасушалар клонындағы PIGA соматикалық ақауы GPI-якорь синтезін бұзады. CD55/CD59 жоғалуы жасушаларды комплементке ерекше осал етеді. Бұл — жүре пайда болған клондық ауру, қарапайым тағамдық тапшылық немесе тек «жоғары C3» емес. C5 блокадасы тамырішілік гемолизді азайтады, бірақ фагоциттердің C3-ке тәуелді эритроцит ұстауы сақталып, тамырдан тыс анемияны қолдауы мүмкін. Гемоглобинге сүйек кемігінің күйі мен басқа себептер де әсер етеді, сондықтан бір нысана толық қалыпқа келуге кепіл бермейді.
Комплементке байланысты тромбоздық микроангиопатияда, дәстүрлі түрде атиптік гемолиздік-уремиялық синдром, аГУС, аясында қарастырылатын жағдайда эндотелий зақымы каскад бақылауының бұзылуымен байланысты. CFH, CFI, CD46, C3 немесе CFB варианттары және H факторына қарсы аутоантиденелер болуы мүмкін, бірақ генетикалық фактор қосымша триггерлерсіз әрдайым жеткілікті емес. ADAMTS13 ауыр тапшылығы бар тромбоздық тромбоцитопениялық пурпура, инфекцияға байланысты ГУС және екіншілік микроангиопатиялар дифференциалды талдауды қажет етеді. Әр микроангиопатия бірдей комплементтік емнің қажеттілігін дәлелдемейді; қалыпты C3 жергілікті реттелу бұзылуын жоққа шығармайды.
C3-гломерулопатия морфология және C3-тің басым шөгуімен анықталады, бір төмен концентрациямен емес. Нефриттік факторлар конвертазаны тұрақтандыра алады, ал реттелу генетикалық немесе жүре пайда болған түрде бұзылуы мүмкін; белсенділік зерттеулері функционалдық механизмді антидененің жай болуынан ажырату қажеттігін көрсетеді. Жасқа байланысты макулалық дегенерацияда CFH варианттары қауіппен байланысты, бірақ генотип жеке адамға дайын болжам емес. Ишемия–реперфузияда зақымдалған беттер тану мен күшейтуді белсендіре алады, алайда биологиялық тұрғыдан қисынды нысана дәрілік араласудың табысына кепіл бермейді.
Клиникалық сынақтар шын мәнінде нені көрсетті
TRIUMPH ПТГ бар 87 пациент қатысқан қос соқыр, рандомизацияланған, плацебо-бақыланатын сынақ болды. Экулизумаб көктамыр ішіне төрт апта бойы аптасына 600 мг, одан кейін бір аптадан соң 900 мг, әрі қарай 26-аптаға дейін әр екі аптада 900 мг енгізілді. Бастапқы нәтижелер — гемоглобиннің тұрақтануы және құйылған эритроцит бірліктерінің саны. Трансфузиясыз тұрақтануға белсенді топтағы 43 адамның 21-і,49%, жетті; плацебода 44 адамның 0-і. Құйылған бірліктер медианасы 0 және 10 болды. ЛДГ-ның уақытқа қатысты қисық астындағы медианалық ауданы 85,8%-ға төмен болды. Бұл — тамырішілік гемолиз маркерінің нәтижесі, «өлімнің 85,8%-ға азаюы» емес; сынаққа тромбоздың алдын алудың нақты пайызын телуге болмайды.
PEGASUS экулизумабта гемоглобині 10,5 г/дл-ден төмен сақталған ПТГ бар 80 ересекті қамтыған ашық, рандомизацияланған III фазалық сынақ болды. Төрт апталық бірге емдеу кезеңінен кейін 41 қатысушы тері астына аптасына екі рет 1080 мг пегцетакопланға ауысты, ал 39 бұрынғы режимдегі көктамырішілік экулизумабты жалғастырды. Бастапқы нәтиже —16-аптадағы гемоглобин өзгерісі. Топтар арасындағы түзетілген айырма пегцетакоплан пайдасына 3,84 г/дл болды; бұл әр пациенттің орташа өсімі емес. Трансфузиядан 85% және 15% құтылды. Бірақ ЛДГ өзгерісі бойынша кем емес тиімділік дәлелденбеді; ашық дизайн, қалдық анемиясы бар іріктелген популяция және қысқа салыстыру кезеңі жалпылауды шектейді. Инъекция орнындағы реакциялар мен ем аясындағы қайта гемолиз де пайда–қауіп бағасының бөлігі болып қалады.
APEX-AMI-дің теріс нәтижесі «кез келген зақымнан кейін комплементті басу» идеясы үшін ерекше маңызды. Қос соқыр, плацебо-бақыланатын сынақта ST жоғарылаған инфарктпен бастапқы коронарлық араласу жасалған 5745 пациент пекселизумаб не плацебо алды. Анти-C5 препараты араласу алдында 2 мг/кг болюспен, кейін 24 сағат бойы сағатына 0,05 мг/кг инфузиямен енгізілді. Бастапқы 30 күндік өлім 4,06% және 3,92% болды; қауіптер қатынасы 1,04,95% сенімділік аралығы 0,80–1,35, p=0,78. Өлім бойынша артықшылық анықталмады. Бұл комплементтің ишемиялық зақымға қатысуын жоққа шығармайды, бірақ осы популяция мен режимде механизмнен тиімді емге автоматты өтуді теріске шығарады.
Авакопан C5 ыдырауын емес, C5aR1-ді блоктайды; бұл C5b–9 түзілуін сақтай отырып анафилатоксин сигналын өзгертуге мүмкіндік беруі ықтимал. Дегенмен клиникалық дәлелді нысананың тартымдылығынан бөлек бағалау керек. ADVOCATE АНЦА-ға байланысты васкулиті бар 331 пациентті ауыз арқылы күніне екі рет 30 мг авакопанға не преднизон дозасын азайтуға рандомизациялады; барлығы ритуксимаб немесе циклофосфамидтен кейін стандартты ем де алды. Бастапқы нәтижелер 26-аптадағы ремиссия мен 52-аптадағы тұрақты ремиссия болды.2026 жылғы 29 маусымда NEJM мақаланы кері қайтарды: тоғыз пациенттің бастапқы нәтижесін база жабылып, топтар ашылғаннан кейін қайта бағалаған, бірақ мақалада хабарламаған. Бұрын жарияланған пайыздарды тиімділіктің сенімді дәлелі ретінде көрсетуге болмайды.
2026 жылғы 27 сәуірде FDA-ның CDER орталығы Tavneos рұқсатын кері қайтаруды ұсынды: мақұлданған қолдану үшін тиімділік тиісті түрде дәлелденбеген және өтінімде елеулі жалған мәліметтер болған. FDA сондай-ақ ауыр дәрілік бауыр зақымын, соның ішінде өт өзектері жоғалу синдромы мен өлім жағдайларын хабарлады. Рұқсатты қайтару ұсынысы мен соңғы реттеуші шешім — бөлек оқиғалар; бұл хабарлама барлық елдегі процедура аяқталғанын өздігінен дәлелдемейді. Онда препарат глюкокортикоид қолдануын жоймайтыны да нақты айтылған. Сондықтан «стероидсыз ремиссия» деген әмбебап уәде мұнда ғылыми және клиникалық тұрғыдан дұрыс емес.
C3, C5, C5aR1, B немесе D факторы блокадасын таңдау сақталатын қорғаныс қызметтерін өзгертеді. Менингококк вакцинациясынан кейінгі сарысулық модельдер салдардың нысанаға, антидене жауабына және зерттелген объектіге тәуелді екенін көрсетеді; олар тәжірибеде инфекциялық қауіпсіздікке кепіл емес. Адамдағы D факторы тапшылығы да ауыр инфекциялармен байланысты, сондықтан классикалық жолдың бір бөлігінің сақталуы қауіп жоқ дегенді білдірмейді. Инфекцияның алдын алу мен бақылауды ингибитордың жалпы «селективтілігі» емес, нақты препарат пен қазіргі клиникалық талаптар анықтайды.
Мөлшер, функция және белсенділену — үш бөлек өлшем
C3 пен C4 компоненттердің концентрациясын көрсетеді, бүкіл функционалдық жүйені емес. Төмен мән тұтынылу, синтез ерекшелігі немесе тапшылықты көрсетуі мүмкін, ал қалыпты мән жергілікті белсенділенумен қатар болады. CH50 классикалық және ортақ терминалдық каскадтың функционалдық сақталуын бағалайды; AH50/AP50 альтернативті және ортақ терминалдық каскадты бағалайды. Тек CH50 төмен болса ерте классикалық компоненттер, тек AH50 төмен болса альтернативті компоненттер қарастырылады; екеуі де төмен болса ортақ компоненттер, тұтынылу не үлгі сапасы назарға алынады. Бұл — әрі қарай зерттеуге бағыт, дербес диагноз емес.
C3 фрагменттері мен sC5b–9 сияқты белсенділену өнімдері басқа сұраққа жауап береді: реакция осы компартментте өлшенетін із қалдырды ма. Тіндегі шөгінді, айналымдағы өнім және конвертаза белсенділігі бір-біріне сәйкес келмеуі мүмкін. Сондықтан C3-гломерулопатия мен микроангиопатия диагнозы клиникалық, морфологиялық, гематологиялық және функционалдық деректерге сүйенеді. Генетикалық вариант жіктеліп, фенотиппен салыстырылуы керек; мәні белгісіз вариант өмір бойы ингибитор қолданудың автоматты көрсеткіші емес.
Талдауға дейінгі өңдеу ерекше маңызды, өйткені комплемент қан алғаннан кейін де белсенділенуі мүмкін. Белсенділену өнімдерін өлшеуге Ca2+/Mg2+-ті хелаттап, каскадтың жалғасуын азайту үшін EDTA-плазма жиі қолданылады; функционалдық тесттің мақсаты керісінше — реакция қабілетін сақтау, сондықтан әдетте тиісті сарысу қажет. Mollnes жұмыстары және кейінгі тұрақтылық зерттеулері температура, кідіріс және антикоагулянттың әсерін көрсетеді. «Барлық комплемент талдауы тек EDTA-мен» деген әмбебап ереже қате. Өңдеу мен сақтау зертхананың валидтелген әдісіне сәйкес болуы керек; дұрыс дайындалмаған үлгідегі жоғары нәтиже диагнозға айналмауы тиіс.
Полифенолдар мен омега-3: биохимиялық гипотезаның шегі
Розмарин қышқылы ерте мақала атауы мен анықталған механизм айырмасын көрсетеді.1988 жылғы жұмыс гемолиздің азаюын C3-конвертаза тежелуімен байланыстырды. Sahu, Rawal және Pangburn-ның 1999 жылғы тазартылған компоненттермен нақты зерттеуінде C3b-нің коваленттік бекінуінің жартылай максималды тежелуі 34 мкМ-де байқалды. Сарысулық гемолиз тестіндегі тиісті мәндер классикалық жол үшін 180 мкМ, альтернативті жол үшін 160 мкМ болды. C3-конвертаза ферментінің елеулі тежелуі тіпті 10 000 мкМ-де табылмады. Сондықтан соңғы гемолиздің төмендеуі каталитикалық орталықтың тікелей блокталуын дәлелдемейді: C3b бекінуіне әсер ету ұқсас нәтиже бере алады.
Бұл жағдайлар адамға арналған ауыз арқылы қабылдау дозасын белгілемейді. Клиникалық ұсыныс үшін бастапқы зат пен метаболиттердің бос экспозициясы, қажет компартментке таралуы, нысанаға жетуі және маңызды нәтиженің жақсаруы туралы дерек керек. Ұсынылған биохимиялық жұмыстар мұндай тізбек бермейді. Сондықтан олардан «B факторын 15 мкМ-де селективті блоктау» немесе аГУС пен ПТГ-ның алдын алуға арналған дайын розмарин қышқылы протоколы шықпайды.
Куркумин, кверцетин, лютеолин, омега-3 және қабынудың шешілуіне қатысатын арнайы медиаторлардың цитокиндерге, липид алмасуына және мембраналарға ықтимал әсері CD55/CD59-ды клиникалық дәлелденген қалпына келтіру не комплементті селективті бақылау емес. Қабыну маркерінің төмендеуі каскадтың қай деңгейі өзгергенін және инфекцияға қарсы функция сақталғанын көрсетпейді. Рецепторлық гипотезаны немесе тәжірибелік концентрацияны әмбебап қоспа режиміне айналдыруға, тромбоздың алдын алуды уәде етуге немесе комплементке байланысты ауру емін алмастыруға жеткілікті негіз жоқ. Тамақтану мен жалпы тамырлық қауіп профилактикасы маңызды, бірақ басқа дәлелдік міндетті шешеді.
Практикалық шекара: қорғанысты сақтау, зақымды шектеу
Комплементті «азырақ болғаны жақсы» қағидасымен бағалауға болмайды. Функция жоғалса микробтар мен иммундық кешендерді жою нашарлайды; бақылаусыз реакция өз тіндерін зақымдайды. Дұрыс сұрақ белсенділену орнын, реттеуші ақауды, нақты эффекторлық нәтижені және шынымен өзгертуге болатын клиникалық нәтижені қамтиды. ПТГ, эндотелийлік микроангиопатия және инфаркт үшін жауаптар әртүрлі; оң және теріс сынақтар осыны көрсетеді.
Ғылыми негізделген реттілік ауру фенотипін анықтайды, компонент мөлшерін функция мен белсенділенуден ажыратады, ықтимал механизмді белгілейді және тиісті популяцияға пайдасы дәлелденген нысананы таңдайды. Кейін сақталған қорғаныс функциялары, инфекциялық қауіптер және емнің басқа шектеулері бағаланады. Төмен C3 те, жоғары sC5b–9 да, тартымды молекулалық сызба да осы реттілікті алмастырмайды. Механизм мен дәлелденген нәтижені ажырату комплементті иммунитетті әмбебап басуға себеп емес, түсінікті клиникалық құрал етеді.
Жиі қойылатын сұрақтар
Комплементтің үш жолын не біріктіреді?
Олар C3-конвертаза түзілуі мен кейінгі эффекторлық нәтижелерге тоғысады. Альтернативті жол классикалық не лектиндік басталған реакцияны да күшейте алады.
C3a және C5a бірдей әсер ете ме?
Жоқ. C5a нейтрофил мен моноцитті тартуда ерекше маңызды; C3a жасуша мен рецепторлық контекстке көбірек тәуелді. Олардың desArg туындыларын да бірдей толық белсенді емес деп санауға болмайды.
Қалыпты C3 комплементтік зақымды жоққа шығара ма?
Жоқ. Компонент концентрациясы, каскад функциясы және жергілікті белсенділену бөлек сұрақтарға жауап береді. Диагнозға клиникалық және қосымша зертханалық дерек қажет.
C3 пен C5 ингибиторлары неге өзгеше?
C5 блокадасы C5a мен терминалдық кешенді шектеп, C3b түзілуін сақтайды. C3 блокадасы ертерек әсер етіп, опсонизацияны да өзгертеді; пайда мен сақталатын қорғаныс қызметтері сондықтан бөлек.
Комплементті басудың әмбебап пайдасы дәлелденген бе?
Жоқ. TRIUMPH пен PEGASUS-тың оң нәтижелері ПТГ бар нақты популяцияларға қатысты. APEX-AMI-де анти-C5 препараты зерттелген режимде инфаркттен кейін өлімді азайтпады.
ADVOCATE тиімділіктің сенімді дәлелі бола ала ма?
NEJM 2026 жылы бастапқы нәтижелерді қайта бағалау мәселесіне байланысты мақаланы қайтарды. Бұрынғы пайыздар сенімді растау емес; FDA елеулі реттеуші және бауыр қауіптерін де хабарлады.
Комплементтің барлық талдауы EDTA-плазманы қажет ете ме?
Жоқ. Белсенділену өнімдеріне арналған талдауда қан алғаннан кейінгі реакцияны азайтады; функционалдық тест каскад қабілетін сақтауды қажет етеді. Үлгі мен өңдеу зертхана әдісіне тәуелді.
Розмарин қышқылы немесе омега-3 емді алмастыра ма?
Ұсынылған деректер мұны негіздемейді. Биохимиялық концентрация не қабыну маркері клиникалық экспозицияны, нысанаға жетуді және нәтиженің жақсаруын дәлелдемейді. Әмбебап қоспа протоколы бұдан шықпайды.
Дереккөздер
- Formation of the initial C3 convertase of the alternative complement pathway. Acquisition of C3b-like activities by spontaneous hydrolysis of the putative thioester in native C3.
- Structures of complement component C3 provide insights into the function and evolution of immunity.
- Structure of C3b reveals conformational changes that underlie complement activity.
- Structural basis of complement membrane attack complex formation.
- MASP-3 is the exclusive pro-factor D activator in resting blood: the lectin and the alternative complement pathways are fundamentally linked.
- Quantitative characterization of the activation steps of mannan-binding lectin (MBL)-associated serine proteases (MASPs) points to the central role of MASP-1 in the initiation of the complement lectin pathway.
- Complement activation by ligand-driven juxtaposition of discrete pattern recognition complexes.
- In response to complement anaphylatoxin peptides C3a and C5a, human vascular endothelial cells migrate and mediate the activation of B-cells and polarization of T-cells.
- Intravascular hemolysis activates complement via cell-free heme and heme-loaded microvesicles.
- Brain microvascular endothelial cells exhibit lower activation of the alternative complement pathway than glomerular microvascular endothelial cells.
- Intrinsic bias at non-canonical, β-arrestin-coupled seven transmembrane receptors.
- Inhibition of complement by covalent attachment of rosmarinic acid to activated C3b.
- Rosmarinic acid: a new inhibitor of complement C3-convertase with anti-inflammatory activity.
- Pexelizumab for acute ST-elevation myocardial infarction in patients undergoing primary percutaneous coronary intervention: a randomized controlled trial.
- Pegcetacoplan versus Eculizumab in Paroxysmal Nocturnal Hemoglobinuria.
- The complement inhibitor eculizumab in paroxysmal nocturnal hemoglobinuria.
- Avacopan for the Treatment of ANCA-Associated Vasculitis. [RETRACTED]
- In vaccinated individuals serum bactericidal activity against B meningococci is abrogated by C5 inhibition but not by inhibition of the alternative complement pathway.
- Testing the Activity of Complement Convertases in Serum/Plasma for Diagnosis of C4NeF-Mediated C3 Glomerulonephritis.
- Deficient alternative complement pathway activation due to factor D deficiency by 2 novel mutations in the complement factor D gene in a family with meningococcal infections.
- Inhibition of the different complement pathways has varying impacts on the serum bactericidal activity and opsonophagocytosis against Haemophilus influenzae type b.
- Structural basis for sialic acid-mediated self-recognition by complement factor H.
- Structural basis for engagement by complement factor H of C3b on a self surface.
- Structural basis for complement factor I control and its disease-associated sequence polymorphisms.
- Effect of time, temperature and anticoagulants on in vitro complement activation: consequences for collection and preservation of samples to be examined for complement activation.
- Preanalytical classical and alternative complement pathway activity loss.
- Human C3a and C3a desArg anaphylatoxins have conserved structures, in contrast to C5a and C5a desArg.
- Partial ligand-receptor engagement yields functional bias at the human complement receptor, C5aR1.
- Retraction: Jayne DRW et al. Avacopan for the Treatment of ANCA-Associated Vasculitis. NEJM, June29 2026
- CDER proposes to withdraw approval of TAVNEOS. FDA, April27 2026
- Pegcetacoplan versus eculizumab in patients with PNH (PEGASUS): 48-week follow-up of a randomised, open-label, phase3 controlled trial
- Structure of the core human NADPH oxidase NOX2. Nature Communications,2022
- Myeloperoxidase-halide-hydrogen peroxide antibacterial system. Klebanoff,1968