Komplement tizimi: C3a, C5a va himoya bilan zararlanish o‘rtasidagi chegara
Komplement yo‘llari C3b, anafilatoksinlar va C5b–9 ni qanday hosil qiladi; endoteliy nega tanlab zararlanadi va ijobiy, salbiy hamda qaytarilgan klinik dalillar nimani ko‘rsatadi.
Komplement ko‘pincha membranadagi teshik bilan tugaydigan harflar va strelkalar ketma-ketligi sifatida tasvirlanadi. Ammo bu sxema uning ishining faqat bir qismini tushuntiradi. Kaskad sirtlarni fagotsitoz uchun belgilaydi, immun komplekslar va hujayra qoldiqlarini chiqarishga yordam beradi, yallig‘lanish hujayralarini yo‘naltiradi hamda tug‘ma tanishni adaptiv immunitet bilan bog‘laydi. Reaksiyaning kuchayishi foydali bo‘lgan sirt va vaqt chegarasidan chiqqanda zarar yuzaga keladi. Shu sabab qondagi C3 konsentratsiyasi bir xil bo‘lsa ham, buyrak koptokchasi, tomir devori yoki ko‘z to‘qimasidagi komplement faolligi mutlaqo boshqacha bo‘lishi mumkin.
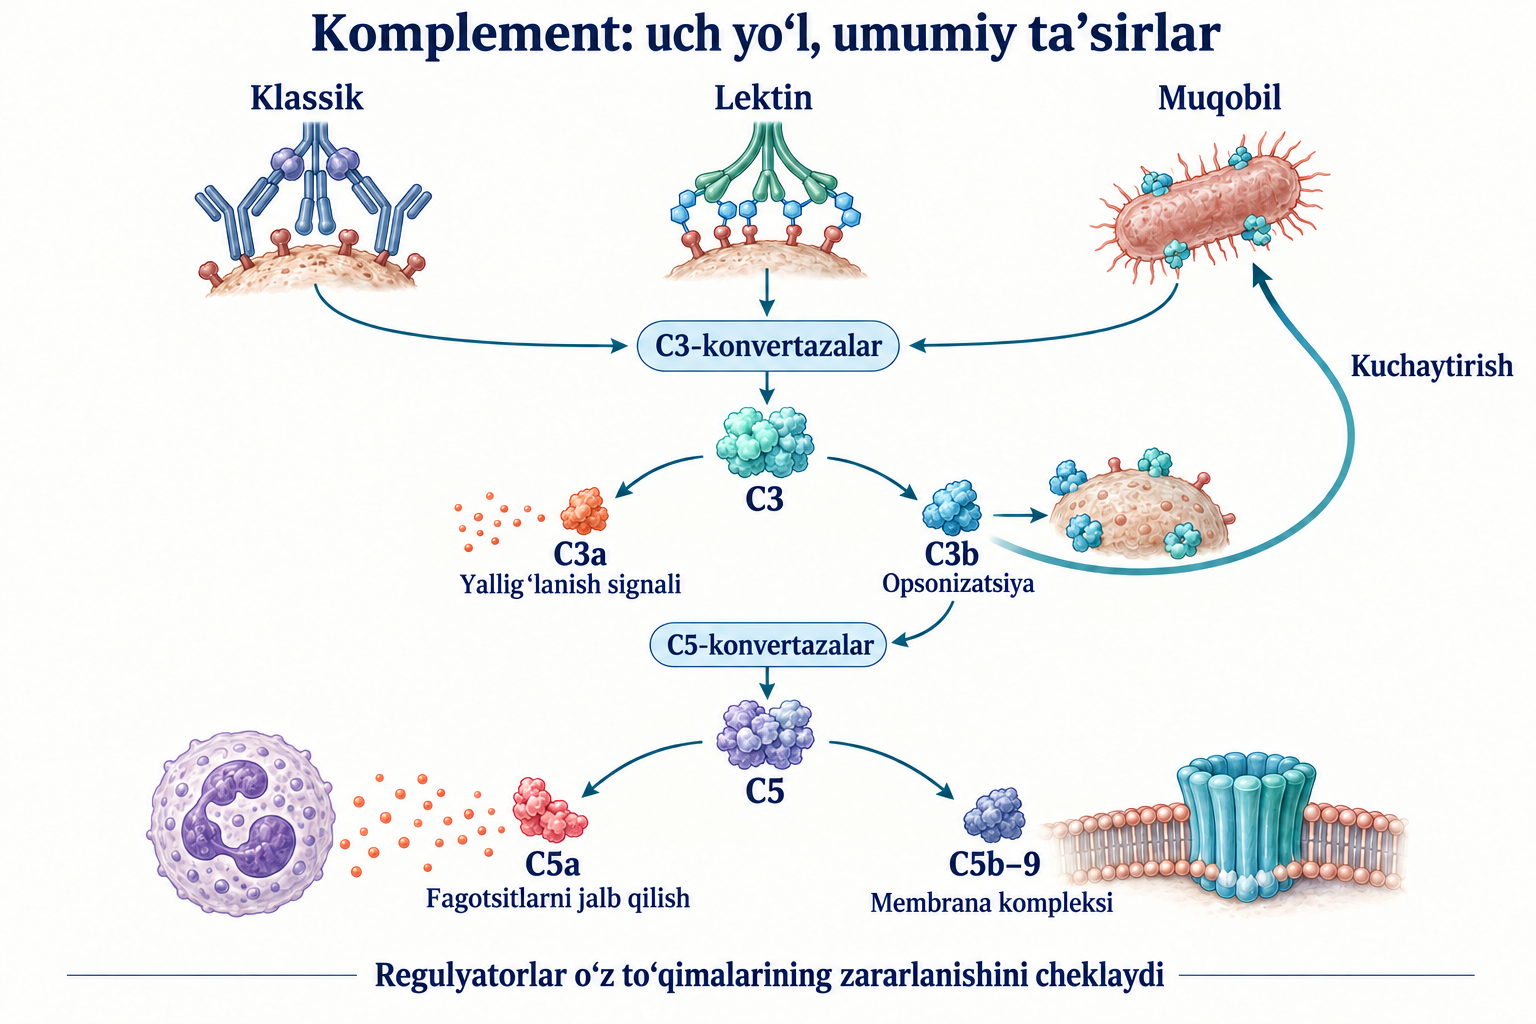
Aylanib yuruvchi komponentlarning ko‘pchiligini jigar sintezlaydi, biroq endoteliy, buyrak va immun hujayralar ham ayrim komponentlarni mahalliy ishlab chiqarishi mumkin. Plazma kaskadi, hujayra sirtidagi reaksiyalar va hujayra ichidagi jarayonlarni avtomatik ravishda bitta mexanizmga birlashtirib bo‘lmaydi. Klinik tushuntirishda uchta natija ayniqsa muhim: C3 fragmentlari bilan opsonizatsiya, C3a/C5a anafilatoksin signallari va terminal C5b–9 kompleksining hosil bo‘lishi. Har birining o‘z retseptorlari, regulyatorlari va davolashga ta’siri bor.
Kaskadga uchta kirish: tanish yo‘l nomidan muhimroq
Klassik yo‘l taniydigan C1q va C1r/C1s serin proteazalaridan tuzilgan C1 kompleksidan boshlanadi. Sirtga bog‘langan IgM yoki IgG ning fazoviy joylashuvi kompleksni faollashtiradi; eritmadagi erkin antitana bunday sirt bilan bir xil emas. C1q zararlangan hujayralarning ayrim tuzilmalari va tug‘ma tanish molekulalari bilan ham o‘zaro ta’sirlashadi, shuning uchun «klassik» faqat antitanaga bog‘liq degani emas. C1s C4 va C2 ni parchalaydi, natijada sirtga bog‘langan C3-konvertaza C4b2a yig‘iladi. Bu yerda C2 ning yirik katalitik fragmentini C2a deb ataydigan keng tarqalgan tarixiy nomenklatura qo‘llanadi; boshqa izchil tizim uni C2b deb ataydi. Nomning o‘zgarishi boshqa ferment mavjudligini bildirmaydi.
Lektin yo‘li mannozani bog‘lovchi MBL lektini, fikolinlar va kollektinlar orqali uglevod hamda atsetillangan guruhlarning mos joylashuvini taniydi. Ularga bog‘langan MASP serin proteazalari bo‘lib, ruxga bog‘liq metalloproteazalar emas. Kalsiy ayrim tanish komplekslari va o‘zaro ta’sirlar uchun muhim, lekin fermentning katalitik sinfini o‘zgartirmaydi. MASP-1 boshlanish va MASP-2 faollashishiga yordam beradi; MASP-2 C4 va C2 ni parchalaydi. Komplekslarning yaqinlashuvi va MASP kinetikasi tadqiqotlari faollashish plazmada lektinning tasodifiy mavjudligiga emas, ligandli sirtdagi fazoviy tashkil etilishga bog‘liqligini ko‘rsatadi.
MASP-3 bu tizimni muqobil yo‘ldagi D omilining yetilishi bilan bog‘laydi. Tinch holatdagi inson qoni bilan tajribalarda faol MASP-3 pro-D omilini yetilgan proteazaga aylantirgan. Bu fermentni tayyorlash darajasidagi yo‘llararo bog‘lanishdir; har bir muqobil faollashish yangi lektin boshlanishini talab qiladi degani emas. Tinch qon kontekstini iviyotgan namuna yoki og‘ir tizimli yallig‘lanishga izohsiz ko‘chirish ham mumkin emas.
Muqobil yo‘l C3 dagi bazal o‘zgarishlar bilan saqlanadi va boshlangan reaksiyaning kuchaytiruvchi halqasi sifatida ayniqsa muhim. Ichki tioefir gidrolizi peptid asosini va C3a domenini saqlagan holda C3(H2O) hosil qiladi: bu C3a va C3b ni proteoliz bilan chiqaradigan reaksiya emas. C3(H2O) B omilini bog‘laydi, D omili bog‘langan B ni Ba va Bb ga ajratadi, shunda suyuq fazadagi C3(H2O)Bb konvertazasi hosil bo‘ladi. Muqobil konvertaza o‘zaro ta’sirlari Mg2+ ga bog‘liq. Gidroliz tezligining birlamchi biokimyoviy o‘lchovlari muhit va boshqa oqsillarga qarab o‘zgargan; ular «organizmdagi barcha C3 ning soatiga 1–2% i» degan universal qoida bermaydi.
C3b: kimyoviy belgi va kuchaytirish platformasi
Nativ C3 dagi reaktiv tioefir oqsil tuzilmasi bilan himoyalangan. C3-konvertaza parchalagach C3a ajraladi, qolgan C3b esa konformatsiyasini o‘zgartiradi. Janssen va hamkasblarining strukturaviy ishlari tioefirli domenning katta siljishini va B omili hamda regulyatorlar bilan bog‘lanish joylarining ochilishini ko‘rsatdi. Qisqa umrli faol holat qo‘shni sirtdagi gidroksil yoki amin guruhlari bilan kovalent bog‘ hosil qilish imkonini beradi. Suv bilan raqobatlashuvchi reaksiya birikish masofasini cheklaydi; suyuq fazada allaqachon gidrolizlangan C3b yangi to‘liq kovalent belgi emas.
Sirtga birikkan C3b B omilini qo‘shadi. D omili B ni mos kompleks ichida parchalaydi, Bb esa sirtdagi C3bBb C3-konvertazasining katalitik subbirligi bo‘lib qoladi. Bu yerda C3b platforma, proteaza emas. Properdin konvertazani barqarorlashtiradi va ayrim sharoitlarda sirtlarni tanishda qatnashadi; uni majburiy universal boshlovchi sensor sifatida ko‘rsatish noto‘g‘ri. Yangi C3b molekulalari qo‘shimcha platformalar yaratadi, shu bois klassik yoki lektin boshlanishi muqobil yo‘l orqali sezilarli kuchayishi mumkin. Uning hissasi aktivator, namuna va o‘lchanadigan chiqishga bog‘liq; butun organizm uchun qat’iy foiz belgilanmagan.
C3b zichligining ortishi C5-konvertaza faolligiga ega komplekslarni hosil qiladi. Ular odatda C4b2a3b va C3bBbC3b deb yoziladi, biroq bu formulalar sirtdagi ferment va substratning fazoviy tashkil etilishini qisqartiradi. C5 parchalanishi eruvchan signal peptidi C5a va terminal yig‘ilishni boshlovchi C5b ni beradi. Shuning uchun C5 va C3 blokadasi tubdan farqlanadi: birinchisi C3b hosil bo‘lishi va opsonizatsiyani saqlaydi, ikkinchisi ertaroq va kengroq aralashadi.
C3b va uning mahsulotlari faqat kuchaytirishga xizmat qilmaydi. I omili mos kofaktorlar yordamida C3b ni iC3b ga aylantiradi; iC3b endi faol muqobil konvertaza yig‘maydi, ammo opsonizatsiya funksiyasini saqlaydi. CR1 C3b/C4b ni bog‘lab immun komplekslarni qayta ishlashda qatnashadi; CR3 va CR4 iC3b ni tanib, fagotsitlarga belgilangan obyektlarni ushlashga yordam beradi. Keyingi C3dg/C3d hosil bo‘lishi CR2 orqali adaptiv immunitet bilan aloqani saqlaydi. Demak, konvertazani proteoliz bilan o‘chirish belgining barcha immunologik oqibatlarini darhol yo‘qotmaydi.
Organizm o‘z sirtlarini qanday himoya qiladi
H omili C3b va mezbon sirtining xususiyatlarini, jumladan sialillangan glikanlar va glikozaminoglikanlarni birga taniydi. U B omili bilan raqobatlashadi, muqobil konvertazaning ajralishini tezlashtiradi va I omiliga kofaktor bo‘ladi. H ning C3b va sialillangan shakarlar bilan komplekslarini strukturaviy o‘rganish tanish domenidagi o‘zgarishlar plazmada oqsil mavjud bo‘lsa ham muayyan sirt himoyasini buzishi mumkinligini tushuntiradi. H miqdori bilan birga C3b paydo bo‘lgan joyga bog‘lana olishi ham muhim.
I omili mos substrat–kofaktor kompleksi bo‘lmasa faolligi cheklangan serin proteazasidir. Hujayradagi CD46 C3b/C4b parchalanishiga kofaktorlik yordam beradi; CD55 konvertaza ajralishini tezlashtiradi; CD59 terminal yig‘ilish va C9 ning membrana kompleksiga qo‘shilishini cheklaydi. CD55 va CD59 GPI langarlari bilan birikkan, CD46 esa transmembrana oqsilidir. Serpinlar oilasidagi C1 ingibitori faol C1r/C1s va ayrim MASP ga ertaroq ta’sir qiladi; C4 ni bog‘lovchi oqsil C4b tutuvchi komplekslarni boshqaradi. Bu mexanizmlar o‘zaro almashtirilmaydi va bir markerning ko‘tarilishi boshqa darajalarning saqlanganini kafolatlamaydi.
Konvertazaning ajralishi va uning platformasi proteolizi turli reaksiyalardir. CD55 katalitik subbirlik ajralishini tezlashtirishi mumkin, I omili esa kofaktor bilan C3b ni qaytmas tarzda o‘zgartiradi. Terminal regulyatorlar C5b hosil bo‘lgandan keyin ishlaydi. Shu sabab o‘z to‘qimalarining zarari sirtni tanish nuqsoni, kofaktor yetishmasligi, konvertaza barqarorligi yoki membrana himoyasining yo‘qolishidan kelib chiqishi mumkin, garchi yakuniy laborator profillar qisman o‘xshash bo‘lsa ham.
C3a va C5a: kichik peptidning ta’siri kichik emas
Inson C3a va C5a si tegishlicha 77 va 74 aminokislota qoldig‘idan iborat. Ularning ixcham tuzilmasini disulfid bog‘lari barqarorlashtiradi, C-terminal qismi esa retseptor faollashishi uchun muhim. Lekin ular o‘zaro almashinadigan xemoattraktantlar emas. C5a neytrofil va monotsitlarni jalb qilish va faollashtirishda ayniqsa muhim; C3a javobi hujayra turi, holati va retseptorlar to‘plamiga ko‘proq bog‘liq. Bitta hujayra tizimidagi EC50 yoki affinlik inson to‘qimalarining universal chegarasi bo‘la olmaydi.
Plazmadagi N karboksipeptidaza va membranadagi M karboksipeptidaza C-terminal argininni olib, desArg hosilalarini yaratadi. Bular rux tutuvchi karboksipeptidazalar bo‘lib, konvertazalarning serin proteazalaridan farq qiladi. C3a-desArg C3aR orqali kanonik faolligini sezilarli yo‘qotadi; C5a-desArg kontekstga bog‘liq qoldiq faollik va retseptor o‘zaro ta’sirlarini saqlaydi. Jarayonni «ikkala peptid ham butunlay o‘chadi» degan formulaga qisqartirib bo‘lmaydi. C3a-desArg ning bahsli metabolik ta’sirlarini ham C5aR2 orqali o‘tadigan shubhasiz universal o‘q deb tasvirlash kerak emas.
C3aR va C5aR1 yetti transmembrana segmentli retseptorlardir. C5aR1 uchun Gi bilan bog‘lanish, signal Gβγ subbirliklari ajralishi va PI3Kγ hamda PLCβ faollashishi muhim. PI3K membranada PIP3 hosil qilib, ko‘chayotgan fagotsitning old chetini tashkil etishga yordam beradi; PLCβ PIP2 ni IP3 va DAG ga parchalaydi. IP3 endoplazmatik retikulumdan Ca2+ chiqishini kuchaytiradi, DAG PKC faollashishida qatnashadi, Rac/Cdc42 esa bu signallarni aktin qayta tuzilishi bilan bog‘laydi. Bu boshqariladigan parallel jarayonlar tarmog‘i, yagona chiziqli «kalsiy–harakat» zanjiri emas.
Avval C5L2 deb atalgan C5aR2 C5aR1 dan farq qiladi: u odatiy kanonik G-oqsil bog‘lanishini ko‘rsatmaydi, lekin β-arrestinlarni jalb qilib, signal javoblarini o‘zgartira oladi. Birlamchi tadqiqotlar «passiv tuzoq» atamasi yetarli emasligini tasdiqlaydi. Biroq ta’sir yo‘nalishi hujayra va yallig‘lanish kontekstiga bog‘liq; C5aR2 ni doim yallig‘lanishga qarshi yoki doim zararni kuchaytiruvchi deb bo‘lmaydi. Retseptor mavjudligi, ligand bog‘lanishi va blokadaning klinik ta’siri dalilning uchta alohida darajasidir.
Fagotsit, mast hujayra va endoteliy turlicha javob beradi
Xemotaksis fazoviy gradient va uni farqlay oladigan hujayrani talab qiladi. Mahalliy C5a hosil bo‘lishi fagotsitni o‘choqqa yo‘naltiradi, uzoq tizimli stimulyatsiya esa desensitizatsiya, retseptor ichkariga olinishi va yo‘naltirilgan harakat buzilishi bilan kechishi mumkin. Sepsisdagi neytrofil disfunksiyasi ko‘p omilli: retseptor signallari, metabolizm va boshqa mediatorlar o‘zgaradi. Sirt C5aR1 yo‘qolishi butun immun falajlikni tushuntirmaydi, C5a konsentratsiyasi esa muqarrar natijani bashorat qilmaydi.
Neytrofil faollashishi va prayming degranulyatsiya hamda respirator portlashni osonlashtirishi mumkin. NOX2 elektronlarni NADPH dan FAD va gem markazlari orqali kislorodga o‘tkazadi: O2 superoksidga, keyin H2O2 ga aylanadi. Miyeloperoksidaza H2O2, xlorid va protondan foydalanib gipoxlorit kislota hosil qiladi: H2O2 + Cl− + H+ → HOCl + H2O. Bu reaksiyalar mos antimikrob bo‘limda foydali, biroq proteaza va oksidlovchilarning hujayradan tashqariga chiqishi endoteliy va matritsani zararlashi mumkin. Neytrofil tashqi tuzoqlari hosil bo‘lishi stimul va sharoitga bog‘liq; C5a universal NETosis dasturini avtomatik ishga tushirmaydi.
Anafilatoksinlar sezgir mast hujayra va bazofil populyatsiyalari degranulyatsiyasida qatnashishi mumkin. Saqlangan gistamin chiqishini leykotriyen va prostaglandin kabi lipid mediatorlarining yangi sintezidan ajratish zarur. C3aR/C5aR1 ekspressiyasi va javob xususiyati populyatsiyalar orasida farqlanadi; «anafilatoksin» har qanday anafilaksiyani komplementga bog‘liq qilmaydi. Retseptor signali va klinik sindromlar aloqasi mast hujayra faollashishining mediator kaskadi haqidagi materialda kengroq tushuntirilgan.
Tomir o‘tkazuvchanligi ortishiga boshqa hujayra mediatorlari va endoteliyga to‘g‘ridan-to‘g‘ri ta’sirlar sabab bo‘lishi mumkin. Shivshankar va hamkasblari inson kindik venasi endoteliy hujayralarida C3a/C5a retseptorlari ekspressiyasi boshqarilishini, migratsiya o‘zgarishini va limfoid hujayralar bilan aloqaga ta’sirni ko‘rsatdi. Bu barcha tomir hududlari bir xil javob berishini isbotlamaydi. Sartain va hamkasblarining boshqa birlamchi ishida miya mikrotomir endoteliyida koptokcha hujayralariga qaraganda muqobil faollashish pastroq, regulyator xususiyatlar kuchliroq edi. Farq to‘qimaga xos zararni tushuntirishga yordam beradi, lekin hujayra modeli alohida insonning kasallik xavfini o‘lchamaydi.
Yallig‘langan endoteliy leykotsit yopishishi, to‘siq kontaktlari hamda prokoagulyant va antikoagulyant signallar balansini o‘zgartiradi. Komplement sitokinlar, trombotsitlar va ivish bilan o‘zaro ta’sirlashadi; tomir ichidagi gemolizda chiqqan gem faollashishni qo‘shimcha qo‘llab-quvvatlay oladi. Bu qat’iy bir yo‘nalishli zanjir emas, o‘zaro kuchaytiruvchi halqadir. Inflammasoma bilan aloqalar ham modelga bog‘liq; NLRP3 va IL-1β hosil bo‘lishi yallig‘lanishni boshqarishning boshqa darajasini tasvirlaydi, uni C3 parchalanishining o‘zi bilan tenglashtirib bo‘lmaydi.
C5b–9: teshik, sublitik signal va eruvchan kompleks
C5 parchalangach beqaror C5b C6 ni, keyin C7, C8 va C9 molekulalarini bog‘laydi. Ketma-ket yig‘ilish MACPF domenli oqsillarning membranaga kirishi va teshik hosil qilishini ta’minlaydi. Krioelektron mikroskopiya murakkab assimetrik arxitekturani ko‘rsatadi; bir xil silindrlar doirasi sifatidagi o‘quv rasmi aniq atom modeli emas, shartli tasvirdir. C9 soni va kompleks geometriyasini barcha biologik membranaga bitta qat’iy qiymat sifatida belgilab bo‘lmaydi.
Sirtning zaifligi C5b–9 mavjudligining o‘zidan muhimroq. Terminal komplement ayrim grammanfiy bakteriyalardan himoyada ayniqsa muhim; qalin devor va boshqa sirt xususiyatlari samarali membrana zararlanishiga to‘sqinlik qilishi mumkin. Yadroli hujayralar shikastlangan membrana qismlarini olib tashlashi yoki ichkariga olishi va sublitik ta’sirga chidashi mumkin. Bunday ta’sir ion oqimlari va signal yo‘llarini o‘zgartirib, darhol osmotik lizissiz yallig‘lanishni davom ettirishi mumkin. Regulyator himoyasini yo‘qotgan eritrotsit va tiklash mexanizmlari bor endoteliy hujayrasi shuning uchun bir xil javob bermaydi.
Eruvchan sC5b–9 membranaga kirishni cheklovchi oqsillar, jumladan vitronektin va klasterin bilan bog‘langan. Uning ko‘tarilishi tegishli namunada terminal faollashish bo‘lganini bildiradi, ammo buyrak yoki tomir devoridagi teshiklarni bevosita sanamaydi. Membrana kompleksi va eruvchan terminal kompleks sinonim emas. Xuddi shuningdek, katta lizis yo‘qligi klinik ahamiyatli komplementga bog‘liq zararni inkor etmaydi.
Turli kasalliklar turli sababiy modellarni talab qiladi
Paroksizmal tungi gemoglobinuriya, PTG, da qon yaratuvchi hujayralar klonidagi somatik PIGA nuqsoni GPI langari sintezini buzadi. CD55/CD59 yo‘qolishi hujayralarni komplementga juda zaif qiladi. Bu orttirilgan klonal kasallik, oddiy ovqat modda tanqisligi yoki faqat «yuqori C3» emas. C5 blokadasi tomir ichidagi gemolizni kamaytiradi, biroq fagotsitlar eritrotsitlarni C3 ga bog‘liq ushlashi saqlanib, tomirdan tashqari anemiyani davom ettirishi mumkin. Gemoglobinga suyak ko‘migi holati va boshqa sabablar ham ta’sir qiladi; bitta nishon to‘liq me’yorlashishni kafolatlamaydi.
Komplementga bog‘liq trombotik mikroangiopatiyada, an’anaviy ravishda atipik gemolitik-uremik sindrom, aGUS, kontekstida muhokama qilinadigan holatda endoteliy zarari kaskad nazorati buzilishi bilan bog‘liq. CFH, CFI, CD46, C3 yoki CFB variantlari hamda H omiliga autoantitanalar bo‘lishi mumkin, lekin genetik omil qo‘shimcha triggerlarsiz doim yetarli sabab emas. ADAMTS13 ning og‘ir yetishmovchiligidagi trombotik trombotsitopenik purpura, infeksiyaga bog‘liq GUS va ikkilamchi mikroangiopatiyalar differensial baholashni talab qiladi. Har bir mikroangiopatiya bir xil komplement terapiyasi kerakligini ko‘rsatmaydi va normal C3 mahalliy regulyatsiya buzilishini inkor etmaydi.
C3-glomerulopatiya morfologiya va C3 ning ustun cho‘kishi bilan aniqlanadi, bitta past konsentratsiya bilan emas. Nefritik omillar konvertazani barqarorlashtirishi, regulyatsiya genetik yoki orttirilgan tarzda buzilishi mumkin; faollik tadqiqotlari funksional mexanizmni antitana mavjudligining o‘zidan ajratish muhimligini ko‘rsatadi. Yoshga bog‘liq makula degeneratsiyasida CFH variantlari xavf bilan bog‘liq, lekin genotip tayyor individual prognoz emas. Ishemiya–reperfuziyada zararlangan sirtlar komplement tanishi va kuchayishini faollashtiradi, biroq biologik jihatdan mantiqli nishon dori aralashuvining muvaffaqiyatini kafolatlamaydi.
Klinik sinovlar aslida nimani ko‘rsatdi
TRIUMPH PTG bo‘lgan 87 bemordagi ikki tomonlama ko‘r, randomizatsiyalangan, platsebo-nazoratli sinov edi. Eculizumab vena ichiga to‘rt hafta haftasiga 600 mg, bir hafta o‘tib 900 mg, keyin 26-haftagacha har ikki haftada 900 mg yuborildi. Birlamchi natijalar gemoglobinning barqarorlashishi va quyilgan eritrotsit birliklari soni edi. Transfuziyasiz barqarorlashish faol guruhdagi 43 kishidan 21 tasida, 49%, platsebo guruhidagi 44 kishidan 0 tasida kuzatildi; quyilgan birliklar medianasi 0 va 10 edi. LDH ning vaqt bo‘yicha egri osti median maydoni 85,8% past bo‘ldi. Bu tomir ichidagi gemoliz markerining natijasi, «o‘limning 85,8% kamayishi» emas; sinovga oldi olingan trombozlarning aniq foizini bog‘lash asossiz.
PEGASUS eculizumabga qaramay gemoglobini 10,5 g/dl dan past qolgan PTG li 80 katta yoshli ishtirokchidagi ochiq, randomizatsiyalangan III faza sinovi edi. To‘rt haftalik birgalikdagi boshlang‘ich davrdan keyin 41 kishi teri ostiga haftasiga ikki marta 1080 mg pegcetacoplanga o‘tdi, 39 kishi esa avvalgi rejimdagi vena ichiga eculizumabni davom ettirdi. Birlamchi natija 16-haftadagi gemoglobin o‘zgarishi edi. Guruhlararo tuzatilgan farq pegcetacoplan foydasiga 3,84 g/dl bo‘ldi; bu har bir bemorning o‘rtacha o‘sishi emas. Transfuziyadan 85% va 15% qutuldi. Ammo LDH o‘zgarishi bo‘yicha kam bo‘lmagan samaradorlik isbotlanmadi; ochiq dizayn, qoldiq anemiyali tanlangan populyatsiya va qisqa taqqoslash davri umumlashtirishni cheklaydi. Inyeksiya joyidagi reaksiyalar va davolash fonidagi qayta gemoliz ham foyda–xavf bahosining bir qismi bo‘lib qoladi.
APEX-AMI ning salbiy natijasi «har qanday zarardan keyin komplementni bostirish» g‘oyasi uchun ayniqsa muhim. Ikki tomonlama ko‘r, platsebo-nazoratli sinovda ST ko‘tarilgan infarkt va birlamchi koronar aralashuvli 5745 bemor pexelizumab yoki platsebo oldi. Anti-C5 preparati aralashuvdan oldin 2 mg/kg bolus, keyin 24 soat davomida soatiga 0,05 mg/kg infuziya bilan yuborildi. Birlamchi 30 kunlik o‘lim 4,06% va 3,92% edi; xavflar nisbati 1,04, 95% ishonch oralig‘i 0,80–1,35, p=0,78. O‘lim bo‘yicha ustunlik aniqlanmadi. Bu komplementning ishemik zarardagi rolini inkor etmaydi, ammo shu populyatsiya va rejimda mexanizmdan samarali davoga avtomatik o‘tishni rad etadi.
Avacopan C5 parchalanishini emas, C5aR1 ni bloklaydi; bu C5b–9 hosil bo‘lishini saqlab anafilatoksin signalini o‘zgartirishi mumkin. Klinik dalilni nishonning jozibasidan alohida baholash kerak. ADVOCATE ANCA bilan bog‘liq vaskulitli 331 bemorni og‘iz orqali kuniga ikki marta 30 mg avacopan yoki prednizon dozasini kamaytirishga randomizatsiya qildi; hamma rituximab yoki cyclophosphamidedan keyin standart davoni ham oldi. Birlamchi natijalar 26-haftada remissiya va 52-haftada barqaror remissiya edi. 2026-yil 29-iyunda NEJM maqolani qaytarib oldi: to‘qqiz bemorning birlamchi natijalari baza yopilib, guruhlar ochilgandan keyin qayta baholangan, ammo maqolada aytilmagan. Avvalgi foizlarni samaradorlikning ishonchli tasdig‘i deb ko‘rsatib bo‘lmaydi.
2026-yil 27-aprelda FDA ning CDER markazi Tavneos ruxsatini qaytarishni taklif qildi: tasdiqlangan qo‘llanish uchun samaradorlik tegishli ravishda isbotlanmagan va arizada muhim yolg‘on bayonotlar bor edi. FDA og‘ir dori bilan bog‘liq jigar zarari, jumladan o‘t yo‘llari yo‘qolishi sindromi va o‘lim holatlarini ham bildirdi. Ruxsatni qaytarish taklifi va yakuniy regulyator qarori turli hodisalar; shu xabar barcha mamlakatlarda jarayon yakunlanganini o‘zi isbotlamaydi. Unda preparat glukokortikoid qo‘llanishini yo‘qotmasligi ham aniq aytilgan. Shuning uchun «steroidsiz remissiya» haqidagi universal va’da bu yerda ilmiy va klinik jihatdan noto‘g‘ri.
C3, C5, C5aR1, B yoki D omili blokadasini tanlash saqlanadigan himoya funksiyalarini o‘zgartiradi. Meningokokk vaksinatsiyasidan keyingi zardob modellari oqibatlar nishon, antitana javobi va o‘rganilgan obyektga bog‘liqligini ko‘rsatadi; ular amaliyotda infeksiya xavfsizligini kafolatlamaydi. Insondagi D omili yetishmovchiligi ham og‘ir infeksiyalar bilan bog‘liq; klassik yo‘lning bir qismi saqlanishi xavf yo‘qligini bildirmaydi. Infeksiya profilaktikasi va kuzatuvi ingibitorning umumiy «selektivligi» bilan emas, aniq preparat va joriy klinik talablar bilan belgilanadi.
Miqdor, funksiya va faollashish — uch xil o‘lchov
C3 va C4 komponent konsentratsiyalarini ko‘rsatadi, butun funksional tizimni emas. Pasayish sarflanish, sintez yoki yetishmovchilikni aks ettirishi, normal qiymatlar esa mahalliy faollashish bilan birga kelishi mumkin. CH50 klassik va umumiy terminal kaskadning funksional saqlanishini baholaydi; AH50/AP50 muqobil va umumiy terminal kaskadni baholaydi. Faqat CH50 past bo‘lsa erta klassik komponentlar, faqat AH50 past bo‘lsa muqobil komponentlar ko‘riladi; ikkalasi past bo‘lsa umumiy komponentlar, sarflanish yoki namuna sifati tekshiriladi. Bu qo‘shimcha tekshiruv yo‘nalishi, mustaqil tashxis emas.
C3 fragmentlari va sC5b–9 kabi faollashish mahsulotlari boshqa savolga javob beradi: reaksiya shu bo‘limda o‘lchanadigan iz qoldirdimi. To‘qimadagi cho‘kish, aylanuvchi mahsulot va konvertaza faolligi bir-biriga mos kelmasligi mumkin. C3-glomerulopatiya yoki mikroangiopatiya tashxisi shu sabab klinik, morfologik, gematologik va funksional ma’lumotlarni birlashtiradi. Genetik variant tasniflanib fenotip bilan solishtirilishi kerak; ahamiyati noma’lum variant umrbod ingibitor uchun avtomatik ko‘rsatma emas.
Tahlil oldidan ishlov berish ayniqsa muhim, chunki komplement qon olingandan keyin ham faollashishi mumkin. Faollashish mahsulotlari uchun Ca2+/Mg2+ ni xelatlab kaskad davom etishini kamaytirish maqsadida EDTA-plazma ko‘p qo‘llanadi; funksional tahlilda vazifa aksincha — reaksiya qobiliyatini saqlash, odatda mos zardob talab qilinadi. Mollnes ishlari va keyingi barqarorlik tadqiqotlari harorat, kechikish va antikoagulyantga bog‘liqlikni ko‘rsatadi. «Komplementning barcha tahlillari faqat EDTA bilan» qoidasi noto‘g‘ri. Ishlov va saqlash laboratoriyaning validatsiyalangan usuliga mos bo‘lishi, noto‘g‘ri tayyorlangan namunadagi yuqori natija tashxisga aylanmasligi kerak.
Polifenollar va omega-3: biokimyoviy gipotezaning chegarasi
Rozmarin kislotasi erta maqola nomi bilan aniqlangan mexanizm orasidagi farqni ko‘rsatadi. 1988-yilgi ish gemoliz pasayishini C3-konvertaza ingibitsiyasi bilan bog‘lagan. Sahu, Rawal va Pangburn ning 1999-yilgi tozalangan komponentlar bilan maqsadli tadqiqotida C3b kovalent birikishining yarim maksimal ingibitsiyasi 34 µM da kuzatildi. Zardob gemolitik tahlilidagi tegishli qiymatlar klassik yo‘l uchun 180 µM, muqobil yo‘l uchun 160 µM edi. C3-konvertaza fermentining sezilarli ingibitsiyasi hatto 10 000 µM da topilmadi. Shuning uchun yakuniy gemoliz pasayishi katalitik markazning bevosita blokadasini isbotlamaydi: C3b birikishiga aralashuv o‘xshash natija berishi mumkin.
Bu sharoitlar insonning og‘iz orqali qabul qilish dozasini belgilamaydi. Klinik tavsiya uchun dastlabki modda va metabolitlarning erkin ekspozitsiyasi, kerakli bo‘limga tarqalishi, nishonga yetishi va muhim natijaning yaxshilanishi haqida ma’lumot kerak. Keltirilgan biokimyoviy ishlar bunday zanjirni bermaydi. Shu bois ulardan «B omilini 15 µM da selektiv bloklash» yoki aGUS va PTG profilaktikasiga tayyor rozmarin kislotasi protokoli kelib chiqmaydi.
Curcumin, quercetin, luteolin, omega-3 va yallig‘lanishning yakunlanishiga yordam beradigan maxsus mediatorlarning sitokinlar, lipid almashinuvi va membranalarga ehtimoliy ta’siri CD55/CD59 ni klinik isbotlangan tiklash yoki komplementni selektiv nazorat qilishga teng emas. Yallig‘lanish markeri pasayishi kaskadning qaysi darajasi o‘zgarganini yoki infeksiyaga qarshi funksiya saqlanganini ko‘rsatmaydi. Retseptor gipotezasi yoki tajribadagi konsentratsiyani universal qo‘shimcha rejimiga aylantirish, tromboz profilaktikasini va’da qilish yoki komplementga bog‘liq kasallik davosini almashtirish uchun yetarli asos yo‘q. Ovqatlanish va umumiy tomir xavfi profilaktikasi muhim, lekin boshqa daliliy vazifani bajaradi.
Amaliy chegara: himoyani saqlash, zararni cheklash
Komplementni «qancha kam bo‘lsa, shuncha yaxshi» tamoyili bilan baholab bo‘lmaydi. Funksiya yo‘qolishi mikrob va immun komplekslarni chiqarishni yomonlashtiradi; nazoratsiz reaksiya o‘z to‘qimalarini zararlaydi. To‘g‘ri savol faollashish joyi, regulyator nuqsoni, aniq effektor chiqish va haqiqatda o‘zgartirish mumkin bo‘lgan klinik natijani qamraydi. PTG, endotelial mikroangiopatiya va infarkt uchun javoblar turli, buni ijobiy va salbiy sinovlar ko‘rsatadi.
Ilmiy asoslangan ketma-ketlik kasallik fenotipini belgilaydi, komponent miqdorini funksiya va faollashishdan ajratadi, ehtimoliy mexanizmni aniqlaydi va tegishli populyatsiyaga foydasi isbotlangan nishonni tanlaydi. Keyin saqlangan himoya funksiyalari, infeksiya xavfi va davoning boshqa cheklovlari baholanadi. Past C3, yuqori sC5b–9 yoki jozibali molekulyar sxema bu ketma-ketlikni almashtirmaydi. Mexanizmni isbotlangan natijadan ajratish komplementni immunitetni universal bostirish sababi emas, tushunarli klinik vosita qiladi.
Tez-tez beriladigan savollar
Komplementning uch yo‘lini nima birlashtiradi?
Ular C3-konvertaza hosil bo‘lishi va keyingi effektor natijalarga kelib qo‘shiladi. Muqobil yo‘l klassik yoki lektin yo‘lida boshlangan javobni ham kuchaytiradi.
C3a va C5a bir xil ta’sir qiladimi?
Yo‘q. C5a neytrofil va monotsitlarni jalb qilishda muhim, C3a esa hujayra va retseptor kontekstiga ko‘proq bog‘liq. Ikkala desArg hosilasi ham bir xil to‘liq faol emas deb hisoblanmaydi.
Normal C3 komplementga bog‘liq zararni inkor etadimi?
Yo‘q. Komponent konsentratsiyasi, kaskad funksiyasi va mahalliy faollashish turli savollarga javob beradi. Tashxis klinik va qo‘shimcha laborator ma’lumotlarni talab qiladi.
C3 va C5 ingibitorlari nega farqlanadi?
C5 blokadasi C5a va terminal kompleksni cheklab C3b hosil bo‘lishini saqlaydi. C3 blokadasi ertaroq ta’sir qilib opsonizatsiyani ham o‘zgartiradi; foyda va qolgan himoya funksiyalari shu sabab boshqacha.
Komplementni bostirishning universal foydasi isbotlanganmi?
Yo‘q. TRIUMPH va PEGASUS ning ijobiy natijalari aniq PTG populyatsiyalariga tegishli. APEX-AMI da anti-C5 preparati o‘rganilgan rejimda infarktdan keyingi o‘limni kamaytirmagan.
ADVOCATE samaradorlikning ishonchli dalili bo‘la oladimi?
NEJM 2026-yilda birlamchi natijalarni qayta baholash muammosi sabab maqolani qaytardi. Avvalgi foizlar ishonchli tasdiq emas; FDA ham jiddiy regulyator va jigar xavflarini bildirdi.
Barcha komplement tahlillari EDTA-plazmani talab qiladimi?
Yo‘q. Faollashish mahsulotlarini tekshirish qon olingandan keyingi reaksiyalarni kamaytirishga qaratilgan; funksional tahlil kaskad qobiliyatini saqlashi kerak. Namuna va ishlov usulga bog‘liq.
Rozmarin kislotasi yoki omega-3 davoni almashtiradimi?
Keltirilgan dalillar bunga asos bermaydi. Biokimyoviy konsentratsiya yoki yallig‘lanish markeri klinik ekspozitsiya, nishonga yetish va natija yaxshilanishini isbotlamaydi. Universal qo‘shimcha protokoli kelib chiqmaydi.