MitoQ y SkQ1: transporte mitocondrial y evidencia clínica — NutriFit
MitoQ y SkQ1: transporte mitocondrial, ciclos redox y límites clínicos
Cómo TPP⁺ aprovecha el potencial, diferencias entre MitoQ y SkQ1 y prooxidación dependiente de dosis. Cardiolipino, transportadores alternativos, estudios vasculares y oculares, farmacocinética y combinaciones.
Un antioxidante mitocondrial debe llegar al compartimento adecuado, conservar su forma activa y reaccionar con radicales sin perturbar la producción de energía. Unir un grupo redox al catión lipófilo trifenilfosfonio, TPP⁺, permite aprovechar el potencial negativo de la matriz para favorecer su acumulación. MitoQ y SkQ1 siguen este principio. Sin embargo, transporte, protección lipídica y beneficio clínico necesitan pruebas diferentes: el cálculo de Nernst no mide la exposición tisular y mejorar un marcador vascular u ocular no demuestra prolongación de la vida.
Qué mostraron los ensayos con antioxidantes convencionales
La teoría de Harman relacionó el envejecimiento y la acumulación de daño con reacciones de radicales libres. De ella se derivó a menudo la expectativa de que grandes dosis vitamínicas prevendrían automáticamente el cáncer y los episodios cardiovasculares. Los ensayos aleatorizados amplios evaluaron sustancias, dosis y poblaciones concretas sin confirmar una prevención universal. Sus resultados no deben extrapolarse indiscriminadamente a corregir deficiencias, a la alimentación habitual o a cualquier molécula antioxidante.
Ensayo
Población e intervención
Resultado y alcance
ATBC, 1994
29 133 hombres fumadores de 50–69 años; α-tocoferol 50 mg/día, β-caroteno 20 mg/día, ambos o control; 5–8 años
Con β-caroteno, cáncer de pulmón un 18% mayor (IC del 95% para el cambio: 3–36%) y mortalidad total un 8% mayor (1–16%). El α-tocoferol no redujo el cáncer pulmonar; un mecanismo del tocoferol no explica por sí solo el daño del β-caroteno
CARET, 1996
18 314 fumadores, exfumadores y trabajadores expuestos al amianto; β-caroteno 30 mg/día + palmitato de retinilo 25 000 UI/día
Cáncer pulmonar: RR 1,28 (IC del 95%: 1,04–1,57); mortalidad total: RR 1,17 (1,03–1,33). Interrumpido antes de tiempo; resultado de esa combinación en una población de riesgo
HOPE, 2000
9541 personas con enfermedad vascular o diabetes y otro factor de riesgo; vitamina E 400 UI/día durante unos 4,5 años
Infarto/ictus/muerte cardiovascular: RR 1,05 (IC del 95%: 0,95–1,16); no se detectó beneficio preventivo
HOPE-TOO, 2005
Seguimiento ampliado de HOPE, mediana de 7 años; participación incompleta en la extensión
Sin ventaja en los principales desenlaces cardiovasculares u oncológicos; insuficiencia cardíaca: RR 1,13 (1,01–1,26); hospitalización por ella: RR 1,21 (1,00–1,47)
SELECT, 2011
35 533 hombres aleatorizados, 34 887 en el análisis principal; vitamina E 400 UI/día, selenio 200 µg/día, ambos o placebo
Mayor riesgo de cáncer de próstata con vitamina E: HR 1,17 (IC del 99%: 1,004–1,36); aumento absoluto de 1,6 casos por 1000 personas-año. Se refiere a esa formulación y pauta, no demuestra daño de la vitamina E alimentaria
Los resultados negativos de GISSI-Prevenzione y Physicians’ Health Study II también contribuyeron a abandonar la prevención antioxidante indiscriminada. Pero estos ensayos no identifican la falta de transporte mitocondrial como única causa del fracaso. Pueden intervenir la diana, el estado nutricional inicial, la exposición, la etapa de enfermedad y la interferencia con señales celulares. El transporte dirigido resuelve una parte del problema farmacológico, sin corregir automáticamente todas las causas de fracaso clínico.
Compartimentos y señalización redox
Los complejos I y III pueden producir superóxido, pero no está establecido que las mitocondrias generen siempre el «90–95% de todas las ROS celulares». La contribución de NADPH oxidasas, retículo endoplásmico, peroxisomas y otros sistemas depende de la célula y su estado. La fuga electrónica medida en orgánulos aislados tampoco es una fracción constante in vivo. NADH/NAD⁺ elevado, un reservorio reducido de CoQ y la fuerza protón-motriz modifican la producción de ROS; la síntesis activa de ATP puede diferir mucho del reposo sin fosforilación.
En el complejo I se distinguen la producción asociada al sitio de flavina y los procesos del transporte inverso de electrones, RET. La reducción de CoQ y el potencial elevado favorecen RET; no basta con describirlo como pérdida de electrones desde el centro terminal N2. La región Qₒ del complejo III puede generar superóxido hacia ambos lados de la membrana interna. El superóxido cargado atraviesa mal el núcleo lipídico; su dismutación por SOD2 produce H₂O₂, que puede transmitir señales entre compartimentos. Por eso, el lugar de producción y el de las consecuencias pueden diferir.
La membrana interna restringe la difusión libre de numerosos compuestos hidrófilos, pero dispone de transportadores especializados. El ascorbato es principalmente aniónico a pH fisiológico; hay que distinguir su transporte del de deshidroascorbato y considerar tejido y transportador. No se puede imponer una única vía GLUT1/GLUT3 ni declarar ausente toda vitamina C mitocondrial. La vitamina E lipófila se distribuye entre membranas; carecer de vector TPP no implica concentración mitocondrial nula. No existe un déficit fijo de concentración de mil veces para todos los antioxidantes convencionales.
H₂O₂ puede modificar reversiblemente los tioles de cisteína, por ejemplo formando ácido sulfénico:
Cys−SH+H2O2→Cys−SOH+H2O.
Los disulfuros y la S-glutationilación, Cys–SSG, son estados distintos; esta última no es sulfenilación. La oxidación de sitios sensibles de PTP1B/PTEN puede modificar la actividad fosfatasa; cambios en KEAP1–NRF2 regulan genes protectores mediante elementos ARE. El efecto depende del residuo, del modificador y del sistema reductor local. Una concentración fija de H₂O₂ no define la señalización normal en todas las células.
Ristow estudió en 2009 a 39 hombres jóvenes durante cuatro semanas de entrenamiento. La combinación de vitamina C 1000 mg/día y E 400 UI/día impidió la mejora de la sensibilidad a la insulina medida y parte de la respuesta adaptativa de expresión. Esto respalda la mitohormesis en esas condiciones, sin demostrar que se anulen todos los beneficios de cualquier ejercicio ni que las ROS relevantes sean exclusivamente mitocondriales. Un exceso de presión reductora puede ser desfavorable; «parálisis reductora» no es un diagnóstico clínico universal.
Por qué un antioxidante puede sostener la oxidación
El tocoferol termina una cadena lipídica al donar un átomo de hidrógeno a un radical peroxilo:
Toc−OH+LOO∙→Toc−O∙+LOOH.
Si no se regenera suficientemente el radical tocoferoxilo, puede propagarse la cadena a otro lípido y reaccionar de nuevo con oxígeno:
Toc−O∙+LH→Toc−OH+L∙,L∙+O2→LOO∙.
Bowry, Ingold y Stocker analizaron este mecanismo en partículas LDL; el ascorbato y el ubiquinol lo inhibían regenerando el radical. Es una posibilidad química relevante, pero no una explicación completa demostrada de ATBC, CARET o SELECT. Resulta especialmente incorrecto explicar resultados del β-caroteno mediante una sola reacción de vitamina E. Los quinonas dirigidas también exigen valorar regeneración, estados semiquinónicos y función respiratoria, además de la interrupción de cadenas.
Cómo aprovecha un catión lipófilo el potencial de membrana
Liberman, Topaly, Tsofina, Jasaitis y Skulachev relacionaron en 1969 los iones orgánicos penetrantes con la medición del potencial y el acoplamiento de la fosforilación oxidativa. Cationes y aniones hidrófobos pueden atravesar la bicapa y distribuirse según el campo eléctrico; una matriz negativa favorece cationes. El término histórico «iones de Skulachev» describe este concepto, sin demostrar acción terapéutica de cada derivado.
En los conjugados TPP⁺, el fósforo se une a tres grupos fenilo y a un cuarto sustituyente que porta el enlazador y el grupo funcional. La envoltura voluminosa y lipófila y la distribución electrónica reducen el coste de entrada a la membrana frente a un pequeño ion inorgánico. Una carga repartida uniformemente entre 18 carbonos por orbitales d vacantes es una descripción cuántica demasiado simple. Radio, hidratación, lipofilia y longitud del enlazador varían entre derivados.
El modelo continuo de Born expresa la energía molar de transferencia de un ion esférico desde agua a un medio de baja constante dieléctrica:
ΔGBorn=8πε0rNAz2e2(εm1−εw1).
Nₐ convierte la energía de una partícula en energía molar; z es la carga, e la carga elemental, r el radio efectivo, ε₀ la permitividad del vacío y εₘ/εw las constantes dieléctricas relativas. Aumentar r reduce la barrera electrostática, pero membranas reales y moléculas no esféricas implican otras interacciones. La fórmula no establece unos «15–25 kJ/mol» universales, ausencia de agua de hidratación ni un solo logP para todos los conjugados. El paso pasivo no consume ATP directamente, aunque mantener el potencial requiere energía y el transporte tisular puede limitarse por eflujo y metabolismo.
Nernst: concentración libre y cantidad total no coinciden
El equilibrio del potencial electroquímico de un ion permeante da:
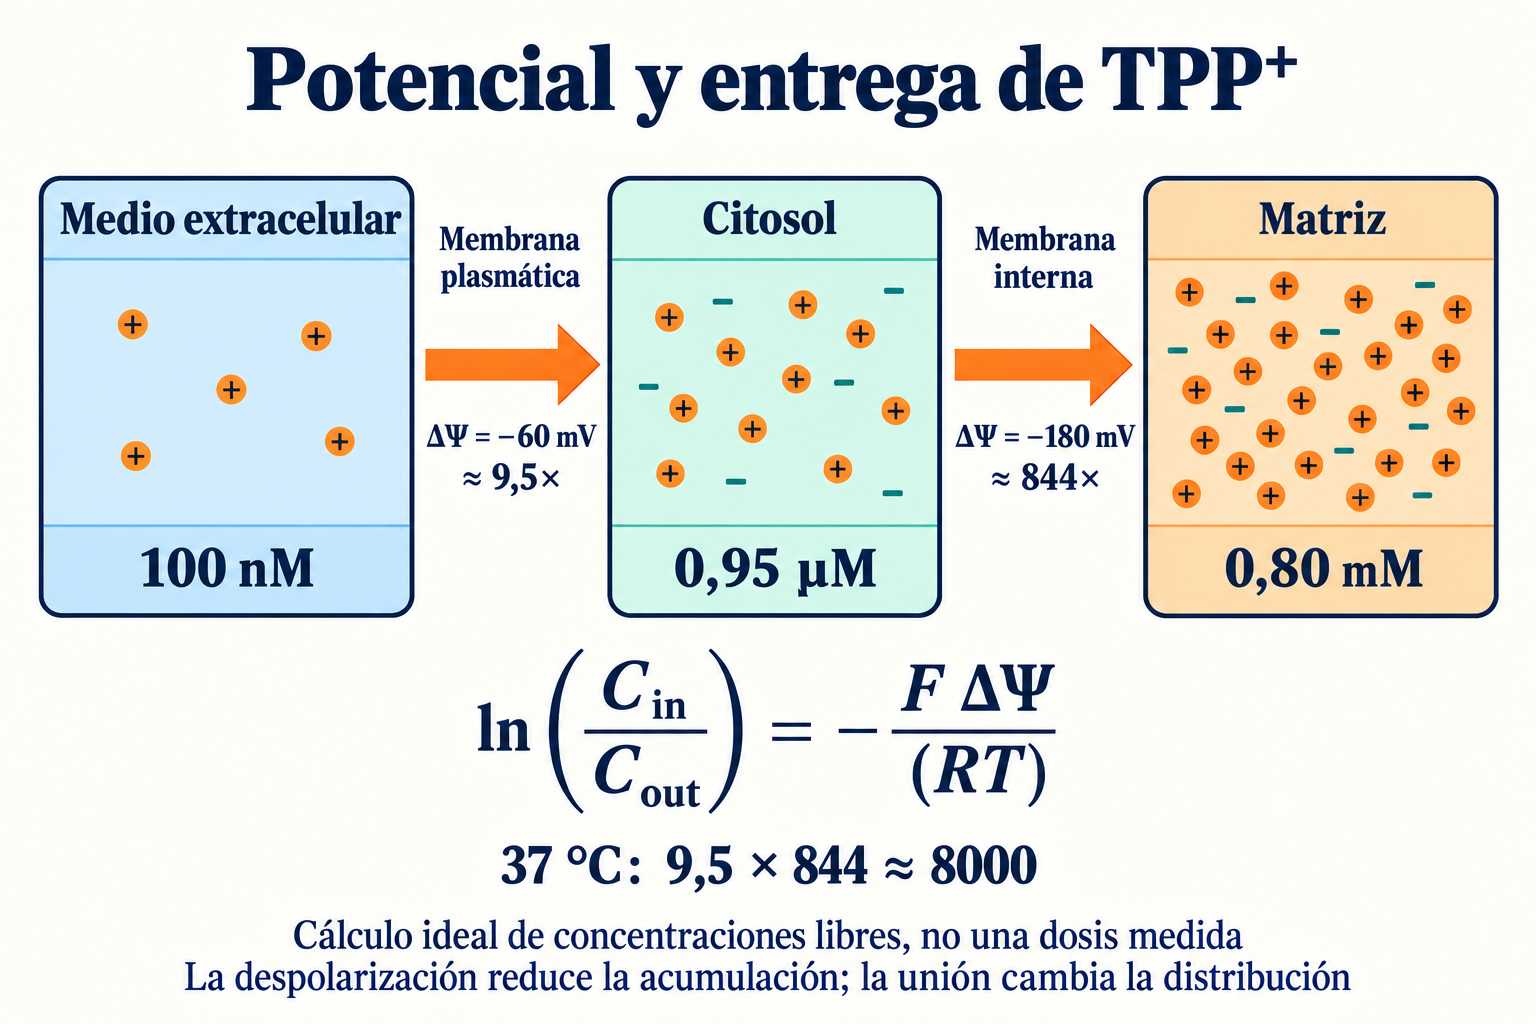
μ=μ∘+RTlna+zFΨ,ln(aoutain)=−RTzFΔΨ.
ΔΨ es el potencial interior menos el exterior. Un ΔΨ negativo favorece la acumulación de un catión monovalente. Si los coeficientes de actividad son iguales, la razón de actividades aproxima la de concentraciones libres. A 37 °C, un escalón de diez veces corresponde a unos 61,5 mV:
CoutCin≈10−ΔΨ/(61.5mV).
Un ejemplo didáctico con −60 mV en la membrana plasmática y −180 mV en la membrana mitocondrial interna produce enriquecimientos aproximados de 9,5 y 844 veces. Su producto ronda 8000, no exactamente 10 000. En este cálculo ideal, 100 nM fuera equivalen a unos 0,95 µM citosólicos y 0,80 mM en la matriz. Son concentraciones hipotéticas, no exposición medida en pacientes ni prueba de seguridad a esos niveles intracelulares.
La unión a membranas aumenta el contenido total sin elevar proporcionalmente la concentración libre; el reparto lípido/agua es otro equilibrio. Influyen unión a proteínas, volumen accesible, equilibrio incompleto, metabolismo y efectos de la sustancia sobre ΔΨ. Los potenciales celulares son heterogéneos. La despolarización reduce la acumulación de conjugados TPP: una mitocondria especialmente dañada no recibe necesariamente más fármaco. «100–1000 veces» puede indicar un orden de magnitud experimental, sin garantizar selectividad o dosis tisular.
MitoQ, SkQ1 y nitróxidos: mecanismos redox diferentes
Grupo quinónico de MitoQ y regeneración
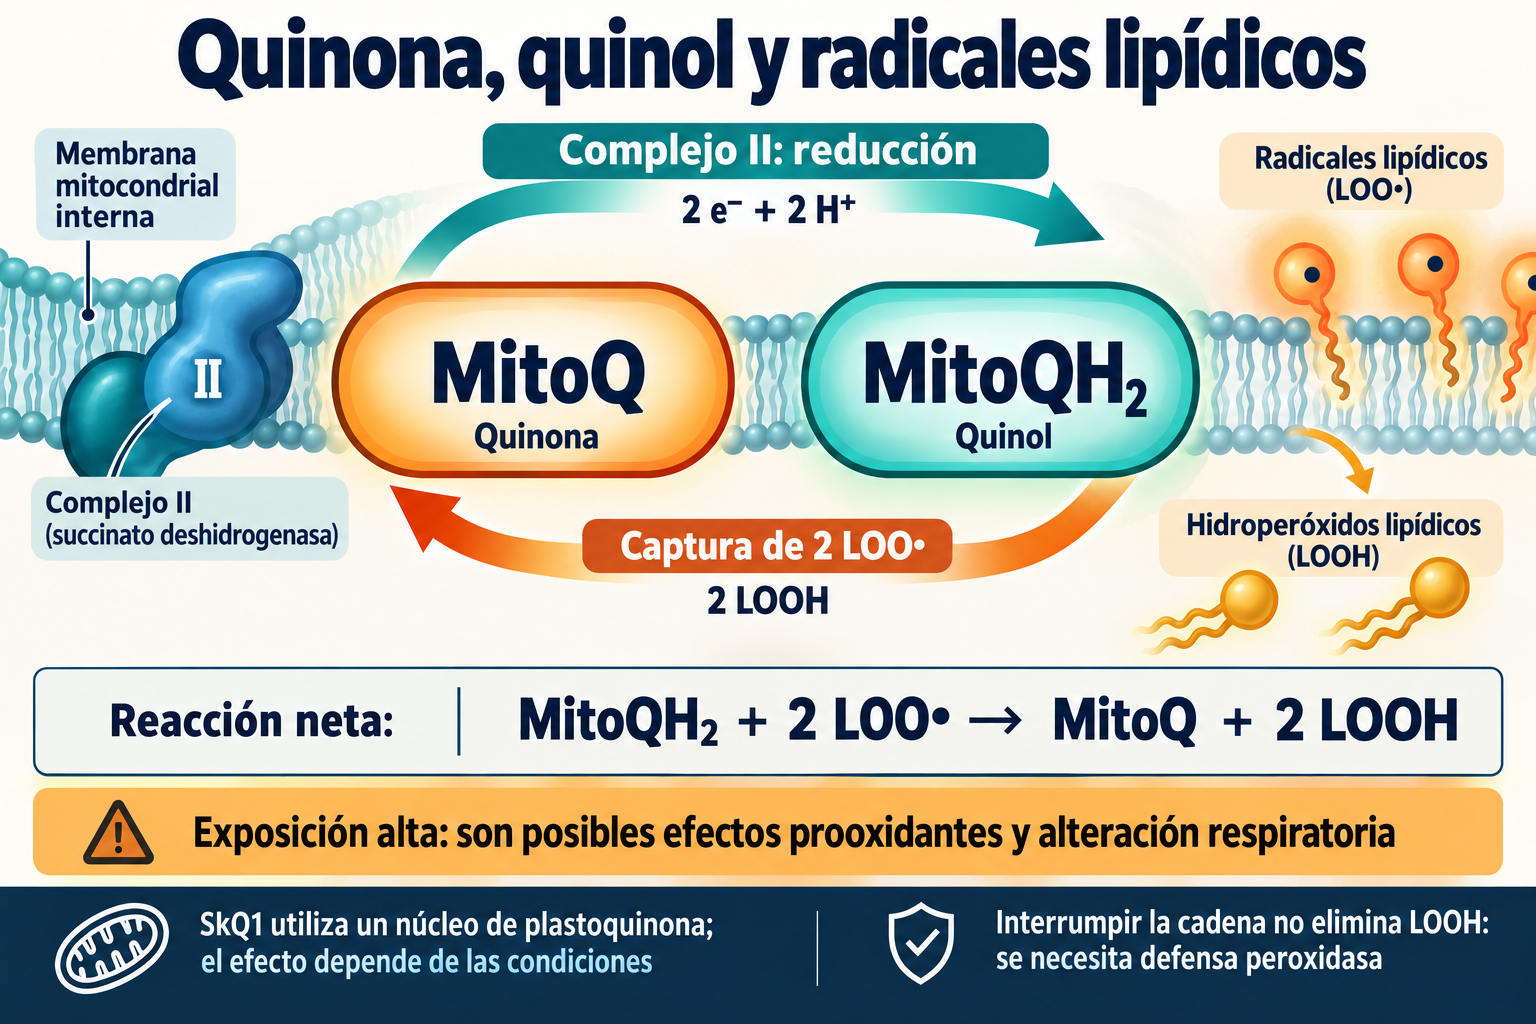
MitoQ une una cabeza de ubiquinona a TPP⁺ mediante un enlazador de diez carbonos. La forma reducida, mitoquinol MitoQH₂, interrumpe cadenas radicalarias lipídicas. El enlazador y la posición del grupo cargado condicionan reparto y acceso enzimático, sin imponer una orientación rígida a 15–20 Å en toda bicapa. Smith estudió en 1999 un derivado dirigido del tocoferol; Kelso investigó MitoQ en 2001. Conviene distinguir estos prototipos.
James mostró en 2007 una reducción eficaz de MitoQ por el complejo II y baja eficacia como sustrato de los complejos I, III y ETF:quinona oxidorreductasa. El fragmento TPP voluminoso y su posición superficial limitan el acceso a ciertos sitios. «Mal sustrato» es más preciso que imposibilidad absoluta de reducción por el complejo I. La oxidación lenta por el III impide considerar MitoQ sustituto completo del CoQ10 natural para transferir electrones. Esta diferencia importa al comparar ubiquinona y ubiquinol CoQ10.
Dos reacciones con radicales peroxilo pueden representarse mediante un intermediario semiquinónico:
La cadena respiratoria puede regenerar el quinol con equivalentes reductores, especialmente procedentes de la oxidación de succinato por el complejo II. El reciclaje no es ilimitado: depende del sustrato, enzimas y exposición. LOOH aún necesita eliminación por peroxidasas, incluida GPx4; detener la propagación no elimina el hidroperóxido. La competencia con lípidos depende de concentraciones locales y condiciones; una constante cinética aislada no establece superioridad de varios órdenes de magnitud.
La semiquinona puede participar en ciclos redox con oxígeno. Para la forma protonada, la reacción formal incluye un protón:
QH∙+O2→Q+O2∙−+H+.
La vía predominante depende del medio y del estado radicalario. No hay un umbral universal de «2–5 µM en la matriz»: concentración externa de cultivo, libre matricial y unida a membrana son magnitudes distintas.
SkQ1: la plastoquinona no elimina la prooxidación
SkQ1 une una cabeza de plastoquinona a un catión lipófilo mediante un enlazador decilo. Los núcleos de plastoquinona y ubiquinona difieren en sustituyentes, incluidos grupos metilo y metoxi, modificando propiedades redox e intermediarios. El origen fotosintético inspira el diseño químico sin probar reactividad nula con oxígeno. El potencial depende del par, protonación y entorno; no se pueden atribuir incondicionalmente al conjugado completo los valores de quinonas naturales.
El estudio primario de Antonenko de 2008 observó efectos antioxidantes de derivados SkQ a baja concentración y prooxidación marcada a concentraciones mayores, micromolares. Informó de un intervalo entre efectos más amplio que el de MitoQ en los sistemas ensayados y de regeneración por la cadena respiratoria. Esto contradice la ausencia de prooxidación de SkQ1. La protección nanomolar del cardiolipino y concentraciones muy bajas que afectan la apoptosis celular inducida por H₂O₂ no definen una dosis sistémica humana. Una ventaja relativa en un ensayo no establece un índice terapéutico universal «100–1000 veces» superior.
MitoTEMPO y MitoTEMPOL
Los conjugados TPP con nitróxidos emplean otro motivo redox. Las formas nitróxido, oxoamonio e hidroxilamina se interconvierten según el medio; se investigan como antioxidantes y miméticos de SOD. Un ciclo formal de dismutación es:
N∙+O2∙−+2H+→N++H2O2,N++O2∙−→N∙+O2.
N representa el motivo redox nitróxido. Las ecuaciones expresan el balance de etapas, no velocidades universales de reacción directa a pH fisiológico. Protonación del superóxido y reacciones con reductores cambian la cinética. El H₂O₂ formado necesita el siguiente sistema protector.
Trnka investigó en 2008 MitoTEMPOL, distinto de MitoTEMPO: el ubiquinol reducía el nitróxido a hidroxilamina. No es apropiado afirmar independencia absoluta de la cadena respiratoria y su reservorio reductor. Dikalova mostró en 2010 que MitoTEMPO reducía superóxido mitocondrial, restauraba disponibilidad de NO y atenuaba hipertensión en células y ratones. Es una línea preclínica distinta, sin establecer tratamiento humano de hipertensión.
Otras plataformas: péptidos y liposomas
TPP es una plataforma, no un requisito de acción mitocondrial. SS-31, o elamipretida, es un tetrapéptido aromático catiónico, D-Arg–Dmt–Lys–Phe–NH₂; Dmt significa dimetiltirosina. Birk mostró en 2013 que la interacción con cardiolipino inhibía la actividad peroxidasa del complejo citocromo c–cardiolipino y protegía riñones de rata frente a isquemia/reperfusión. Esta interacción no se calcula con el mismo factor de acumulación TPP ni equivale a capturar directamente cualquier ROS.
En octubre de 2026, la ficha vigente de FDA para Forzinity (elamipretida) contiene una indicación limitada: mejorar fuerza muscular en adultos y niños con síndrome de Barth que pesen al menos 30 kg. La aprobación acelerada utiliza una medida intermedia de fuerza extensora de rodilla; confirmar beneficio clínico sigue siendo condición para mantenerla. El ensayo aleatorizado cruzado de 12 participantes no mostró superioridad en las variables principales de marcha de seis minutos y fatiga durante 12 semanas. El seguimiento abierto posterior, incluidos ocho participantes a la semana 168, no reemplaza la comparación aleatorizada. Una indicación concreta de un péptido no convierte MitoQ, SkQ1 o toda la categoría en tratamientos para prolongar la vida.
Los péptidos penetrantes mitocondriales, mtCPP, combinan residuos catiónicos y lipófilos. Horton demostró en 2008 transporte mediante diseño de secuencia; ni alternancia de residuos ni permeabilidad en todas las células son universales. MITO-Porter de Yamada, de 2008, utilizó liposomas con octaarginina, captación celular y fusión de membranas para llevar cargas. Difiere del reparto pasivo de un pequeño catión TPP: importan endocitosis, escape vesicular y contacto mitocondrial. Encapsular una sustancia no demuestra por sí solo transporte cerebral humano seguro ni eficacia clínica.
Cardiolipino: la membrana importa más allá de una medida de ROS
El cardiolipino tiene dos grupos fosfato y cuatro cadenas acilo, y abunda en la membrana mitocondrial interna. Su síntesis implica CRLS1 en la cara orientada a la matriz, no un producto soluble libre en ella. La remodelación con tafazzina genera composición específica por tejido. El cardiolipino tetralinoleoílo destaca en ciertos tejidos, incluido el corazón; las cadenas cerebrales son más heterogéneas. Defectos de TAZ alteran el proceso en el síndrome de Barth, sin justificar atribuir cualquier síntoma de envejecimiento a «deficiencia de cardiolipino».
El cardiolipino sostiene complejos proteicos, arquitectura de crestas y organización respiratoria. Su geometría favorece curvatura, pero proteínas y filas de ATP sintasa también moldean la membrana. Estabilizar supercomplejos no establece canalización obligatoria de todos los sustratos por un conducto cerrado: complejos separados pueden funcionar. Oxidar cadenas poliinsaturadas altera interacciones lípido-proteína, por lo que protegerlas de peroxidación en cadena tiene sentido aunque cambie poco el total de ROS.
El citocromo c normalmente transfiere electrones entre complejos III y IV. Kagan mostró en 2005 actividad peroxidasa del citocromo c unido a cardiolipino y participación de su oxidación en etapas tempranas de apoptosis. La unión modifica entorno y coordinación del hemo, incluida Met80; no se exige una secuencia universal de oxidación lipídica antes de activar la peroxidasa. Una reacción formal es:
H2O2+2AH→2H2O+2A∙.
AH denota un donante de equivalentes reductores, no necesariamente una forma concreta de cardiolipino. Los radicales lipídicos pueden iniciar propagación. La protección de lípidos por MitoQ/SkQ1 y la intervención de elamipretida en interacciones proteína-lípido son enfoques experimentales distintos frente a esta vulnerabilidad.
Lesión membranal, aumento de Ca²⁺ y pérdida de potencial pueden interactuar con la apertura del poro de transición de permeabilidad, mPTP. El mPTP de la membrana interna y la permeabilización externa asociada a BAX/BAK son procesos distintos. Liberar citocromo c, ensamblar el apoptosoma con Apaf-1 y activar caspasas no convierte mPTP en la única abertura apoptótica. La protección en un modelo no establece bloqueo completo de todas las vías de muerte celular por un antioxidante.
Evidencia vascular y cardíaca
Rossman incluyó en 2018 a 20 adultos sanos de 60–79 años con dilatación mediada por flujo braquial inferior al 6%. En un ensayo cruzado, 20 mg/día de MitoQ durante seis semanas aumentaron la medida aproximadamente un 42% respecto a placebo. Es un cambio relativo de un marcador, no 42 puntos porcentuales ni restauración demostrada de vasos juveniles. La velocidad de onda de pulso disminuyó en 11 participantes con valores iniciales superiores a 7,60 m/s; no se deduce una reducción de «diez años de edad vascular». Un pequeño subestudio agudo con otra exposición investigaba mecanismos, no una dosis recomendada.
Gioscia-Ryan mejoró en 2014 la disfunción endotelial asociada a edad en ratones. Modelos y pequeños ensayos humanos justifican seguir investigando sin demostrar menos infartos, ictus o muertes. Una mayor disponibilidad de NO puede implicar menor inactivación por superóxido y cambios de señalización; una prueba de dilatación no mide cada mecanismo por separado.
Adlam mostró en 2005 protección cardíaca tras MitoQ oral en ratas sometidas posteriormente a isquemia/reperfusión. La reperfusión cambia bruscamente oxígeno, sustratos y flujo electrónico, de modo que importan momento de administración y modelo. No se puede combinar este resultado con estudios de SkQ1 para fijar un porcentaje garantizado de reducción del infarto; el pretratamiento animal no establece tratamiento del infarto agudo humano.
SkQ1 en oftalmología: efectos locales y variables de resultado
Las gotas Visomitin con SkQ1 se han estudiado en ojo seco. El estudio multicéntrico Brzheski de 2015 incluyó 240 personas, seis semanas de tratamiento y seguimiento posterior de estabilidad lagrimal, tinción corneal y síntomas. El ensayo estadounidense separado de fase II Petrov, de 2016, incluyó 91 participantes, dos concentraciones y control con vehículo; un entorno adverso controlado reproducía estrés de la superficie ocular. Diferencias favorables en regiones y momentos seleccionados no demuestran éxito de todas las variables primarias.
Estudio en ClinicalTrials.gov
Población y evaluación
Interpretación
VISTA-1, NCT03764735, fase III
452 participantes aleatorizados; evaluaciones principales al día 57
Cambios medios en tinción corneal central: −0,28 vehículo, −0,30 concentración baja y −0,20 alta; sensación de arenilla: −0,42, −0,36 y −0,43
VISTA-2, NCT04206020, fase III
610 participantes; SkQ1 1,55 µg/ml frente a vehículo, día 57
Molestia ocular: −0,6 en ambos grupos; tinción conjuntival: −0,63 y −0,69
Son medias descriptivas de resultados publicados en el registro, consultados el 8 de octubre de 2026. Para esos desenlaces no se aportan análisis estadísticos que establezcan superioridad a partir de estos valores. No respaldan la afirmación original de mejora muy significativa en ambos resultados al día 29; tampoco autoriza la ausencia de p publicada a inventar una p negativa. Fase, participantes, concentración, día y elección del desenlace importan. La tolerancia local no garantiza seguridad sistémica prolongada.
El ojo seco afecta sobre todo a la superficie ocular y no equivale a degeneración macular asociada a edad. En ratas OXYS se estudió SkQ1 respecto a epitelio pigmentario, fotorreceptores y αB-cristalina, además de cambios VEGF/PEDF relacionados con edad. Es una línea neurorretiniana experimental sin demostrar tratamiento humano de degeneración macular. No puede convertirse en una afirmación clínica de supresión de VEGF ni sustitución de tratamientos establecidos.
Riñón, neurodegeneración y límites de extrapolación
En ratones diabéticos Akita, 12 semanas de MitoQ redujeron albuminuria, fibrosis y algunos cambios de señalización, incluidos fosforilación de Smad2/3 y β-catenina. Creatinina plasmática y función mitocondrial medida no cambiaron en ese mismo estudio. La protección renal comprende diferentes resultados, sin establecer un porcentaje universal de recuperación de filtración ni una pauta para enfermedad renal crónica.
McManus mostró en 2011 protección de memoria espacial, reducción de alteraciones tempranas como Aβ y astrogliosis, y conservación de proteínas sinápticas en ratones 3xTg-AD. No demuestra corrección de todos los procesos tau en cualquier línea APP/PS1. Miquel vinculó en 2014 MitoQ a menor estrés nitrooxidativo, mayor fuerza y supervivencia en el modelo de ELA SOD1-G93A. La concentración en agua y la edad de inicio son condiciones animales, no prescripción humana.
La prueba clínica pesa más que la expectativa mecanística: Snow siguió en 2010 a 128 pacientes con Parkinson recién diagnosticado durante 12 meses sin hallar efectos sobre progresión con las medidas evaluadas. Etapa de enfermedad, transporte y variables seleccionadas siguen siendo hipótesis para nuevos ensayos. El fracaso no demuestra eficacia obligatoria en fase prodrómica ni fija un porcentaje único de pérdida neuronal al diagnóstico.
Gane evaluó en 2010 28 días de MitoQ en 30 pacientes con hepatitis C crónica. ALT descendió respecto al inicio en grupos activos, pero las comparaciones ordinarias de cambios de ambas dosis frente a placebo no fueron significativas; un análisis integrado difirió para una dosis. La carga viral no disminuyó. Fue un estudio de lesión hepática, no tratamiento antiviral demostrado.
Farmacocinética: calcular acumulación no sustituye medirla
El conjugado TPP debe absorberse en intestino, distribuirse, entrar en la célula y atravesar la membrana interna. La lipofilia facilita algunos pasos; unión proteica, adsorción membranal y acceso tisular modifican la fracción libre. Smith demostró en 2003 transporte oral de compuestos TPP hacia compartimentos mitocondriales de tejidos de ratón, incluidos corazón, hígado, músculo y cerebro. No midió exposición terapéutica cerebral humana de MitoQ ni garantiza paso de todos los conjugados por la barrera hematoencefálica.
La biodisponibilidad absoluta requiere comparar vías y medir correctamente la molécula original. Concentración plasmática, contenido tisular total y concentración matricial libre no son intercambiables. El volumen de distribución es calculado, no volumen físico de matriz. Aclaramiento, semivida, metabolitos y eliminación dependen de estructura y especie. Los documentos verificados no justifican valores humanos universales de 10–12% de biodisponibilidad, 15 l/kg de distribución, 12–24 horas de semivida u «80% biliar» para la categoría.
Oxidación y conjugación son posibles vías metabólicas, pero asignar a MitoQ CYP2C19/CYP3A4, UGT1A1/UGT1A9 y SULT1A1 exige pruebas directas. TPP no vuelve todos los conjugados idénticos sustratos de transportadores ni garantiza estabilidad absoluta del enlazador. Gotas, suplementos orales y péptidos inyectados producen exposiciones diferentes; dosis e intervalos no se convierten únicamente por masa molecular o Nernst.
Dependencia de dosis y seguridad del transportador
El catión lipófilo puede afectar por sí mismo respiración y potencial. Trnka mostró en 2015 efectos de derivados TPP dependientes, entre otros factores, de longitud alquilo e hidrofobicidad. Se necesita un control con transportador apropiado para distinguir cabeza quinónica de efectos de carga y enlazador. El desacoplamiento leve puede reducir ROS; una perturbación mayor compromete energía. Más acumulación no implica automáticamente más beneficio.
Mitocondrias más polarizadas pueden captar más catión, y las despolarizadas menos, limitando transporte a ciertos orgánulos dañados. Exposición membranal elevada, reciclaje redox, cambios del gradiente protónico y efectos en complejos enzimáticos son posibles causas diferentes de daño. No definen un umbral milimolar universal ni prueban bloqueo físico de un túnel atómico concreto del complejo I por todo conjugado TPP.
La tolerabilidad en una muestra adulta pequeña no establece seguridad en embarazo, infancia o enfermedad renal/hepática grave. Deben evaluarse producto, vía, medicamentos concomitantes e indicación. En oncología, los efectos sobre ROS de laboratorio no sustituyen estudios de compatibilidad con la terapia concreta. Estas limitaciones no atribuyen idéntico riesgo a todas las moléculas, pero excluyen prescribir una combinación mitocondrial experimental a partir de cálculos de acumulación.
Enfoque
Transporte y mecanismo
Evidencia
Límite
CoQ10 / ubiquinol
Reservorio quinónico natural, reparto lipídico
Bioquímica y estudios de estados concretos
Un aumento oral no demuestra acumulación matricial tipo TPP
MitoQ
Distribución por TPP, quinona/quinol y defensa lipídica
Modelos, pequeño ensayo vascular y ensayo negativo de progresión de Parkinson
No se ha demostrado prolongación general de vida humana
SkQ1
TPP, núcleo plastoquinónico y ciclo redox
Modelos y ensayos locales de ojo seco
La oftalmología no establece geroprotección sistémica
MitoTEMPO / MitoTEMPOL
Motivo nitróxido con catión lipófilo
Células y animales; moléculas diferentes
No establecen tratamiento humano de hipertensión
SS-31 / elamipretida
Péptido aromático catiónico, cardiolipino
Modelos; aprobación acelerada limitada al síndrome de Barth
No aprobación de toda la clase ni tratamiento general del envejecimiento
mtCPP / MITO-Porter
Diseño peptídico o transporte liposomal
Sistemas experimentales
Transportar una carga no demuestra eficacia clínica
Ritmos, cofactores y combinaciones propuestas
Respiración mitocondrial, alimentación y estado redox varían durante el día. El momento de muestreo y administración importa para investigar exposición, sin establecer un pico matinal universal de potencial, una dosis óptima en ayunas 30–40 minutos antes de comer o beneficio de un intervalo concreto. Hay que evaluar efecto alimentario sobre absorción y tolerancia del producto; un ritmo fisiológico no reemplaza estudios comparativos de horarios.
NR/NMN pueden modificar metabolismo de NAD⁺, pero aumentar un cofactor no garantiza regeneración de MitoQ en todas las vías. SIRT3 regula enzimas y defensas antioxidantes concretas, incluidos ejes SOD2 y NADPH, según sustrato y estado celular. SOD2 convierte superóxido en H₂O₂; GPx4 y otros sistemas requieren recursos reductores para eliminar peróxidos. NAC aporta un precursor de glutatión, sin establecer beneficio clínico de combinar NAC, MitoQ y SkQ1.
La lipoamida covalente de piruvato deshidrogenasa y el ácido R-alfa-lipoico libre desempeñan funciones diferentes. Un suplemento R-ALA no necesariamente acelera PDH, ni acetil-L-carnitina restaura energía de toda mitocondria. Compatibilidad química, mecanismos complementarios y eficacia clínica conjunta son preguntas distintas. NR/NMN, NAC, R-ALA, ALCAR, CoQ10 y un antioxidante dirigido no tienen pauta combinada establecida, concentración matricial objetivo ni beneficio prolongado demostrado; los horarios y dosis originales no se presentan como recomendaciones.
Cómo se preparó el artículo
Es una revisión narrativa del manuscrito proporcionado, con verificación dirigida de trabajos primarios controvertidos, bibliografía, registros y ficha farmacológica el 8 de octubre de 2026. Utiliza metadatos y resúmenes de NCBI/PubMed, resultados de ClinicalTrials.gov y etiquetado vigente FDA/openFDA de elamipretida. No hubo extracción sistemática de texto completo de todos los trabajos; no se afirma búsqueda exhaustiva de literatura reciente, evaluación formal GRADE ni revisión externa. Las conclusiones moleculares detalladas quedan limitadas por condiciones experimentales y descripciones disponibles. Se corrigieron cifras precisas sin respaldo, referencias erróneas y prescripciones clínicas.
MitoQ y SkQ1 ilustran cómo el transporte químico modifica una reacción redox local. Potencial, regeneración de quinona y conservación lipídica explican el interés experimental sin garantizar beneficio en cualquier enfermedad. En humanos importan exposición medida, desenlace concreto, duración y efectos adversos. Los resultados oculares locales, la pequeña señal vascular, el ensayo neurológico negativo y la indicación limitada de un péptido deben conservar sus propios límites de evidencia.
Preguntas frecuentes
¿Da la ecuación de Nernst una dosis terapéutica de MitoQ?
No. Describe una razón ideal de equilibrio entre actividades o concentraciones libres. Unión, farmacocinética y cambios de potencial requieren mediciones; esa razón no permite prescribir la dosis.
¿SkQ1 nunca es prooxidante?
Los experimentos primarios detectaron prooxidación a exposición elevada. Un intervalo más amplio entre efectos en un sistema no garantiza seguridad universal.
¿Las gotas SkQ1 demuestran prolongación de la vida?
Los estudios de ojo seco evalúan administración local y resultados oculares. No establecen geroprotección sistémica ni tratamiento eficaz de degeneración macular humana.
¿En qué difieren MitoQ y CoQ10?
MitoQ contiene un vector TPP y se distribuye de otra manera en membranas. Reducción y oxidación enzimáticas difieren del CoQ10 natural, por lo que no reemplaza por completo su reservorio respiratorio.
¿NR/NMN, NAC, R-ALA y MitoQ constituyen un protocolo probado?
Funciones bioquímicas complementarias no establecen dosis eficaces, compatibilidad ni beneficio humano prolongado. No existe una pauta confirmada para esta combinación.