L-орнітин-L-аспартат (LOLA): цикл сечовини, глутамін і гіперамоніємія
Як субстрати LOLA пов’язують цикл сечовини, зональність печінки та м’язовий глутамін; що показують дослідження енцефалопатії, рецидивів, гострої недостатності й безпеки.
Як субстрати LOLA пов’язують цикл сечовини, зональність печінки та м’язовий глутамін; що показують дослідження енцефалопатії, рецидивів, гострої недостатності й безпеки.
L-орнітин-L-аспартат постачає дві амінокислоти, що беруть участь в обміні азоту. Орнітин регенерується в циклі сечовини, а аспартат віддає другий атом азоту сечовини й пов'язує трансамінування з мітохондріальним окисно-відновним обміном. Доступність цих субстратів може підтримувати знешкодження аміаку за умови збереження потрібних ферментів, переносників і функціональних тканин. Це не доводить прямого зв'язування LOLA з карбамоїлфосфатсинтетазою-1 людини (CPS1) та її активації. Обов'язковим активатором CPS1 є N-ацетилглутамат (NAG), який утворює N-ацетилглутаматсинтаза (NAGS); аргінін активує NAGS ссавців. Субстратна підтримка не компенсує автоматично втрату печінкової тканини, портосистемне шунтування чи спадковий дефект циклу сечовини (Bachmann та співавт., 1982; Caldovic та співавт., 2006; de Cima та співавт., 2015).
Клінічні питання також потребують розмежування. Зниження аміаку, швидше відновлення при печінковій енцефалопатії, запобігання рецидивам і збільшення виживаності — різні результати. Дослідження при цирозі дали корисні сигнали, зокрема щодо додавання LOLA до лікування тяжкої енцефалопатії, але ефект залежить від популяції, порівняння й обраного показника. Рандомізоване дослідження при гострій печінковій недостатності не встановило переваг за аміаком або виживаністю. Правдоподібний механізм та окрема позитивна робота не підтверджують універсальної ефективності.
LOLA — сіль L-орнітину й L-аспарагінової кислоти у співвідношенні 1:1, а не пептид із ковалентним зв'язком між ними. Обидві амінокислоти мають природну L-конфігурацію, що відповідає S-конфігурації альфа-вуглецю. Склад безводного еквімолярного поєднання:
За стандартними атомними масами молярні маси компонентів становлять приблизно 132,16 і 133,10 г/моль, а поєднання — 265,26 г/моль. Стрілка позначає склад солі, а не конденсацію з відщепленням води. У розчині іони дисоціюють, а протонування залежить від pH. За фізіологічного pH орнітин переважно катіонний завдяки додатковій аміногрупі, аспартат аніонний завдяки другій карбоксильній групі. Стереохімія впливає на розпізнавання ферментами й переносниками, проте не дозволяє стверджувати, що всі переносники абсолютно виключають будь-які D-ізомери.
Після розчинення перорального препарату амінокислоти надходять до кишкових транспортних систем. У перенесенні катіонних амінокислот беруть участь кілька родин, зокрема системи y+; для кислих амінокислот важливі натрійзалежні EAAT, включно з EAAT3/SLC1A1. CAT1/SLC7A1 не описує весь апікальний захват орнітину: істотні полярність епітелію, інші переносники, харчові конкуренти й градієнти. Наявність гена не визначає точної частки всмоктування через відповідний переносник.
Парентеральне введення оминає кишкове всмоктування, пероральне включає абсорбцію та пресистемний обмін. Однакові амінокислоти не роблять ці шляхи взаємозамінними. Плазмові концентрації відображають розподіл і метаболізм поряд із всмоктуванням. Ранній пік не вимірює надходження субстрату до мітохондрій або потік через цикл сечовини.
Фармакокінетична література містить невеликі роботи з добровольцями та огляди давніших експериментів. Огляд 2019 року описує пероральне дослідження десяти здорових учасників зі значною варіабельністю експозиції. Воно не встановлює універсальної біодоступності 85–90%, єдиного об'єму розподілу чи сталого періоду напіввиведення при тяжкому цирозі. Доступний запис роботи Kowalski і Bieniecki 2006 року підтверджує порівняння лікарських форм, але не розкриває всіх методів, потрібних для перенесення оцінок на будь-який препарат і пацієнта. Функція печінки й нирок, шлях введення та початкові амінокислотні пули змінюють експозицію. Тому оцінки розглядаються як спостереження за конкретних умов, а не алгоритм дозування.
У клінічному мовленні «аміак» часто означає сумарний пул аміаку й амонію. Рівновага між формами:
Для ілюстративного pKa 9,25 частка незарядженої форми дорівнює:
За pH 7,40 це приблизно 0,014, або 1,4%. Значення залежить від pH, температури й складу середовища. Це кислотно-основний розрахунок, а не діагностичний поріг енцефалопатії. NH3 відносно легко проходить крізь мембрани, але перенесення NH4+ каналами й переносниками також визначає тканинну експозицію; пасивна дифузія NH3 не пояснює весь процес.
Азот надходить до цього пулу внаслідок мікробного обміну кишечника, розпаду глутаміну в ентероцитах, катаболізму амінокислот та інших реакцій. Печінка переводить значну частину в сечовину чи глутамін. Портосистемні шунти спрямовують кров повз гепатоцити, а втрата функціональної маси зменшує метаболічну потужність. Інфекція, шлунково-кишкова кровотеча, закреп, зневоднення, електролітні порушення й седативні ліки можуть погіршувати енцефалопатію; один рівень аміаку не пояснює всі чинники.
При цирозі печінкова енцефалопатія — клінічний синдром, який оцінюють у контексті та з урахуванням інших причин когнітивних порушень. Підвищений аміак самостійно не встановлює наявності чи ступеня синдрому; результат залежить також від забору й оброблення зразка. Нормальне значення вимагає переглянути діагноз. EASL 2022 та офіційний стислий документ ACG 2026 відокремлюють клінічну оцінку від рутинного підбору лікування за аміаком. Це не скасовує його біологічної ролі. При гострій недостатності зв'язок з набряком мозку й прогнозом стосується іншої ситуації та не створює універсальної амбулаторної цільової концентрації.
Мінімальну енцефалопатію виявляють відповідними тестами за відсутності очевидних клінічних ознак. Прихована форма включає мінімальну та I ступінь West Haven; явна — II–IV ступені. PHES поєднує п'ять паперово-олівцевих завдань: з'єднання чисел A і B, цифрові символи, послідовне проставлення крапок і проведення ліній. Потрібні норми для віку, освіти й мови. Критична частота злиття мерехтінь (CFF) характеризує поріг сприйняття за визначених умов, а не безпосередньо набряк астроцитів. Поліпшення одного тесту, аміаку або домену якості життя не дорівнює запобіганню явним епізодам чи збільшенню виживаності.
Кров рухається синусоїдами від портального боку до центральної вени. Цикл сечовини переважно працює в перипортальних гепатоцитах; висока експресія глутамінсинтетази характерна для вузької перицентральної популяції далі за потоком. Широка уреагенна система переробляє вхідний азот, а після неї високоафінна система включає залишковий аміак у глутамін. Це фізіологічні програми, а не непроникні межі чи сталий відсоток клітин людини.
Перицентральна ідентичність пов'язана з місцевими сигналами, зокрема Wnt/бета-катеніном, і градієнтами кисню та субстратів. Хвороба може змінювати ці програми. Мишачі експерименти Hakvoort та співавт. (2017) з нокаутом і мітками показують важливість глутамінсинтетази. Вони не встановлюють універсального людського розподілу, наприклад точно 70–80% через сечовину, а решти через глутамін. Афінність ферменту не гарантує достатнього кліренсу за браку клітин, ATP або доступу крові.
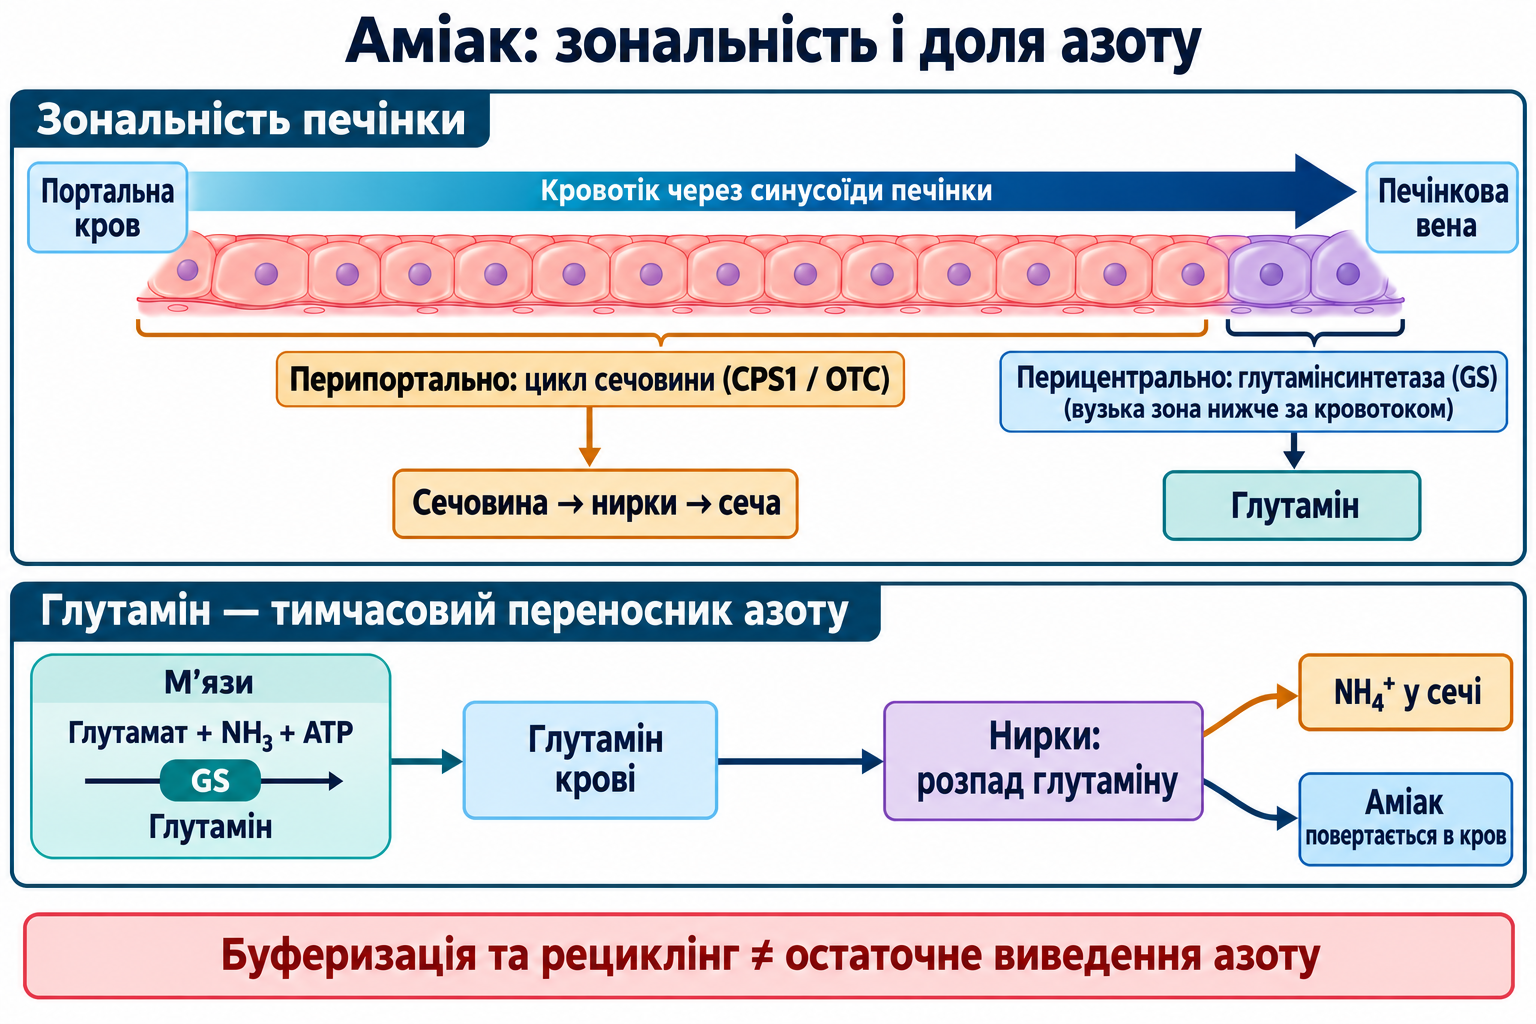
Схема функціональна: ширина клітин не відображає кількісних анатомічних часток. Сечовина може виводитися нирками із сечею, хоча частково бере участь у кишковому рециклюванні. Глутамін тимчасово пакує азот для транспорту та біосинтезу; його подальший розпад може знову виділити аміак. Збільшення синтезу глутаміну слід оцінювати разом із подальшою долею азоту.
NAGS утворює NAG із глутамату й ацетил-КоА. Bachmann та колеги охарактеризували NAGS людини 1982 року; Caldovic та співавт. (2006) підтвердили стимуляцію аргініном рекомбінантних ферментів ссавців. Спрощена реакція:
NAG зв'язується з CPS1 і забезпечує конформацію для ефективного каталізу, але не стає донором азоту сечовини. CPS1 людини використовує вільний аміак, бікарбонат і два ATP-залежних фосфорилювання для утворення карбамоїлфосфату. Два центри фосфорилювання й внутрішнє перенесення проміжних сполук складають єдиний механізм. На відміну від деяких бактеріальних систем, CPS1 людини не слід описувати як орнітин-регульовану чи таку, що безпосередньо використовує глутамін. Структурна робота de Cima та співавт. (2015) підтримує NAG-залежний перемикач; димер в асиметричній кристалографічній одиниці не доводить обов'язковості функціонального димера.
На рівні основних субстратів без повного обліку протонування:
Орнітин має потрапити в матрикс для наступної реакції. ORNT1, кодований SLC25A15, бере участь в обміні орнітину й цитруліну з протонним спряженням. Досліди Fiermonte та співавт. (2003) з людськими переносниками підтверджують функцію, але не нерегульовану дифузію чи сталу швидкість при цирозі. Важливі баланс зарядів та обмінні субстрати; процес не зводиться до обміну нейтральної молекули на заряджену без додаткового спряження.
LOLA поповнює орнітинові й аспартатні пули та може опосередковано підтримувати пов'язані реакції. Це підстава досліджувати зменшення аміаку, а не доказ прямого зв'язування LOLA з CPS1, орнітинової алостерії CPS1 людини чи гарантованого утворення NAG. Дефіцити NAGS, CPS1, OTC та ORNT1 — різні хвороби. Аналоги NAG, як-от карглумова кислота, фармакологічно відрізняються від LOLA. Не можна вважати, що субстратна сіль обходить усі ці дефекти.
Цикл перетинає мітохондріальну мембрану. CPS1 та орнітинтранскарбамілаза (OTC) працюють у матриксі; аргініносукцинатсинтетаза (ASS1), аргініносукцинатліаза (ASL) і аргіназа-1 (ARG1) завершують канонічний печінковий цикл у цитозолі. Позаклітинний аспартат не є субстратом, автоматично доставленим до мітохондріального ферментного комплексу.
| Етап | Основний компартмент | Субстрати й продукти | Значення |
|---|---|---|---|
| CPS1 | Мітохондріальний матрикс | Аміак + бікарбонат + 2 ATP → карбамоїлфосфат | Перший атом азоту; потрібен NAG |
| OTC | Мітохондріальний матрикс | Карбамоїлфосфат + орнітин → цитрулін + фосфат | Цитрулін згодом експортується |
| ASS1 | Цитозоль | Цитрулін + аспартат + ATP → аргініносукцинат + AMP + пірофосфат | Аспартат віддає другий атом азоту |
| ASL | Цитозоль | Аргініносукцинат → аргінін + фумарат | Зв'язок із фумаратно-аспартатною мережею |
| ARG1 | Цитозоль | Аргінін + вода → сечовина + орнітин | Сечовина утворюється, орнітин регенерується |
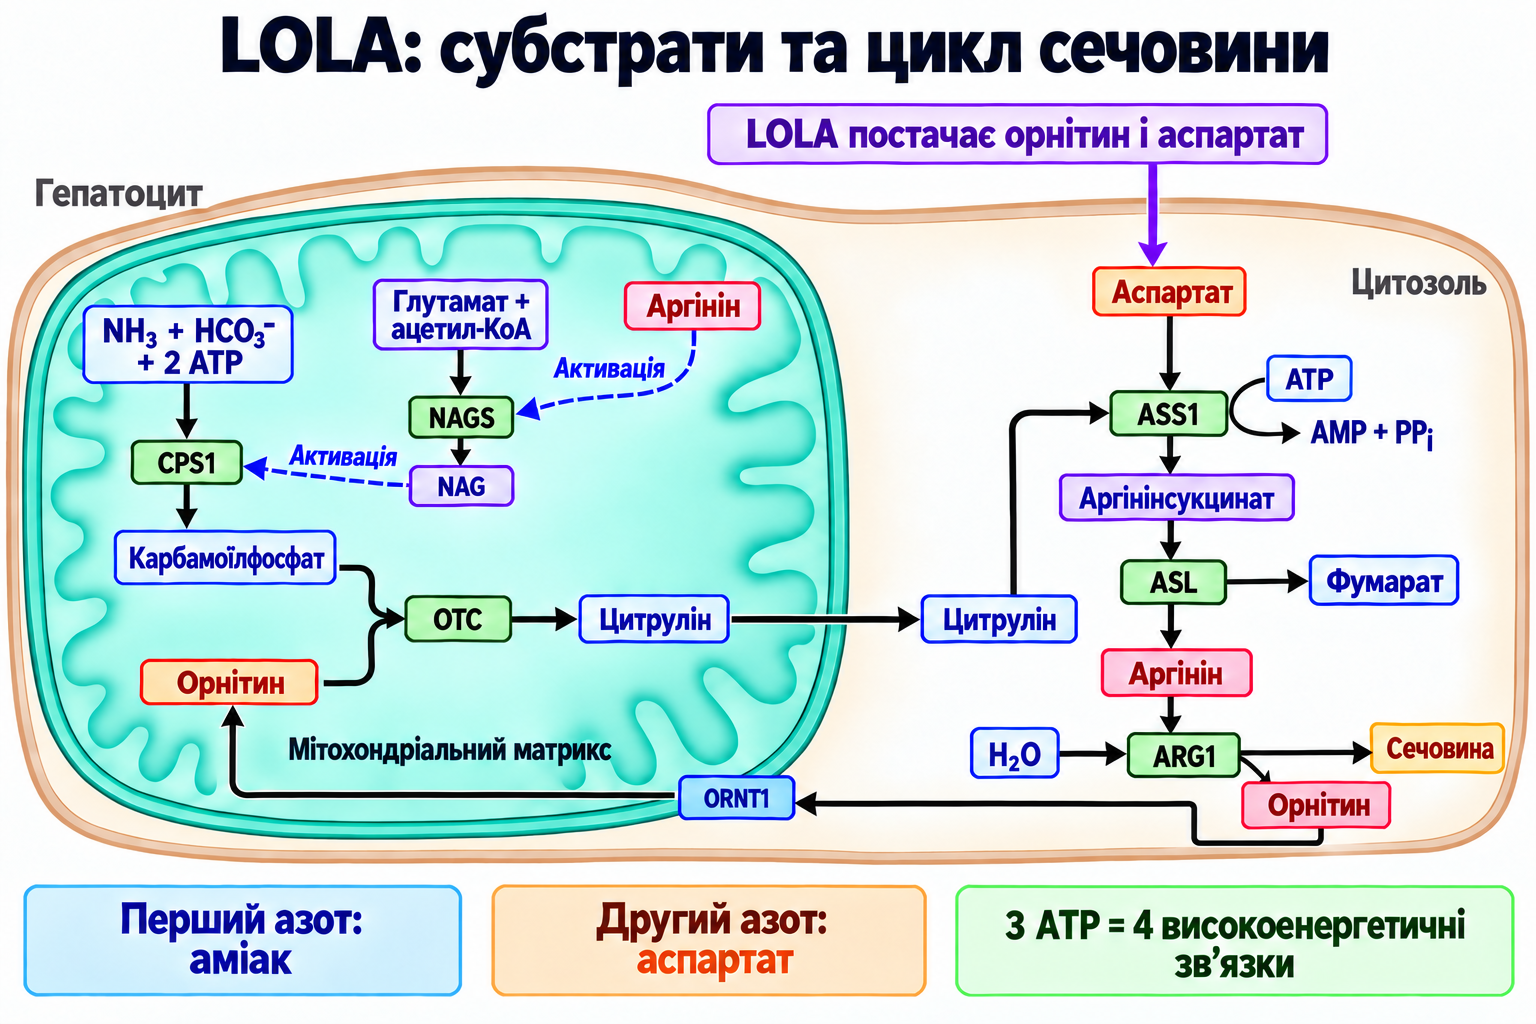
Дві молекули ATP перетворюються на ADP у CPS1, одна на AMP у ASS1. Витрачаються три ATP і чотири еквіваленти високоенергетичних фосфатних зв'язків з урахуванням ATP→AMP та гідролізу пірофосфату. Таблиця скорочує протонні стани й не є повністю іонно-збалансованим рівнянням. Вуглець сечовини походить із бікарбонату, один азот із аміаку, другий з аспартату. Орнітин регенерується як переносник циклу, а не віддає один із двох атомів азоту кожній новій молекулі сечовини.
Реакція ASS1 окремо показує роль аспартату:
Гідроліз пірофосфату сприяє спрямованості біосинтетичної реакції. Фумарат після ASL може давати малат і оксалоацетат; трансамінування регенерує аспартат. Аспартатно-аргініносукцинатний зв'язок координує вуглецевий та азотний обмін, але не означає однакового посилення всіх потоків після додавання субстрату.
ARG1 містить двоядерний марганцевий центр, потрібний для гідролізу аргініну. Металокофактор пояснює каталітичну структуру, а не потребу довільно додавати марганець. Орнітин також входить у синтез поліамінів через орнітиндекарбоксилазу з утворенням путресцину й наступних поліамінів, пов'язаних із ростом та регуляцією клітин. Конкуруючі шляхи показують важливість розподілу пулу. Поліамінова біологія не доводить відновлення циротичної тканини, регресу фіброзу чи вибіркового прискорення регенерації під дією LOLA. Субстрат не замінює ATP, відсутнього ферменту й достатньої перфузії.
Орнітинамінотрансфераза (OAT) — мітохондріальний піридоксальфосфатзалежний фермент. Вона переносить дельта-аміногрупу орнітину на альфа-кетоглутарат, утворюючи глутамат і глутамат-5-напівальдегід. Напівальдегід взаємоперетворюється з піролін-5-карбоксилатом (P5C); подальше окиснення за участю ALDH4A1 може дати глутамат. Структурна робота щодо OAT людини 1998 року підтримує каталітичну основу.
Вуглецевий скелет першого глутамату походить з альфа-кетоглутарату, а напівальдегід/P5C зберігає скелет орнітину. Якщо останній також перетвориться на глутамат, система дасть дві молекули, але обидва скелети не походять з однієї орнітинової молекули. Ігнорування додаткового альфа-кетоглутарату порушує баланс вуглецю. Зворотність OAT і зв'язок з обміном проліну не дозволяють вважати фермент необмеженим однобічним генератором глутамату.
Аспартатамінотрансферази пов'язують аспартат і глутамат:
GOT1 переважно цитозольна, GOT2 мітохондріальна. Потік залежить від локальних концентрацій, окисно-відновного стану й пов'язаних реакцій. Утворення глутамату пояснює можливий зв'язок субстратів LOLA із синтезом глутаміну, але результат обмежують доступність альфа-кетоглутарату, енергія та переносники.
Глутамінсинтетаза, кодована GLUL, включає аміак у глутамат із витратою ATP:
Каталіз включає активований гамма-глутамілфосфат та металозалежне розташування субстратів. Азот аміаку стає амідним азотом глутаміну, а глутамат постачає свій початковий альфа-амінний азот. Позапечінкова реакція важлива як буфер, проте потребує ATP і глутамату; продукт має далі транспортуватися чи використовуватися.
Коли можливості печінки зменшуються, скелетні м'язи стають важливим місцем включення аміаку. М'язова маса визначає резерв. Трансамінування амінокислот із розгалуженим ланцюгом постачає глутамат, переносячи аміногрупи на альфа-кетоглутарат. Це пов'язує тему з обміном BCAA і розгалужених кетокислот: напрям і регуляція катаболізму важливіші за твердження, що додавання будь-якої амінокислоти завжди поліпшує чутливість до інсуліну чи виведення азоту.
Відтік вуглецю альфа-кетоглутарату з мережі циклу трикарбонових кислот — катаплероз. Називати його «анаплеротичним виснаженням» неправильно: анаплероз означає поповнення. М'язовий синтез глутаміну потребує вуглецевих скелетів та енергії, особливо при хворобі й недостатньому харчуванні. Гіперамоніємія змінює анаболічні сигнали та протеостаз. Робота Qiu та співавт. (2013) у клітинах і мишах пов'язує аміак із NF-kappaB/міостатином, пропонуючи механізм втрати м'язів. Вона не доводить відновлення сили, площі м'язів і фізичної функції в усіх людей із цирозом під дією LOLA.
Вихід глутаміну з тканин забезпечують кілька переносників. Переносник захвату, наприклад SNAT2, не можна називати єдиним шляхом експорту. Зміна глутаміну крові не визначає однозначно орган походження та не доводить сприятливого кінцевого азотного балансу. М'язову буферизацію, харчування, білковий обмін і фактичну ниркову втрату азоту треба розрізняти.
Глутамін крові бере участь у синтезі нуклеотидів, кислотно-основній адаптації, імунному й кишковому метаболізмі та перерозподілі азоту. У нирках глутаміназа вивільняє амідний азот як аміак; глутаматдегідрогеназа може вивільнити додатковий азот глутамату з утворенням альфа-кетоглутарату. Нирковий амоніогенез особливо важливий для кислотно-основної регуляції.
Частина аміаку секретується в канальцеву рідину й виводиться як амоній; частина може потрапити до ниркової вени. Пряме дослідження органного балансу людини van de Poll та колег (2008) нагадує, що нирки здатні віддавати аміак системному кровотоку. Тому висновок «LOLA утворює глутамін, отже весь його азот незворотно видаляється нирками» хибний.
У канальцевому транспорті беруть участь механізми NHE3 і Rh-білків, а також сегментні особливості руху та утримання аміаку/амонію. Кислотність сечі, калій, ниркова функція, перфузія й метаболічний стан впливають на співвідношення виведення та повернення в кров. Повний баланс має порівнювати вхід і вихід азоту з усіх важливих пулів, а не лише зниження периферичного аміаку. Сечовинний і глутаміновий шляхи доповнюють один одного, але підсумковий ефект залежить від подальшого видалення азоту.
Фенілацетат кон'югує з глутаміном, утворюючи фенілацетилглутамін (PAGN), який може виводитися із сечею та нести два атоми азоту на кон'югат. Бензоат використовує гліцин для утворення гіпурату з одним атомом азоту. Ці шляхи зв'язування й виведення відрізняються від звичайного синтезу сечовини. Орнітин-фенілацетат поєднує орнітиновий компонент із фенілацетатом, пов'язуючи захват азоту з виділенням кон'югату; доступність глутаміну й ниркова екскреція залишаються важливими.
Механістичне порівняння не доводить клінічної переваги LOLA чи орнітин-фенілацетату. Rahimi та співавт. (2021) включили 231 госпіталізованого пацієнта до аналізу за призначеним лікуванням у порівнянні з плацебо. Основний час до клінічної відповіді не досяг статистичної значущості (P = 0,129). Дослідницький сигнал у підгрупі з централізовано підтвердженою гіперамоніємією не замінює основного результату. Це не було пряме порівняння з LOLA. Позначення механізму «фізіологічним» не доводить кращої ефективності чи безпеки.
Малат-аспартатний човник переносить відновні еквіваленти цитозольного NADH до мітохондріального обміну, а не цілу молекулу NADH крізь внутрішню мембрану. Цитозольна MDH1 відновлює оксалоацетат до малату, окиснюючи NADH до NAD+. Малат надходить у матрикс через систему з обмінником малату/альфа-кетоглутарату SLC25A11. Мітохондріальна MDH2 окиснює малат до оксалоацетату й утворює матриксний NADH. GOT2 перетворює оксалоацетат і глутамат на аспартат та альфа-кетоглутарат; експорт аспартату й цитозольна GOT1 завершують послідовність.
Аспартат-глутаматні переносники експортують аспартат в обмін на глутамат із протоном. Правильні відповідності: аралар/AGC1 — SLC25A12, цитрин/AGC2 — SLC25A13. Palmieri та співавт. (2001) показали кальційзалежні функції; назви не слід міняти місцями. Цитрин особливо важливий для печінкової доступності аспартату, але зовнішній аспартат не обов'язково обходить усі компартментні наслідки його дефіциту.
За ідеалізованого енергетичного обліку пара відновних еквівалентів NADH часто відповідає приблизно 2,5 ATP за певних припущень про спряження. Реальний вихід залежить від протонного витоку, дихального стану й меж розрахунку. Це не виміряна прибавка ATP від приймання LOLA. Абсолютне твердження про непроникність мембрани для NAD+ також застаріло: Luongo та співавт. (2020) встановили транспорт інтактного NAD+ через SLC25A51. Він відрізняється від човникового перенесення відновних еквівалентів NADH.
Глутамат є одним із попередників глутатіону — трипептиду з глутамату, цистеїну й гліцину. Глутаматцистеїнлігаза та глутатіонсинтетаза витрачають ATP у двох стадіях синтезу; потрібні достатні цистеїн, гліцин і ферментна регуляція. Глутатіонпероксидази використовують відновлений глутатіон при відновленні пероксидів та утворюють окиснений глутатіон. Глутатіонредуктаза регенерує його за допомогою NADPH.
ROOH позначає пероксид; ферментна специфічність визначає доступні субстрати. GPX4 і контроль ліпідних пероксидів пояснюють значення конкретного ферменту та ліпідного компартменту. Відновлення фосфоліпідних гідропероксидів GPX4 не означає універсального знищення пероксинітриту будь-яким глутатіонпероксидазним шляхом.
Пероксинітрит може нітрувати тирозин; нітрування відрізняється від S-нітрозилювання цистеїну. Активні форми кисню й азоту пошкоджують білки, ліпіди та мітохондрії в аміак-залежних експериментальних системах. Najmi та співавт. (2010) вимірювали печінковий глутатіон і маркери окисного стресу в щурів із тіоацетамідним пошкодженням. Це підтримує доклінічну антиоксидантну гіпотезу, але не заданий приріст глутатіону в мозку людини чи повне запобігання церебральному пошкодженню.
Гематоенцефалічний бар'єр і місцевий обмін розділяють амінокислотні пули мозку. Додатковий периферичний глутамат не гарантує збільшення астроцитарного глутатіону, особливо за суворо контрольованого транспорту. Сам глутамат є збуджувальним нейромедіатором. Периферичну підтримку не можна описувати як пряму необмежену доставку антиоксидантного попередника до мозку.
Астроцити переводять аміак у глутамін, який може створювати осмотичне навантаження. В експериментальній моделі «троянського коня» мітохондріальний розпад глутаміну знову утворює аміак і сприяє окисному стресу та змінам проникності. Робота Rama Rao, Jayakumar і Norenberg (2003) з культивованими астроцитами належить до цієї механістичної літератури; вона не доводить запобігання 100% подій переходу проникності під дією LOLA. Інші клітини й шляхи також беруть участь в азотному обміні мозку.
Мітохондріальний перехід проникності залежить від кальцію, окисно-відновного стану й умов усередині органели. Циклофілін D модулює сприйнятливість, а повна структурна ідентичність пори залишається предметом досліджень. Сталий перелік компонентів не є доведеною лікарською мішенню LOLA. Розподіл водного каналу AQP4, нейростероїдні сигнали за участю TSPO та перенесення триптофану й інших великих нейтральних амінокислот дають додаткові експериментальні підходи. Серотоніновий і кінуреніновий шляхи — можливі учасники, а не підтверджені показники повного усунення синдрому під дією LOLA. Ці ефекти слід вимірювати, а не виводити зі зменшення аміаку.
Мікробні уреази розщеплюють сечовину з утворенням аміаку; кишковий розпад глутаміну також постачає азот. Сечовина в кишечнику бере участь у рециклюванні, а не становить виключно остаточно знешкоджений пул. Посилення печінкового уреагенезу не доводить пригнічення бактеріальної уреази. Усі Enterobacteriaceae не можна називати облігатними анаеробами, а таксономічний склад самостійно не вимірює продукцію аміаку.
Horvath та співавт. (2022) ретроспективно порівняли 15 пацієнтів на LOLA з 15 підібраними пацієнтами. Мікробіомні й метаболомні асоціації корисні для гіпотез, проте вибір лікування й інші клінічні відмінності не дозволяють встановити причинність. Новіше одноцентрове спостережне дослідження IV фази опубліковано в Clinical Nutrition 56 (2026): включено 65 осіб, 52 завершили спостереження. Основного показника Flavonifractor не досягнуто. Romboutsia зменшилася, Enterococcus збільшився; це не доводить глобальної «нормалізації» мікробіому. Поліпшення життєвого тонусу стосувалося одного з восьми доменів якості життя. Дослідницькі м'язові результати в підгрупах і зміни діаміноксидази чи ліпополісахарид-зв'язувального білка не встановлюють відновлення кишкової проникності, зменшення інфекцій або збільшення виживаності. Проспективна робота не мала одночасної контрольної групи.
Вісь кишечник–печінка–м'язи залишається обґрунтованою дослідницькою моделлю, але кожен її зв'язок потребує власних доказів. Можливе зменшення аміачного навантаження, зміна кількості бактерії й запобігання клінічному епізоду — різні події.
Дози й тривалість нижче ідентифікують експерименти, а не пропонують схему лікування. Пероральні та внутрішньовенні препарати, клінічні ситуації й фонова терапія відрізняються. Числа збережені лише за підтримки доступної первинної публікації.
| Робота й популяція | Дизайн і досліджена експозиція | Результат і межа висновку |
|---|---|---|
| Kircheis та співавт., 1997; хронічна енцефалопатія | Рандомізоване порівняння з плацебо; повідомлено 126 пацієнтів, 114 в аналізі за протоколом | Основні показники включали постпрандіальний венозний аміак і тест з'єднання чисел. Доступні записи підтверджують контекст, але не кожен відсоток відповіді; неперевірені «82% проти 36%» не повторюються. |
| Stauch та співавт., 1998; стабільна явна/субклінічна форма | 66 пацієнтів; перорально 18 г/добу 14 днів проти плацебо | Поліпшилися аміак, тест з'єднання чисел і клінічні індекси. Відсутність зареєстрованих небажаних явищ у малій короткій роботі не доводить універсальної тривалої безпеки. |
| Poo та співавт., 2006; хронічна форма | 20 пацієнтів; LOLA проти лактулози два тижні | В обох групах аміак знизився відносно початкового. Малі внутрішньогрупові зміни не доводять загальної переваги над лактулозою; порівняння не було з плацебо. |
| Alvares-da-Silva та співавт., 2014; мінімальна форма | Включено 64, мінімальна форма у 63; перорально 15 г/добу 60 днів | Окремі внутрішньогрупові тести змінювалися, але загальне міжгрупове порівняння психометрії/CFF та якості життя не було позитивним. Сигнал явної енцефалопатії за шість місяців (5% проти 37,9%; P = 0,016) — інший результат. |
| Sidhu та співавт., 2018; явна форма при цирозі | 193 пацієнти; внутрішньовенно 30 г/добу п'ять днів проти плацебо; обидві групи отримували лактулозу й цефтріаксон | Основний ступінь порушення свідомості на п'ятий день суттєво не відрізнявся. Ранні дні й час відновлення сприяли LOLA: 1,92 ± 0,93 проти 2,50 ± 1,03 доби (P = 0,002). Зменшилися аміак і госпіталізація. Це не однозначно позитивний основний результат. |
| Jain та співавт., 2022; III–IV ступінь при цирозі | 140 пацієнтів; додатково внутрішньовенно 30 г за 24 години п'ять днів проти плацебо; обидві групи отримували лактулозу й рифаксимін | Поліпшення ступеня на п'ятий день: 92,5% проти 66% (P < 0,001); відновлення: 2,70 ± 0,46 проти 3,00 ± 0,87 доби. Смертність за 28 днів: 16,4% проти 41,8%. Значний сигнал окремої роботи заслуговує на увагу, але не гарантує виживання в усіх ситуаціях. |
| Varakanahalli та співавт., 2018; вторинна профілактика | Включено 150; перорально 18 г/добу шість місяців проти плацебо | Рецидиви: 9/73 (12,3%) проти 20/72 (27,7%); відношення інтенсивностей ризику 0,389, 95% ДІ 0,174–0,870. Смертність суттєво не відрізнялася: 6,8% проти 13,8%, P = 0,18. Компаратор — плацебо, не лактулоза. |
| Bai та співавт., 2014; після TIPS | 40 рандомізованих пацієнтів; сім днів | Венозний аміак поліпшився, але явна енцефалопатія виникла в 1 проти 3 пацієнтів (P = 0,331). Клінічну профілактику після TIPS не доведено. |
| Acharya та співавт., 2009; гостра печінкова недостатність | 201 пацієнт; внутрішньовенно 30 г/добу три дні проти плацебо | Переваг за аміаком чи виживаністю не встановлено. Смертність: 42,4% на LOLA проти 33,3% на плацебо; RR 1,27, 95% ДІ 0,88–1,85. Інтервал і P = 0,204 також не встановлюють статистично значущої шкоди. |
Відмінності Sidhu і Jain змістовні: популяції, фонове лікування та час оцінки різні. У Sidhu не було поєднання лактулози з рифаксиміном, використаного Jain. Поліпшення перших днів відрізняється від наперед визначеного порівняння на п'ятий день. Незначущий результат не доводить однаковості втручань, але не дозволяє оголосити основний показник успішним.
У роботі щодо рецидивів просте порівняння спостережених часток дає абсолютну різницю приблизно 15,4 відсоткового пункту. Обернене значення — близько 6,5, тобто приблизно сім пацієнтів, пролікованих за досліджені шість місяців на один відвернений рецидив, якщо ефект причинний і переносимий. Цей описовий розрахунок не тотожний часовому відношенню ризиків і не переноситься на будь-який початковий ризик чи фонове лікування:
ARR означає абсолютне зниження ризику, NNT — відповідну кількість пацієнтів за вказаних припущень. Відмінності спостереження, цензурування й аналізовані популяції обмежують оцінку за простими частками.
Кокранівський огляд Goh та співавт. (2018) виявив 36 рандомізованих досліджень; 29 надали дані про результати для 1891 учасника. Можливі об'єднані переваги супроводжувалися дуже низькою визначеністю й не підтверджувалися стійко в аналізах із наголосом на меншому ризику упереджень. Новіші роботи додають інформацію, але не усувають ретроспективно недоліків старих. Метааналізи відрізняються набором робіт, шляхами введення, показниками й методами; сприятлива об'єднана оцінка не замінює критичного розгляду цих відмінностей.
Настанова AASLD/EASL 2014 року розглядала внутрішньовенну LOLA як альтернативу чи доповнення при недостатній відповіді на звичайне лікування. Її історична оцінка пероральної форми передує новим пероральним дослідженням і не означає відсутності подальших даних. EASL 2022 і ACG 2026 розміщують лікування в ширшому контексті: встановити синдром, виявити провокувальні причини, розрізнити явні епізоди, рецидиви й приховану форму. Офіційний стислий документ ACG 2026 не підтримує рутинного титрування за аміаком або лікування всіх прихованих випадків лише для профілактики явної енцефалопатії.
Лактулоза й рифаксимін впливають на різні ланки та мають установлені клінічні ролі. Дослідження додаткової LOLA на їхньому тлі відповідає на питання про додавання в певній популяції, а не можливість заміни. Воно не встановлює універсальної трикомпонентної біохімічної синергії. Альбумін застосовують за окремими показаннями чи досліджують у суміжних ситуаціях; це не підстава для автоматичного протоколу LOLA–лактулоза–рифаксимін–альбумін. Харчування та збереження м'язів важливі; рутинне обмеження білка може погіршити м'язовий резерв і не рекомендується сучасними настановами.
Дози й строки таблиці не є вказівками на навантажувальну дозу, розведення інфузії, обов'язкові 20–40 г/добу для всіх або цільовий аміак нижче 50 мкмоль/л. Застосування визначають препарат, шлях, тяжкість, протипоказання й місцева інструкція. Нова сплутаність або зниження свідомості потребують оцінки причини й тяжкості, а не вибору добавки за біохімічною схемою.
Основна інформація виробника визначає тяжку ниркову недостатність як протипоказання та використовує сироватковий креатинін понад 3 мг/100 мл як орієнтир для препарату. Це критерій конкретної інструкції, а не універсальна межа для всіх країн, форм і пацієнтів. За низької м'язової маси креатинін не повністю відображає функцію нирок. Гіперчутливість до препарату також протипоказана.
Шлунково-кишкові небажані явища й переносимість залежать від шляху введення. Внутрішньовенне лікування має обмеження введення, яких не можна відтворювати за таблицею досліджень. Для вагітності, грудного вигодовування й дитячого віку дані обмежені; відсутність виразного сигналу в іншій популяції не доводить безпеки. Амінокислотна природа не встановлює відсутності взаємодій, повної свободи від CYP-пов'язаних ефектів чи універсальної частоти небажаних явищ 1–3%.
Ниркова дисфункція змінює кінцеву долю азоту й оцінку глутамінових шляхів. Гіперамоніємія при спадковому метаболічному дефекті відрізняється від енцефалопатії при цирозі; аналогія може приховати конкретну порушену ланку. Біохімічне пояснення не встановлює зареєстрованого показання для всіх дефектів циклу чи офіційного протипоказання для всіх таких хвороб без відповідної інструкції.
У старих роботах використовуються NAFLD і NASH; сучасна термінологія включає метаболічно асоційовану стеатотичну хворобу печінки (MASLD) та стеатогепатит (MASH). Зміна назв не усуває відмінностей визначення популяцій. Поліпшення печінкових ферментів, маркерів окисного стресу чи правдоподібна глутатіонова реакція не доводять регресу фіброзу, поліпшення портальної мікроциркуляції або запобігання смерті від печінкової хвороби.
Pichon та співавт. (2022) досліджували мишей foz/foz із мутацією Alms1 на високожировому харчуванні. Раннє втручання й лікування вже сформованої хвороби — різні умови. М'язові та міостеатозні зміни при ранньому лікуванні не супроводжувалися поліпшенням обміну аміаку чи хвороби печінки. Щільність і площа м'язів за мікро-КТ не дорівнюють силі або функціональному відновленню людини. Дослід не доводить регресу людського фіброзу MASH чи вилікування циротичної саркопенії. Дослідницькі м'язові результати неконтрольованої людської мікробіомної роботи мають інші обмеження.
Припущення, що менше аміачне навантаження може допомогти м'язовому обміну, біологічно обґрунтоване. Клінічне підтвердження потребує маси, сили, працездатності й важливої для пацієнта функції з урахуванням харчування та тяжкості хвороби. Зменшення аміаку не замінює цих результатів.
Гостра печінкова недостатність може швидко прогресувати. Набряк мозку, поліорганна дисфункція й потреба трансплантації відрізняють її від стабільного хронічного цирозу. Rose та співавт. (1999) повідомили про аміак мозку та набряк у щурячій моделі. Людське рандомізоване дослідження Acharya та співавт. (2009) не підтвердило переваг за аміаком чи виживаністю. Тваринний механізм не скасовує клінічного результату й не виправдовує затримки етіологічного лікування, інтенсивного спостереження чи оцінки трансплантації.
Після трансплантації клінічне питання визначають функція печінки й нирок, імуносупресія та причина гіперамоніємії. Періопераційний азотний стрес не доводить поліпшення трансплантаційних результатів під дією LOLA. Для тверджень про доведену нейропротекцію чи виживаність потрібні прямі дані, яких розглянуті доступні роботи не надають.
Підготовлено 8 жовтня 2026 року. Це наукове пояснення з цільовими перевірками первинних біохімічних робіт, рандомізованих досліджень, офіційних настанов та інформації про препарат. Матеріал не є систематичним оглядом, новою оцінкою GRADE, рецензуванням чи клінічною валідацією. Результати, компаратори, роки й ідентифікатори перевірялися за доступними даними; негативні та суперечливі результати збережено. Деякі повні тексти були недоступні, тому використано метадані, анотації чи доступні фрагменти; точні недоступні методи не перевірено. Експериментальні механізми відокремлено від лікувальних результатів у людини, а досліджені експозиції — від інструкцій призначення.
Прямого зв’язування чи орнітинової алостерії CPS1 людини тут не підтверджено. Обов’язковий активатор — NAG, а LOLA постачає субстрати пов’язаним шляхам.
Ні. Глутамін тимчасово переносить азот, а розпад може знову виділити аміак. Слід відрізняти ниркове виведення від повернення у кров.
Ні. При цирозі діагноз клінічний і залежить від контексту. Підвищення не визначає наявності чи ступеня; нормальне значення потребує переглянути діагноз.
Мінімальну виявляють відповідними тестами. Прихована включає її та I ступінь; явна — II–IV ступені West Haven.
Ні. Одна робота при тяжкій циротичній енцефалопатії дала сигнал смертності, але при гострій недостатності переваги не встановлено.
Наведені дослідження додаткового лікування не підтверджують заміни. Важливі фонові ліки, причини погіршення й клінічна ситуація.
Ні. Вона описує досліджену експозицію. Призначення залежить від препарату, шляху, клінічної оцінки й протипоказань.
Наведені мишачі й дослідницькі спостережні результати не доводять регресу людського фіброзу чи універсального відновлення м’язової функції.
Виробник визначає тяжку ниркову недостатність як протипоказання. Важливі кінцева доля азоту й інструкція конкретного препарату.
Ні. Це наукове пояснення з цільовими первинними перевірками та явними обмеженнями доступу й доказів.