L-орнитин-L-аспартат (LOLA): несепнәр циклі, глутамин және гипераммониемия
LOLA субстраттары несепнәр циклін, бауыр зоналылығын және бұлшықет глутаминін қалай байланыстырады; энцефалопатия, қайталану, жедел жеткіліксіздік пен қауіпсіздік сынақтары нені көрсетеді.
L-орнитин-L-аспартат азот алмасуына қатысатын екі аминқышқылын береді. Орнитин несепнәр циклінде қайта түзіледі; аспартат несепнәрдің екінші азот атомын беріп, трансаминденуді митохондриялық тотығу-тотықсыздану алмасуымен байланыстырады. Қажетті ферменттер, тасымалдағыштар және қызмет атқаратын тіндер сақталса, бұл субстраттардың қолжетімділігі аммиакты өңдеуге көмектесуі мүмкін. Алайда бұл LOLA адамның карбамоилфосфатсинтетаза-1 ферментімен (CPS1) тікелей байланысып, оны белсендіретінін дәлелдемейді. CPS1-дің міндетті белсендіргіші — N-ацетилглутамат (NAG); оны N-ацетилглутаматсинтаза (NAGS) түзеді, ал аргинин сүтқоректілердің NAGS-ын белсендіреді. Субстрат беру бауыр тінінің жоғалуын, портожүйелік шунттарды немесе циклдің тұқым қуалайтын ақауын өздігінен өтемейді (Bachmann және әріптестері, 1982; Caldovic және әріптестері, 2006; de Cima және әріптестері, 2015).
Клиникалық сұрақтар да бөлек қаралады. Аммиактың төмендеуі, бауыр энцефалопатиясынан жылдамырақ қалпына келу, қайталанудың алдын алу және өмір сүрудің ұзаруы — әртүрлі нәтижелер. Цирроз кезіндегі сынақтар, соның ішінде ауыр энцефалопатияның негізгі еміне LOLA қосу жөніндегі зерттеу, пайдалы белгілер берді. Бірақ әсер популяцияға, салыстыруға және бағаланған нәтижеге тәуелді. Жедел бауыр жеткіліксіздігіндегі рандомизацияланған сынақ аммиак немесе өмір сүру бойынша артықшылықты анықтамады. Ықтимал биохимиялық механизм мен жеке оң сынақ әмбебап емдік әсерді дәлелдемейді.
Химиялық түрі, сіңуі және экспозициясы
LOLA — L-орнитин мен L-аспарагин қышқылының 1:1 тұзы; оларды коваленттік байланыспен қосатын пептид емес. Екеуі де табиғи L-конфигурацияда, бұл альфа-көміртектің S-конфигурациясына сәйкес келеді. Сусыз эквимолярлық қосылыстың құрамы:
Стандартты атомдық массалар бойынша компоненттердің молярлық массалары шамамен 132,16 және 133,10 г/моль, қосындысы 265,26 г/моль. Көрсеткі тұздың құрамын білдіреді; су бөлінетін конденсацияны көрсетпейді. Ерітіндіде иондар диссоциацияланады, протондану pH-қа қарай өзгереді. Физиологиялық pH-та орнитин қосымша амин тобының арқасында негізінен катион, аспартат екінші карбоксил тобының арқасында анион болады. Стереохимия ферменттер мен тасымалдағыштардың тануына әсер етеді, бірақ барлық тасымалдағыш кез келген D-изомерді мүлде өткізбейді деуге негіз бермейді.
Ішуге арналған препарат ерігеннен кейін аминқышқылдар ішектің тасымалдау жүйелеріне түседі. Катиондық аминқышқылдарға бірнеше тұқымдас, соның ішінде y+ жүйелері қатысады; қышқыл аминқышқылдар үшін натриймен байланысқан EAAT, оның ішінде EAAT3/SLC1A1 маңызды. CAT1/SLC7A1 орнитиннің бүкіл апикалдық сіңуін сипаттамайды. Эпителий полярлығы, басқа тасымалдағыштар, тағамдағы бәсекелес субстраттар мен градиенттер ескеріледі. Геннің бар болуы сол жолға тиесілі сіңудің нақты үлесін анықтамайды.
Парентералдық енгізу ішектегі сіңуді айналып өтеді; ішке қабылдау сіңуді және алғашқы өту метаболизмін қамтиды. Бірдей аминқышқылдар берілгендіктен бұл жолдар өзара алмастырылмайды. Плазмалық концентрация сіңумен қатар таралу мен метаболизмді көрсетеді. Ерте плазмалық шың субстраттың митохондрияға жеткізілуін немесе несепнәр циклінің ағынын өлшемейді.
Фармакокинетикалық әдебиетте шағын еріктілер зерттеулері мен бұрынғы тәжірибелерге шолулар бар. 2019 жылғы шолу он сау қатысушыдағы ішке қабылдау тәжірибесін және экспозицияның елеулі өзгергіштігін сипаттайды. Ол әмбебап 85–90% биожетімділікті, бір таралу көлемін немесе асқынған цирроздағы тұрақты жартылай шығарылу кезеңін анықтамайды. Kowalski мен Bieniecki-дің 2006 жылғы дәрілік түрлер жөніндегі қолжетімді жазбасы фармакокинетикалық салыстыруды растайды, бірақ бағаларды кез келген препарат пен адамға көшіруге қажетті әдістердің бәрін ашпайды. Бауыр мен бүйрек қызметі, енгізу жолы және бастапқы аминқышқыл қорлары экспозицияны өзгертеді. Сондықтан бұл бағалар дозалау алгоритмі ретінде емес, нақты жағдайдағы бақылаулар ретінде түсіндіріледі.
Аммиак, аммоний және зертханалық көрсеткіштің мағынасы
Клиникалық және зертханалық қолданыста «аммиак» көбіне аммиак пен аммонийдің қосынды пулын білдіреді. Екі түрдің тепе-теңдігі:
Мысал ретінде pKa 9,25 алсақ, зарядсыз түрдің үлесі:
pH 7,40 кезінде шамамен 0,014, яғни 1,4%. Бұл мән pH, температура және ерітінді құрамына тәуелді. Ол энцефалопатияның диагностикалық шегі емес, қышқыл-сілтілік есеп. NH3 мембранадан салыстырмалы оңай өтеді, бірақ NH4+ каналдар мен тасымалдағыштар арқылы да қозғалады; тіндік экспозицияны тек NH3 пассивті диффузиясына тіреуге болмайды.
Азот бұл пулға ішек микробтарының алмасуынан, энтероциттердегі глутамин ыдырауынан, аминқышқыл катаболизмінен және басқа реакциялардан келеді. Бауыр елеулі бөлігін несепнәрге немесе глутаминге айналдырады. Портожүйелік шунттар қанды гепатоциттерді айналып өткізеді, ал функционалдық бауыр массасының азаюы метаболизм қуатын төмендетеді. Инфекция, асқазан-ішек қан кетуі, іш қату, сусыздану, электролит бұзылыстары мен тыныштандыратын дәрілер энцефалопатияны ауырлатуы мүмкін; бір аммиак концентрациясы олардың бәрін түсіндірмейді.
Цирроздағы бауыр энцефалопатиясы — жағдайды және ойлау бұзылысының өзге себептерін ескеріп бағаланатын клиникалық синдром. Жоғары аммиак оның бар-жоғын немесе дәрежесін жеке өзі анықтамайды; үлгіні алу мен өңдеу де нәтижеге әсер етеді. Қалыпты мән диагнозды қайта қарауды қажет етеді. EASL 2022 мен ACG 2026 ресми қысқаша құжаты клиникалық бағалауды аммиакқа қарап емді тұрақты өзгертуден ажыратады. Бұл аммиактың биологиялық маңызын жоймайды. Жедел бауыр жеткіліксіздігіндегі ми ісінуі мен болжамға байланысы басқа клиникалық жағдайға жатады және әмбебап амбулаториялық нысаналы концентрацияны белгілемейді.
Минималдық энцефалопатия айқын клиникалық белгілер болмағанда тиісті тесттермен анықталады. Жасырын түр минималдық түрді және West Haven I дәрежесін; айқын түр II–IV дәрежелерін қамтиды. PHES бес қағаз-қалам тапсырмасын біріктіреді: сандарды қосу A және B, цифрлық символдар, нүктелерді ретімен белгілеу және сызық жүргізу. Жас, білім және тілге сәйкес нормалар керек. Жыпылықтаудың критикалық бірігу жиілігі (CFF) белгілі сынақ жағдайындағы қабылдау шегін көрсетеді, астроцит ісінуін тікелей өлшемейді. Бір тесттің, аммиактың немесе өмір сапасының бір саласының жақсаруы айқын эпизодтардың алдын алу не өмір сүрудің ұзаруымен тең емес.
Бауыр зоналылығы: бірінен кейін бірі жұмыс істейтін жүйелер
Қан синусоидтармен порталдық жақтан орталық венаға қарай жүреді. Несепнәр циклі негізінен перипорталдық гепатоциттерде белсенді; глутаминсинтетаза қан ағынының төменгі жағындағы тар перицентралдық жасушалар тобында жоғары экспрессияланады. Кең уреагендік жүйе кіретін азотты өңдейді, одан кейін жоғары аффинді глутамин түзетін жүйе қалдық аммиакты ұстайды. Бұлар өтпейтін шекаралар немесе адам жасушаларының тұрақты пайызы емес, физиологиялық бағдарламалар.
Перицентралдық бағдарлама жергілікті сигналдарға, соның ішінде Wnt/бета-катенинге, оттек пен субстрат градиенттеріне байланысты. Ауру оларды өзгерте алады. Hakvoort және әріптестерінің (2017) тышқандардағы генді өшіру және таңбалау тәжірибелері глутаминсинтетазаның маңызын көрсетеді. Олар адамдарда дәл 70–80% несепнәрге, қалғаны глутаминге өтеді деген әмбебап үлесті анықтамайды. Жасуша массасы, ATP немесе қанға қолжетімділік азайса, фермент аффиндігі жеткілікті мүшелік клиренске кепіл болмайды.
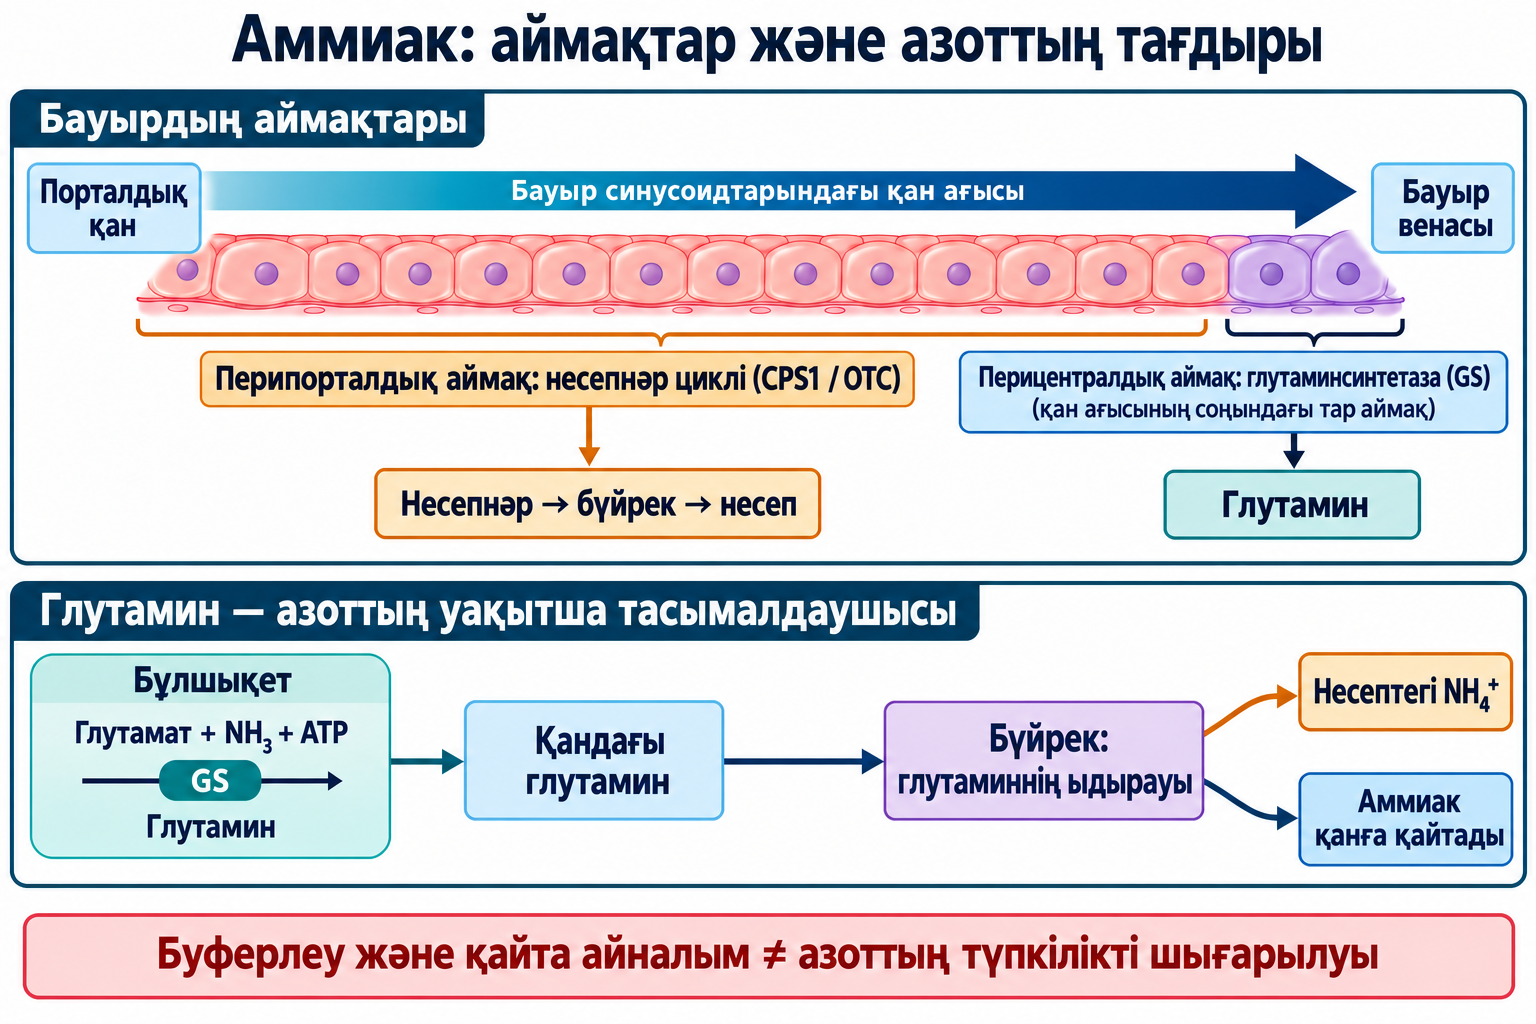
Сурет — қызметтік сұлба; жасушалардың ені нақты анатомиялық үлестерді білдірмейді. Несепнәр бүйрек арқылы зәрмен шығарылуы мүмкін, бірақ ішекте қайта айналуы да бар. Глутамин азотты тасымалдау және биосинтез үшін уақытша жинақтайды; кейінгі ыдырау аммиакты қайта босата алады. Сондықтан оның түзілуін азоттың кейінгі тағдырымен бірге бағалау қажет.
CPS1, NAG және орнитиннің митохондрияға жеткізілуі
NAGS глутамат пен ацетил-КоА-дан NAG түзеді. Bachmann және әріптестері адамның NAGS-ын 1982 жылы сипаттады; Caldovic және әріптестері (2006) сүтқоректілердің рекомбинанттық ферменттерін аргинин белсендіретінін көрсетті. Қарапайым реакция:
NAG CPS1-мен байланысып, тиімді катализге қажетті конформацияны қамтамасыз етеді; ол несепнәрдің азот доноры болмайды. Адамның CPS1-і бос аммиак, бикарбонат және ATP-ға тәуелді екі фосфорлануды пайдаланып карбамоилфосфат түзеді. Екі фосфорлану орталығы мен аралық өнімдердің ішкі тасымалы біріккен механизмді құрайды. Кейбір бактериялық жүйелерден айырмашылығы, адамның CPS1-ін орнитин реттейді немесе ол глутаминді тікелей пайдаланады деуге болмайды. de Cima және әріптестерінің (2015) құрылымдық жұмысы NAG-қа тәуелді ауыстырып-қосқышты қолдайды. Кристаллдың асимметриялық бірлігіндегі димер міндетті функционалдық димердің барын дәлелдемейді.
Протондануды толық есептемей негізгі субстраттармен көрсету:
Келесі реакция үшін орнитин матрикске жетуі керек. SLC25A15 кодтайтын ORNT1 орнитин мен цитруллиннің протонмен байланысқан алмасуына қатысады. Fiermonte және әріптестерінің (2003) адам тасымалдағыштарымен тәжірибелері қызметті анықтайды; олар реттелмейтін диффузияны немесе цирроздағы тұрақты тасымал жылдамдығын көрсетпейді. Заряд балансы мен алмасатын субстраттар маңызды: бейтарап молекуланы зарядталған молекулаға қосымша байланыссыз ауыстыру ретінде түсіндіру жеткіліксіз.
LOLA орнитин мен аспартат пулдарын толықтырып, байланысты реакцияларды жанама қолдауы мүмкін. Бұл аммиакты азайтуды зерттеуге негіз, бірақ LOLA-ның CPS1-мен тікелей байланысуын, орнитиннің адамның CPS1-індегі аллостериялық әсерін немесе әр пациентте NAG міндетті түзілуін дәлелдемейді. NAGS, CPS1, OTC және ORNT1 тапшылықтары — бөлек аурулар. Карглум қышқылы сияқты NAG аналогтарының фармакологиясы да басқа; LOLA барлық ақауды айналып өтеді деп санауға болмайды.
Несепнәр циклі: компартменттер, азот көздері және энергия
Цикл митохондрия мембранасын кесіп өтеді. CPS1 мен орнитинтранскарбамилаза (OTC) матриксте; аргининосукцинатсинтетаза (ASS1), аргининосукцинатлиаза (ASL) және аргиназа-1 (ARG1) қалыпты бауыр циклін цитозольде аяқтайды. Жасушадан тыс аспартат беру оны митохондриялық ферменттік кешенге жеткізумен бірдей емес.
| Кезең | Негізгі компартмент | Субстраттар мен өнімдер | Маңызы |
|---|---|---|---|
| CPS1 | Митохондрия матриксі | Аммиак + бикарбонат + 2 ATP → карбамоилфосфат | Бірінші азотты ұстайды; NAG қажет |
| OTC | Митохондрия матриксі | Карбамоилфосфат + орнитин → цитруллин + фосфат | Цитруллин кейін сыртқа шығарылады |
| ASS1 | Цитозоль | Цитруллин + аспартат + ATP → аргининосукцинат + AMP + пирофосфат | Аспартат екінші азотты береді |
| ASL | Цитозоль | Аргининосукцинат → аргинин + фумарат | Фумарат/аспартат желісімен байланыс |
| ARG1 | Цитозоль | Аргинин + су → несепнәр + орнитин | Несепнәр түзіліп, орнитин қайта жаңарады |
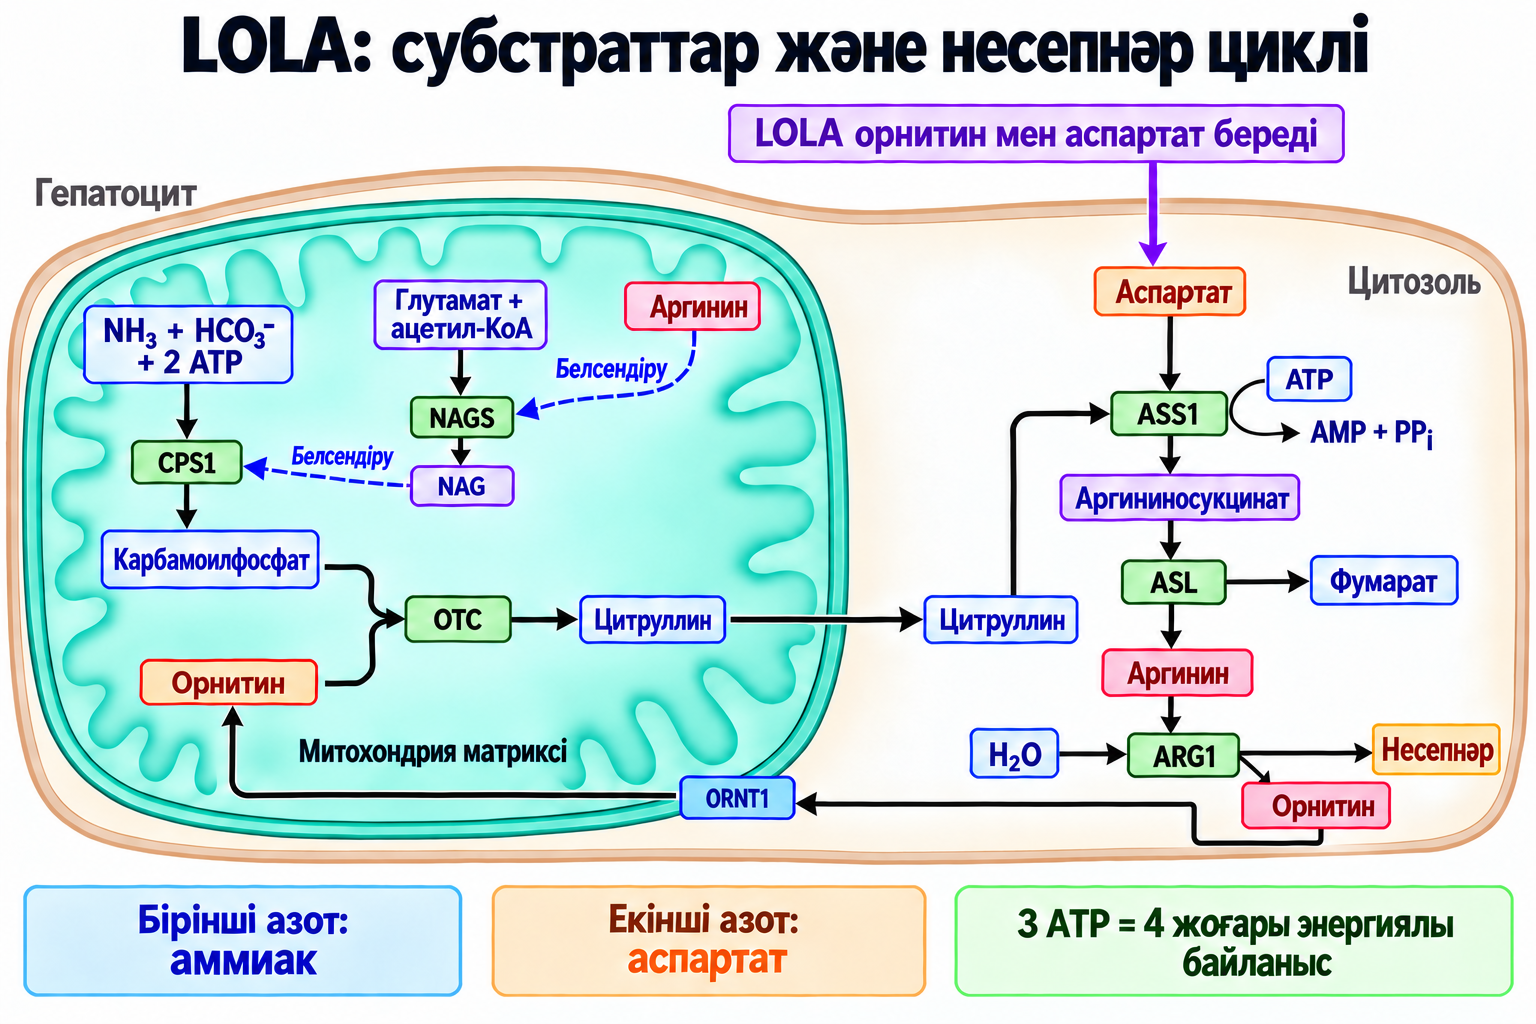
CPS1-де екі ATP ADP-ға, ASS1-де бір ATP AMP-ға айналады. Үш ATP молекуласы жұмсалады; ATP→AMP және пирофосфат гидролизін есептегенде жоғары энергиялы фосфат байланыстарының төрт эквиваленті шығындалады. Кесте протондық күйді қысқаша береді, толық иондық теңестірілген теңдеу емес. Несепнәр көміртегі бикарбонаттан, бір азоты аммиактан, екіншісі аспартаттан келеді. Орнитин циклде қайта жаңаратын тасымалдаушы қызметін атқарады; ол әр жаңа несепнәр молекуласына екі азоттың бірін бермейді.
Аспартаттың ASS1 реакциясындағы орны:
Пирофосфаттың ыдырауы биосинтез бағытын қолдайды. ASL босатқан фумараттан малат пен оксалоацетат түзілуі мүмкін, ал трансаминдену аспартатты қайта береді. Аспартат–аргининосукцинат байланысы көміртек пен азот алмасуын үйлестіреді, бірақ субстрат қосқаннан кейін барлық ағын бірдей артатынын білдірмейді.
ARG1 аргининді гидролиздейтін екі ядролы марганец орталығын қамтиды. Металдың құрылымдық қызметі марганецті негізсіз қосуға нұсқау емес. Орнитин орнитиндекарбоксилаза арқылы путресцинге және өсу мен жасушалық реттеуге қатысатын өзге полиаминдерге де өтеді. Бәсекелес бағыттар пулды бөлудің маңызын көрсетеді. Полиамин биологиясы LOLA цирроздық тінді қалпына келтіреді, фиброзды кері қайтарады немесе регенерацияны таңдап жылдамдатады дегенді дәлелдемейді. Субстрат ATP-ны, жоқ фермент белсенділігін немесе жеткілікті перфузияны алмастырмайды.
Трансаминдену және глутамат пулы
Орнитинаминотрансфераза (OAT) — пиридоксальфосфатқа тәуелді митохондриялық фермент. Ол орнитиннің дельта-амин тобын альфа-кетоглутаратқа беріп, глутамат пен глутамат-5-жартылай альдегидін түзеді. Жартылай альдегид пирролин-5-карбоксилатпен (P5C) өзара айналады; ALDH4A1 арқылы әрі қарай тотығуы глутамат бере алады. Адам OAT-ының 1998 жылғы құрылымдық жұмысы катализ негізін қолдайды.
Бірінші глутаматтың көміртек қаңқасы альфа-кетоглутараттан келеді, ал жартылай альдегид/P5C орнитин қаңқасын сақтайды. Соңғысы глутаматқа айналса, байланысты жол екі молекула береді, бірақ екеуінің көміртегі бір орнитиннен шықпайды. Қосымша альфа-кетоглутаратты елемеу көміртек балансын бұзады. OAT қайтымдылығы мен пролин алмасуына байланысы оны шексіз біржақты глутамат генераторы деуге жол бермейді.
Аспартатаминотрансферазалар аспартат пен глутамат пулдарын байланыстырады:
GOT1 көбіне цитозольде, GOT2 митохондрияда жұмыс істейді. Ағын жергілікті концентрацияларға, тотығу-тотықсыздану күйіне және өзге реакцияларға тәуелді. Глутамат түзілуі LOLA субстраттарын глутамин синтезімен байланыстырады, бірақ нәтиже альфа-кетоглутарат, энергия және тасымалдағыштарға да тәуелді.
Глутаминсинтетаза және бұлшықеттік өтем
GLUL кодтайтын глутаминсинтетаза ATP жұмсап, аммиакты глутаматқа қосады:
Катализге белсендірілген гамма-глутамилфосфат аралық өнімі және субстраттардың металға тәуелді орналасуы кіреді. Аммиак азоты глутаминнің амидтік азотына айналады; глутамат бастапқы альфа-аминдік азотын сақтайды. Бауырдан тыс реакция маңызды буфер, бірақ ATP мен глутаматты қажет етеді, ал өнім кейін тасымалдануы немесе пайдаланылуы тиіс.
Бауыр қуаты төмендегенде қаңқа бұлшықеті аммиакты қосатын маңызды орынға айналады. Сондықтан бұлшықет массасы қор мүмкіндігін анықтайды. Тармақталған тізбекті аминқышқылдар трансаминденгенде амин топтары альфа-кетоглутаратқа ауысып, глутамат түзіледі. Бұл BCAA және тармақталған кетоқышқылдар алмасуымен байланысты: катаболизм бағыты мен реттелуі маңызды, кез келген аминқышқыл қосу инсулин сезімталдығын немесе азот шығарылуын әрдайым жақсартпайды.
Альфа-кетоглутарат көміртегінің үшкарбон қышқылдары циклі желісінен шығуы — катаплероз. «Анаплероздық сарқылу» деген атау дұрыс емес, өйткені анаплероз толықтыруды білдіреді. Бұлшықеттегі глутамин синтезі көміртек қаңқасы мен энергияны талап етеді, әсіресе ауру және жеткіліксіз тамақтану кезінде. Гипераммониемия анаболизм сигналдары мен протеостазға да әсер етеді. Qiu және әріптестерінің (2013) жасушалық және тышқан тәжірибелері аммиакты NF-kappaB/миостатин сигналымен байланыстырып, бұлшықет жоғалу механизмін ұсынады. Бұл LOLA циррозы бар әр адамның күшін, бұлшықет ауданын және дене қызметін қалпына келтіреді дегенді дәлелдемейді.
Глутаминнің тіндерден шығуына бірнеше аминқышқыл тасымалдағышы қатысады. SNAT2 сияқты сіңіру тасымалдағышын жалғыз экспорт жолы деп атауға болмайды. Қандағы глутамин өзгерісі қай орган оны өндіргенін анықтамайды және қолайлы жалпы азот балансын дәлелдемейді. Бұлшықеттік буферлеу, тамақтану, ақуыз айналымы және нақты бүйректік азот шығыны ажыратылуы керек.
Бүйрек: глутамин аммиакты қайта босатуы мүмкін
Қандағы глутамин нуклеотид синтезіне, қышқыл-сілтілік бейімделуге, иммундық және ішек алмасуына, азоттың қайта бөлінуіне қатысады. Бүйректе глутаминаза амидтік азотты аммиак ретінде босатады; глутаматдегидрогеназа глутаматтан қосымша азотты босатып, альфа-кетоглутарат түзеді. Бүйректік аммониогенез қышқыл-сілтілік реттеуде ерекше маңызды.
Аммиактың бір бөлігі түтікше сұйықтығына бөлініп, аммоний ретінде шығарылады; бір бөлігі бүйрек венасына түседі. van de Poll және әріптестерінің (2008) адамдағы мүшелік баланс жұмысы бүйрек жүйелік қанға аммиак бере алатынын көрсетеді. Сондықтан «LOLA глутамин түзеді, демек оның бүкіл азоты бүйрекпен қайтымсыз жойылады» деген қорытынды дұрыс емес.
Түтікшелік тасымалға NHE3 пен Rh ақуыздарына байланысты механизмдер, аммиак/аммонийдің сегментке тән қозғалысы мен ұсталып қалуы кіреді. Зәр қышқылдығы, калий, бүйрек қызметі, перфузия және метаболизм күйі шығарылу мен қанға қайту арақатынасын өзгертеді. Толық баланс тек перифериялық аммиак төмендеуін емес, барлық маңызды пулға кіретін және шығатын азотты салыстырады. Несепнәр мен глутамин жолдары толықтырушылық қызмет атқарады, бірақ жалпы пайда кейінгі шығарылуға тәуелді.
Азотты байланыстыратын дәрілердің фармакологиясы бөлек
Фенилацетат глутаминмен конъюгацияланып, фенилацетилглутамин (PAGN) түзеді; ол зәрмен шығарылғанда бір конъюгатқа екі азот атомын алып кетеді. Бензоат глициннен бір азот атомын таситын гиппурат түзеді. Бұл жолдар аммиактың қалыпты несепнәрге айналуынан ерекшеленеді. Орнитин-фенилацетат орнитинді фенилацетатпен біріктіріп, азотты ұстауды конъюгат шығарылуымен байланыстырады; глутамин қолжетімділігі мен бүйректік экскреция маңызды болып қалады.
Механизм айырмасы LOLA немесе орнитин-фенилацетаттың клиникалық артықшылығын анықтамайды. Rahimi және әріптестерінің (2021) зерттеуінде плацебомен салыстырылған 231 аурухана пациенті тағайындалған ем бойынша талданды. Клиникалық жауапқа дейінгі уақыттың негізгі нәтижесі статистикалық маңызға жетпеді (P = 0,129). Орталықта расталған гипераммониемиясы бар ішкі топтағы зерттеушілік белгі негізгі нәтижені алмастырмайды. Бұл LOLA-мен тікелей салыстыру емес. Механизмді «физиологиялық» деу тиімділік пен қауіпсіздікті дәлелдемейді.
Аспартат және малат-аспартаттық тасымал жүйесі
Малат-аспартаттық жүйе цитозольдік NADH-тың тотықсыздандырғыш эквиваленттерін митохондриялық алмасуға береді; NADH молекуласының өзі ішкі мембранадан өтпейді. Цитозольдік MDH1 оксалоацетатты малатқа тотықсыздандырып, NADH-ты NAD+-қа тотықтырады. Малат матрикске малат/альфа-кетоглутарат алмастырғышы SLC25A11 қамтылған жүйемен түседі. Митохондриялық MDH2 малатты оксалоацетатқа тотықтырып, матриксте NADH түзеді. GOT2 оксалоацетат пен глутаматтан аспартат және альфа-кетоглутарат береді; аспартат экспорты мен цитозольдік GOT1 циклді аяқтайды.
Аспартат/глутамат тасымалдағыштары аспартатты глутамат пен протонға айырбастап сыртқа шығарады. Аралар/AGC1 — SLC25A12, цитрин/AGC2 — SLC25A13; атауларды ауыстыруға болмайды. Palmieri және әріптестері (2001) кальцийге жауап беретін тасымал қызметін көрсетті. Цитрин бауырдағы аспартат үшін маңызды, бірақ сырттан берілген аспартат оның тапшылығының барлық компартменттік салдарын айналып өтпейді.
Идеалданған энергетикалық есепте NADH эквиваленттерінің бір жұбы белгілі байланысу жорамалдарымен шамамен 2,5 ATP-ға сәйкестендіріледі. Нақты шығым протон ағып кетуіне, тыныс күйіне және есептің шекараларына тәуелді. Бұл LOLA қабылдағаннан кейін өлшенген ATP өсімі емес. Ішкі мембрана NAD+-ты мүлде өткізбейді деген ескі тұжырым да түзетілуі керек: Luongo және әріптестері (2020) SLC25A51 бүтін NAD+-ты тасымалдайтынын анықтады. NAD+ импорты мен NADH эквиваленттерінің тасымалы — бөлек үдерістер.
Глутатион, тотығу стрессі және ми
Глутамат — глутамат, цистеин және глициннен тұратын глутатион трипептидінің бір ізашары. Глутаматцистеинлигаза мен глутатионсинтетаза екі синтез кезеңінде ATP жұмсайды; жеткілікті цистеин, глицин және ферменттік реттеу қажет. Глутатионпероксидазалар пероксидтерді тотықсыздандырғанда тотықсызданған глутатионды пайдаланып, тотыққан глутатион түзеді. Глутатионредуктаза оны NADPH арқылы қайта тотықсыздандырады.
ROOH пероксидті білдіреді; фермент ерекшелігі қандай түрлер тотықсызданатынын анықтайды. GPX4 және липид пероксидтерін бақылау нақты фермент пен липид компартментінің маңызын көрсетеді. GPX4 фосфолипид гидропероксидтерін тотықсыздандырады деген факт кез келген глутатионпероксидазалық жол барлық пероксинитритті жояды дегенді білдірмейді.
Пероксинитрит тирозин қалдықтарын нитрлеуі мүмкін; бұл цистеиннің S-нитрозилденуінен бөлек өзгеріс. Оттек пен азоттың белсенді түрлері аммиакқа қатысты тәжірибелерде ақуыз, липид және митохондрияны зақымдай алады. Najmi және әріптестері (2010) тиоацетамид берілген егеуқұйрықтарда бауыр глутатионы мен тотығу стрессі маркерлерін өлшеді. Нәтиже антиоксиданттық күй жөніндегі клиникаға дейінгі болжамды қолдайды; адам миындағы глутатионның сандық өсуін немесе толық церебралдық қорғанысты анықтамайды.
Гематоэнцефалдық бөгет пен жергілікті алмасу ми аминқышқыл пулдарын бөледі. Перифериялық глутамат артуы астроцит глутатионының артуына кепіл емес: тасымал қатаң реттеледі, глутаматтың өзі қоздырғыш нейромедиатор. Сондықтан перифериялық субстраттық қолдауды миға антиоксидант ізашарын тікелей, шексіз жеткізу деп сипаттауға болмайды.
Астроциттер аммиакты глутаминге айналдырады; жасуша ішіндегі глутамин осмостық стресс туғызуы мүмкін. «Троя аты» тәжірибелік модельдерінде митохондриялық глутамин ыдырауы аммиакты қайта шығарып, тотығу стрессі мен өткізгіштік өзгерістерін күшейтеді. Rama Rao, Jayakumar және Norenberg-тің (2003) өсірілген астроциттердегі жұмысы осы механизм әдебиетіне жатады; ол LOLA митохондриялық өткізгіштік ауысуының 100%-ын тоқтататынын көрсетпейді. Ми азотын өңдеуге басқа жасушалар мен жолдар да қатысады.
Митохондриялық өткізгіштік ауысуы кальцийге, тотығу-тотықсыздану күйіне және органелла жағдайына тәуелді. Циклофилин D сезімталдықты реттейді; пораның толық құрылымдық табиғаты әлі зерттелуде. Компоненттердің өзгермейтін тізімі LOLA-ның дәлелденген дәрілік нысанасын белгілемейді. AQP4 су каналының таралуы, TSPO қатысатын нейростероид сигналдары және триптофан мен өзге ірі бейтарап аминқышқыл тасымалы энцефалопатияны зерттеудің қосымша бағыттары. Серотонин мен кинуренин жолдары ықтимал қатысушылар, LOLA бүкіл синдромды түзетті дейтін расталған маркерлер емес. Бұл әсерлер аммиак төмендеуінен болжанбай, жеке өлшенуі тиіс.
Ішек және микробиом әсерлерінің белгісіздігі
Микробтық уреазалар несепнәрді гидролиздеп, аммиакты қайта түзеді; ішектегі глутамин алмасуы да азот береді. Ішекке түскен несепнәр азоттың қайта айналуына қатысады, тек түпкілікті залалсызданған пул емес. Бауырдағы уреагенезді арттыру бактериялық уреазаны тежейтінін дәлелдемейді. Enterobacteriaceae тұқымдасының бәрін міндетті анаэробтар деп атауға болмайды; таксономиялық құрам аммиак өндірісін өлшемейді.
Horvath және әріптестері (2022) LOLA алған 15 адамды сәйкестендірілген 15 пациентпен ретроспективті салыстырды. Микробиом мен метаболом байланыстары болжамға пайдалы, бірақ емді таңдау және өзге клиникалық айырмашылықтар себептілікті анықтауға кедергі. Clinical Nutrition 56 (2026) журналындағы жаңа бір орталықты IV фаза бақылау зерттеуіне 65 адам кіріп, 52-сі бақылауды аяқтады. Flavonifractor бойынша негізгі нәтиже орындалмады. Romboutsia азайды, Enterococcus артты; бұл микробиомның жалпы «қалыпқа келуін» көрсетпейді. Сергектік жақсаруы өмір сапасының сегіз саласының біреуіне қатысты. Ішкі топтардағы бұлшықеттік зерттеушілік нәтижелер және диаминоксидаза немесе липополисахаридпен байланысатын ақуыз өзгерістері ішек өткізгіштігінің қалпына келуін, инфекция азаюын не өмір сүру артуын анықтамайды. Проспективті жұмыста бір мезгілдегі бақылау тобы болмады.
Ішек–бауыр–бұлшықет жүйесі зерттеуге орынды негіз болып қалады, бірақ әр байланыс өз дәлелін қажет етеді. Аммиак жүктемесінің ықтимал азаюы, бактерия мөлшерінің өзгеруі және клиникалық эпизодтың алдын алу — бір оқиға емес.
Рандомизацияланған сынақтар нені өлшеді
Төмендегі доза мен ұзақтық тәжірибелерді анықтау үшін берілген, ем сызбасы емес. Ішуге және көктамырға арналған препараттар, клиникалық жағдай мен негізгі ем әртүрлі. Сандар қолжетімді бастапқы жарияланыммен расталған жерде ғана сақталған.
| Зерттеу және популяция | Дизайн және зерттелген экспозиция | Нәтиже және қорытынды шегі |
|---|---|---|
| Kircheis және әріптестері, 1997; созылмалы энцефалопатия | Плацебомен рандомизацияланған салыстыру; хабарланған 126 пациент, хаттама бойынша талдауда 114 | Негізгі көрсеткіштер — тамақтанудан кейінгі веналық аммиак пен сандарды қосу тесті. Қолжетімді жазбалар контексті растайды, бірақ әр жауап пайызын емес; тексерілмеген «82% және 36%» қайталанбайды. |
| Stauch және әріптестері, 1998; тұрақты айқын/субклиникалық түр | 66 пациент; ішке 18 г/тәулік, 14 күн, плацебомен салыстыру | Аммиак, сандарды қосу және клиникалық индекстер жақсарды. Шағын қысқа жұмыста жағымсыз құбылыс байқалмауы ұзақ мерзімді әмбебап қауіпсіздікті дәлелдемейді. |
| Poo және әріптестері, 2006; созылмалы түр | 20 пациент; LOLA лактулозамен екі апта салыстырылды | Екі топта да бастапқы деңгеймен салыстырғанда аммиак азайды. Шағын топішілік өзгерістер лактулозадан жалпы артықшылықты дәлелдемейді; салыстырғыш плацебо емес. |
| Alvares-da-Silva және әріптестері, 2014; минималдық түр | 64 адам қосылған, 63-інде минималдық түр; ішке 15 г/тәулік, 60 күн | Кейбір топішілік тесттер өзгерді, бірақ жалпы топаралық психометриялық/CFF және өмір сапасы салыстыруы оң болмады. Алты айдағы айқын түр белгісі (5% және 37,9%; P = 0,016) басқа нәтиже. |
| Sidhu және әріптестері, 2018; цирроздағы айқын түр | 193 пациент; көктамырға 30 г/тәулік бес күн, плацебомен салыстыру; екі топта лактулоза мен цефтриаксон | Бесінші күндегі сана бұзылысы дәрежесі — негізгі нәтиже — елеулі ерекшеленбеді. Ерте күндер мен қалпына келу уақыты LOLA-ға қолайлы болды: 1,92 ± 0,93 және 2,50 ± 1,03 тәулік (P = 0,002). Аммиак пен ауруханада жату азайды. Бұл негізгі нәтижені бірмәнді оң деп атауға жеткіліксіз. |
| Jain және әріптестері, 2022; цирроздағы III–IV дәреже | 140 пациент; негізгі емге қосымша көктамырға 24 сағатта 30 г, бес күн, плацебомен салыстыру; екі топта лактулоза мен рифаксимин | Бесінші күндегі дәреже жақсаруы 92,5% және 66% (P < 0,001); қалпына келу 2,70 ± 0,46 және 3,00 ± 0,87 тәулік. 28 күндік өлім 16,4% және 41,8%. Жеке сынақтың елеулі белгісі маңызды, бірақ барлық жағдайда өмір сүруге кепіл емес. |
| Varakanahalli және әріптестері, 2018; қалпына келгеннен кейінгі екіншілік алдын алу | 150 адам қосылған; ішке 18 г/тәулік алты ай, плацебомен салыстыру | Қайталану 9/73 (12,3%) және 20/72 (27,7%); уақыттық қауіп қатынасы 0,389, 95% сенімділік аралығы 0,174–0,870. Өлім елеулі ерекшеленбеді: 6,8% және 13,8%, P = 0,18. Салыстырғыш — плацебо, лактулоза емес. |
| Bai және әріптестері, 2014; TIPS-тен кейін | 40 рандомизацияланған пациент; жеті күндік салыстыру | Веналық аммиак жақсарды, бірақ айқын энцефалопатия 1 және 3 пациентте болды (P = 0,331). TIPS-тен кейін клиникалық алдын алу дәлелденбеді. |
| Acharya және әріптестері, 2009; жедел бауыр жеткіліксіздігі | 201 пациент; көктамырға 30 г/тәулік үш күн, плацебомен салыстыру | Аммиак немесе өмір сүру пайдасы анықталмады. Өлім LOLA-да 42,4%, плацебода 33,3%; RR 1,27, 95% сенімділік аралығы 0,88–1,85. Аралық пен P = 0,204 статистикалық маңызды зиянды да анықтамайды. |
Sidhu мен Jain айырмасы мазмұнды: популяциялар, негізгі ем және бағалау уақыты бірдей емес. Sidhu зерттеуінде Jain қолданған лактулоза–рифаксимин үйлесімі болған жоқ. Алғашқы күндердегі жақсару алдын ала таңдалған бесінші күн салыстыруынан бөлек. Статистикалық маңыздың болмауы емдер тең екенін дәлелдемейді, бірақ негізгі нәтиже орындалды деуге де негіз емес.
Қайталану сынағындағы байқалған үлестер айырмасы шамамен 15,4 пайыздық тармақ. Оның кері шамасы 6,5-ке жуық: әсер себептік және басқа жағдайға көшірілетін болса, зерттелген алты айда бір қайталануды болдырмау үшін шамамен жеті адамды емдеу. Бұл қарапайым үлестерден есептелген сипаттамалық сан, уақыттық қауіп қатынасымен бірдей емес және кез келген бастапқы қауіпке немесе негізгі емге ауыстырылмайды:
ARR — абсолюттік қауіп төмендеуі, NNT — көрсетілген жорамалдардағы емдеу қажет адам саны. Бақылау айырмасы, цензуралау және талданған популяциялар қарапайым үлеспен қорытындылауды шектейді.
Goh және әріптестерінің Cochrane шолуы (2018) 36 рандомизацияланған сынақ тапты; 29-ы 1891 қатысушының нәтижелерін берді. Біріктірілген ықтимал пайда дәлел сенімділігінің өте төмен болуымен қатар жүрді және қателік қаупі төмен жұмыстарға басымдық берілген талдауларда орнықты расталмады. Кейінгі сынақтар ақпарат қосады, бірақ ескі дәлелдің кемшілігін кері жоймайды. Метаанализдер зерттеу құрамы, енгізу жолы, көрсеткіш пен әдіс бойынша ерекшеленеді; қолайлы ортақ баға осы таңдауларды бағалауды алмастырмайды.
Нұсқаулықтар, ем үйлесімдері және клиникалық шектер
AASLD/EASL 2014 нұсқаулығы көктамырлық LOLA-ны әдеттегі емге жауап жеткіліксіз болғанда балама немесе қосымша ретінде қарастырды. Ішке қабылдаудың тарихи бағасы жаңа пероральдық сынақтардан бұрын жасалған, сондықтан кейінгі дерек жоқ сияқты қолданылмайды. EASL 2022 және ACG 2026 емді кең аяда қарастырады: синдромды анықтау, қоздырушы себептерді табу, айқын эпизод, қайталану және жасырын түрді ажырату. ACG 2026 ресми қысқаша құжаты емді үнемі аммиак санына қарай өзгерту немесе тек айқын түрді болдырмау үшін барлық жасырын жағдайды емдеуді қолдамайды.
Лактулоза мен рифаксимин әртүрлі буынға әсер етеді және клиникалық орны қалыптасқан. Олардың үстіне LOLA қосу сынағы сол популяциядағы қосымша әсерді бағалайды; оларды ауыстыруды не үш дәрінің әмбебап биохимиялық синергиясын дәлелдемейді. Альбумин белгілі көрсетілімдерде қолданылады немесе байланысты жағдайларда зерттеледі; бұл автоматты LOLA–лактулоза–рифаксимин–альбумин хаттамасын негіздемейді. Тамақтану мен бұлшықетті сақтау маңызды; ақуызды тұрақты шектеу бұлшықет қорын азайтуы мүмкін және қазіргі нұсқаулықтарда ұсынылмайды.
Кестедегі дозалар жүктемелік дозаға, инфузия сұйылтуына, бәріне бірдей 20–40 г/тәулікке немесе аммиакты 50 мкмоль/л-ден төмен ұстауға нұсқау емес. Клиникалық қолдануды препарат, жол, ауырлық, қарсы көрсетілімдер және жергілікті нұсқаулық анықтайды. Жаңа шатасу не сананың төмендеуі биохимиялық сұлбадан қоспа таңдауды емес, себебі мен ауырлығын бағалауды қажет етеді.
Қауіпсіздік және бүйрек қызметі
Өндірушінің негізгі ақпараты ауыр бүйрек жеткіліксіздігін қарсы көрсетілім деп атап, сарысулық креатининнің 3 мг/100 мл-ден жоғары болуын препаратқа қатысты бағдар ретінде береді. Бұл барлық ел, түр және пациентке ортақ шек емес, нақты тағайындау ақпаратының өлшемі. Бұлшықет массасы төмен адамда креатинин бүйрек қызметін толық көрсетпейді. Препаратқа жоғары сезімталдық та қарсы көрсетілім.
Асқазан-ішек жағымсыз әсерлері мен көтерімділік енгізу жолына тәуелді. Көктамырлық емнің арнайы енгізу шектеулерін зерттеу кестесінен қайталауға болмайды. Өнім ақпаратында жүктілік, емізу және балалар жөніндегі дәлел шектеулі; өзге популяцияда айқын белгі болмауы қауіпсіздікті дәлелдемейді. Құрамның аминқышқылдардан тұруы дәрілік өзара әсердің жоқтығын, CYP-қа байланысты әсерден толық бос болуды немесе әмбебап 1–3% жағымсыз құбылыс жиілігін анықтамайды.
Бүйрек бұзылысы азоттың соңғы тағдырын және глутамин жолдарын бағалауды өзгертеді. Тұқым қуалайтын метаболизм ақауындағы гипераммониемия цирроз энцефалопатиясынан бөлек; ұқсастықпен емдеу нақты ақауды елемеуі мүмкін. Биохимиялық түсіндіру циклдің барлық ақауына тіркелген көрсетілімді немесе тиісті нұсқаулықсыз бәріне ортақ ресми қарсы көрсетілімді белгілемейді.
MASLD, бұлшықеттік нәтижелер және бауырды қорғау болжамдары
Ескі жұмыстар NAFLD және NASH атауларын қолданады; қазіргі терминдерге метаболизм бұзылысымен байланысты бауырдың стеатоздық ауруы (MASLD) және стеатогепатит (MASH) кіреді. Атау ауысуы популяция анықтамаларының айырмасын жоймайды. Бауыр ферменттері немесе тотығу стрессі маркерлері жақсаруы және ықтимал глутатион механизмі фиброз регрессін, порталдық микроциркуляция жақсаруын немесе бауыр ауруынан өлімнің алдын алуды дәлелдемейді.
Pichon және әріптестері (2022) майы көп азық алған Alms1 мутантты foz/foz тышқандарын зерттеді. Ерте араласу мен қалыптасқан ауруды емдеу — бөлек тәжірибелік жағдайлар. Ерте кезеңдегі бұлшықет пен миостеатоз өзгерістері аммиак алмасуы немесе бауыр ауруының жақсаруымен қатар жүрмеді. Микро-КТ бұлшықет тығыздығы мен ауданы адам күші мен функциясына тең емес. Сондықтан тәжірибе адамның MASH фиброзын кері қайтаруды немесе цирроз саркопениясын емдеуді дәлелдемейді. Бақылау тобы жоқ адам микробиом зерттеуіндегі зерттеушілік бұлшықет белгілерінің басқа шектеулері бар.
Аммиак жүктемесі азайса бұлшықет алмасуына көмектесуі мүмкін деген болжам биологиялық тұрғыдан орынды. Клиникалық растау үшін тамақтану мен ауру ауырлығын ескеріп, масса, күш, жұмыс қабілеті және пациентке маңызды функция бағалануы керек. Аммиак өзгерісі бұлардың орнына жүрмейді.
Жедел бауыр жеткіліксіздігі және трансплантация
Жедел бауыр жеткіліксіздігі тез үдеуі мүмкін. Ми ісінуі, көп мүшелік бұзылыс және трансплантация қажеттілігі оны тұрақты созылмалы цирроздан ажыратады. Rose және әріптестері (1999) егеуқұйрық моделінде ми аммиагы мен ісінуін зерттеді. Бірақ Acharya және әріптестерінің (2009) адамдағы рандомизацияланған жұмысы аммиак немесе өмір сүру пайдасын растамады. Жануар механизмі клиникалық нәтижені жоққа шығармауы және себепке бағытталған емді, қарқынды бақылауды немесе трансплантация бағасын кешіктіруді негіздемеуі тиіс.
Трансплантациядан кейін клиникалық сұрақты бауыр мен бүйрек қызметі, иммуносупрессия және гипераммониемия себебі анықтайды. Операция айналасындағы азот стрессі LOLA трансплантация нәтижесін жақсартатынын дәлелдемейді. Нейроқорғаныс не өмір сүру пайдасы дәлелденген деу үшін тікелей дерек қажет; қаралған қолжетімді зерттеулер оны бермейді.
Мақаланы дайындау әдісі
2026 жылғы 8 қазанда дайындалды. Бұл бастапқы биохимиялық жұмыстарды, рандомизацияланған сынақтарды, ресми нұсқаулықтар мен препарат ақпаратын нысаналы тексеруге сүйенген ғылыми баяндау. Ол жүйелі шолу, жаңа GRADE бағасы, ғылыми рецензиялау немесе клиникалық валидация емес. Нәтижелер, салыстырғыштар, жылдар мен идентификаторлар қолжетімді дерекпен тексерілді; теріс және қайшы нәтижелер сақталды. Кейбір толық мәтін қолжетімсіз болғандықтан метадерек, аннотация немесе қолжетімді үзінділер пайдаланылды, нақты қолжетімсіз әдістер тексерілмеді. Тәжірибелік механизмдер адамдағы ем нәтижелерінен, зерттелген экспозициялар тағайындау нұсқауларынан ажыратылған.
Жиі қойылатын сұрақтар
LOLA CPS1-ді тікелей белсендіре ме?
Адамның CPS1-імен тікелей байланыс немесе орнитиндік аллостерия мұнда анықталмаған. Міндетті белсендіргіш — NAG; LOLA байланысты жолдарға субстрат береді.
Глутамин синтезі аммиакты түпкілікті шығара ма?
Жоқ. Глутамин азотты уақытша тасиды, ыдырауы аммиакты қайта босата алады. Бүйректен шығарылу мен қанға қайту ажыратылуы тиіс.
Жоғары аммиак энцефалопатия диагнозын анықтай ма?
Жоқ. Цирроздағы диагноз клиникалық жағдайға сүйенеді; жоғары мән жалғыз өзі бар-жоқты не дәрежені анықтамайды. Қалыпты мән диагнозды қайта қарауды қажет етеді.
Минималдық және айқын түр қалай ажыратылады?
Минималдық түр тиісті тесттермен анықталады. Жасырын түр оны және I дәрежені, айқын түр West Haven II–IV дәрежелерін қамтиды.
LOLA барлық жағдайда өмір сүруді ұзарта ма?
Жоқ. Ауыр цирроздағы қосымша емнің бір сынағы өлім белгісін көрсетті, ал жедел жеткіліксіздік сынағы өмір сүру пайдасын анықтамады.
Лактулоза немесе рифаксиминді алмастыра ала ма?
Келтірілген қосымша ем сынақтары алмастыруды дәлелдемейді. Негізгі ем, қоздырушы себептер және клиникалық жағдай маңызды.
Сынақ дозасы менің емімді белгілей ме?
Жоқ. Ол зерттелген экспозицияны көрсетеді. Тағайындау препаратқа, енгізу жолына, клиникалық баға мен қарсы көрсетілімге тәуелді.
MASH фиброзы мен саркопенияны кері қайтару дәлелденген бе?
Тышқан тәжірибелері және зерттеушілік бақылаулар адам фиброзы регрессін немесе әмбебап бұлшықет қызметінің жақсаруын анықтамайды.
Негізгі бүйректік шектеу қандай?
Өндіруші ауыр бүйрек жеткіліксіздігін қарсы көрсетілім деп береді. Азоттың соңғы тағдыры мен нақты препарат нұсқаулығы маңызды.
Бұл жүйелі шолу ма?
Жоқ. Бұл бастапқы деректерді нысаналы тексерген және қолжетімділік пен дәлел шектерін көрсеткен ғылыми баяндау.
Дереккөздер
- Acharya et al.2009; DOI10.1053/j.gastro.2009.02.050
- Goh et al.2018 DOI10.1002/14651858.CD012410.pub2
- EASL2022 Clinical Practice Guidelines on management of HE
- Vilstrup et al.2014
- Jain et al.2022 DOI10.1002/hep.32255
- Stauch et al.1998 DOI10.1016/S0168-8278(98)80237-7
- Bachmann Krähenbühl Colombo1982 DOI10.1042/bj2050123
- Kircheis et al.1997
- Caldovic et al.2006 PMID16321554 DOI10.1016/j.ymgme.2005.10.003
- Alvares-da-Silva et al.2014 DOI10.1111/hepr.12235
- Fiermonte et al.2003
- Luongo et al.2020 DOI10.1038/s41586-020-2741-7
- Hakvoort et al.2017 Pivotal role of glutamine synthetase in ammonia detoxification
- Horvath et al.2022 PMID35215398; Nutrients14:748
- Varakanahalli et al.2018 DOI10.1097/MEG.0000000000001137