EGCG і T-клітини: епігенетика, метаболізм і межі доказів
Як катехін зеленого чаю взаємодіє з DNMT, FOXP3, NF-κB і mTOR, чому мишачі результати не доводять появи стабільних людських Treg та що показали клінічні дослідження ефективності й печінкової безпеки.
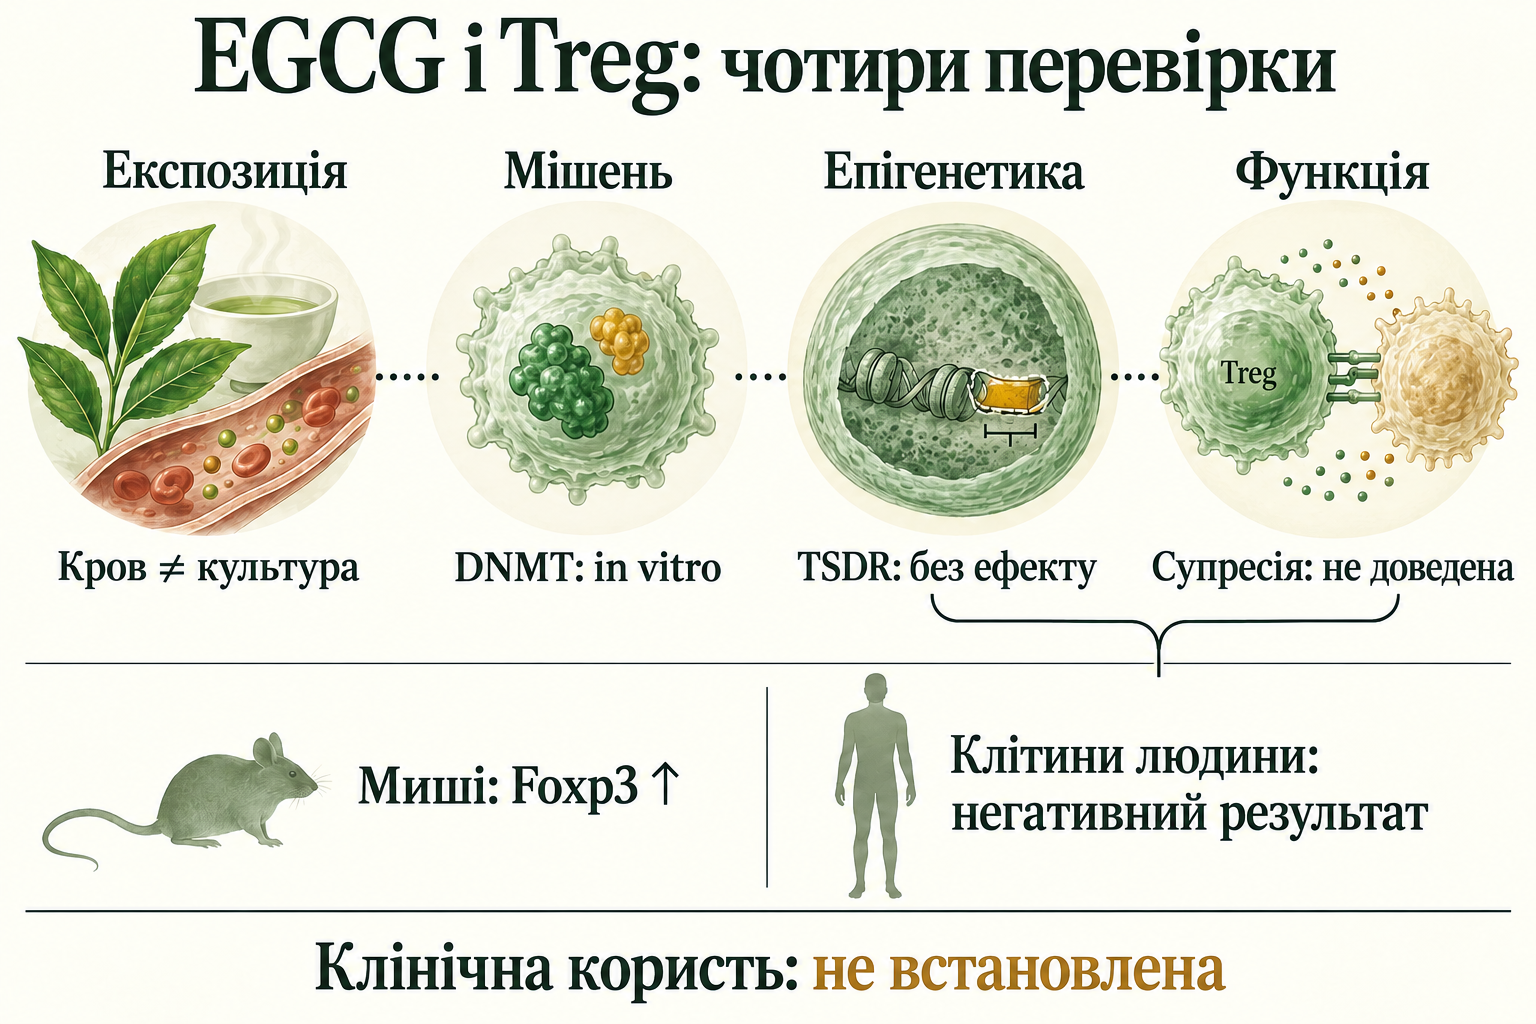
Епігалокатехін-3-галат, або EGCG, — один з основних катехінів зеленого чаю. Він цікавий імунології, оскільки в експериментальних системах змінює активність ферментів, передавання запальних сигналів і диференціювання T-лімфоцитів. Проте ланцюг «EGCG пригнічує метилювання → вмикається FOXP3 → виникає стабільна регуляторна T-клітина → людині стає краще» поки не доведений. Суттєва прогалина є вже між другим і третім кроками: у прямому дослідженні людські клітини не набули повноцінної регуляторної функції.
Регуляторні T-клітини, Treg, обмежують надмірні імунні реакції та підтримують толерантність до власних антигенів. Їхній дефіцит або дисфункція можуть брати участь в автоімунному запаленні; надмірне пригнічення імунітету також буває небажаним. Тому «більше Treg» не означає універсальної користі, а EGCG не можна вважати способом самостійно переналаштувати імунітет. Важливі походження клітин, стабільність їхнього стану, тканинний контекст і справжні клінічні результати.
Молекула в чашці та біля клітинної мішені
EGCG — флаван-3-ол із галатним фрагментом і кількома фенольними гідроксильними групами. Вони забезпечують водневі зв'язки, взаємодії з білками й участь в окисно-відновних реакціях. Та сама хімія пояснює частину антиоксидантних ефектів і нестабільність сполуки: кисень, склад середовища та тривалість експозиції можуть змінити молекулу і її продукти. EGCG не є препаратом з єдиною мішенню, а зв'язування в очищеній системі не доводить, що цей білок стане головним адресатом після вживання чаю.
Слід розрізняти чотири простори: просвіт кишківника, кишкову стінку й печінку, плазму крові та внутрішньоклітинну мішень. Після всмоктування катехіни зазнають метилювання, глюкуронування й сульфатування; частину невсмоктаної речовини перетворює мікробіота. Співвідношення вихідної та кон'югованих форм різне для різних катехінів. «Вільний EGCG» у фармакокінетичній статті зазвичай означає некон'юговану молекулу, а не обов'язково фракцію, цілком незв'язану з білками плазми. Плазмову концентрацію не можна автоматично вважати концентрацією в ядрі лімфоцита.
Робота Chow та колег на 30 здорових добровольцях показує вплив умов приймання. Учасників розподілили на три групи по 10: одноразова доза Polyphenon E містила 400, 800 або 1200 мг EGCG. У перехресному порівнянні приймання з їжею та натще, розділеному тижневим періодом вимивання, середній максимум некон'югованого EGCG у плазмі натще був більш ніж у 3,5 раза вищим. Це дослідження біодоступності, а не ефективності лікування чи тривалої безпеки; переносимість однієї дози не виправдовує регулярне приймання концентрату натще.
Отже, мікромолі клітинного дослідження не можна перевести в міліграми капсули простою пропорцією. Склад екстракту, їжа, тканинний розподіл, метаболізм та індивідуальна мінливість одночасно змінюють експозицію. Зростання біодоступності може посилити й небажані ефекти. Слабке всмоктування допускає значну місцеву експозицію кишківника, але саме по собі не доводить лікувального впливу на слизову.
DNMT: що саме пригнічується
ДНК-метилтрансферази переносять метильну групу із S-аденозилметіоніну, SAM, на цитозин ДНК, утворюючи 5-метилцитозин і S-аденозилгомоцистеїн, SAH. DNMT1 переважно підтримує рисунок метилювання після реплікації, а DNMT3A і DNMT3B беруть участь у створенні нових міток. У ядрі це частина системи з розпізнаванням хроматину, реплікацією та іншими ферментами; зниження активності одного компонента не означає вибіркового стирання потрібної імунологічної ділянки.
У роботі Fang 2003 року EGCG пригнічував активність DNMT у ядерних екстрактах із константою інгібування Ki 6,89 мкМ. У клітинах раку стравоходу KYSE 510 досліджували 5–50 мкМ і виявили зміни метилювання та експресії кількох раніше вимкнених генів. Це підтримує епігенетичну гіпотезу, але експеримент належить до пухлинної системи. Він не доводить деметилювання FOXP3 у нормальних людських T-клітинах і не задає ефективної пероральної дози.
Lee та колеги 2005 року дослідили інший ферментний контекст — бактеріальну SssI і людську DNMT1. Значення IC50 EGCG становили 0,21–0,47 мкМ. Ці числа не суперечать Ki 6,89 мкМ автоматично: IC50 і Ki характеризують різні величини, а концентрація субстрату, джерело ферменту й умови реакції впливають на спостережувану активність. Їх не можна усереднити до «справжньої концентрації» або оголосити доказом однакового пригнічення всіх ізоформ DNMT.
Є також метаболічний зв'язок через катехол-O-метилтрансферазу, COMT. O-метилювання поліфенолу витрачає SAM і утворює SAH, здатний гальмувати метилтрансферази. У роботі Lee цей непрямий механізм був особливо важливим для епікатехіну; сильніший ефект EGCG переважно пов'язували з прямим інгібуванням ферменту. Комп'ютерна модель участі галатного фрагмента й посилення ефекту Mg²⁺ пояснюють можливу взаємодію, але не доводять вибірковості до конкретного локусу в живому організмі.
Пригнічення DNMT не дорівнює активному деметилюванню. Під час поділу клітини мітки можуть поступово зникати через недостатнє підтримання; інший шлях починається з окиснення 5-метилцитозину ферментами TET. Це Fe²⁺- і 2-оксоглутарат-залежні діоксигенази, що використовують кисень; подальші реакції та репарація можуть повернути немодифікований цитозин. Це різні процеси. Розглянуті роботи не дають підстав стверджувати, що EGCG спрямовано активує TET саме в людському FOXP3-TSDR.
FOXP3: маркер, епігенетична пам'ять і функція
FOXP3 — транскрипційний фактор, необхідний для програми Treg. Проте в активованих звичайних людських T-клітинах його експресія може бути тимчасовою, без стабільної супресорної здатності. Тому частка FOXP3-позитивних клітин, кількість мРНК, глобальне метилювання ДНК і пригнічення відповіді інших клітин відповідають на різні запитання. Жоден із перших трьох показників не замінює останній.
Консервативні некодуючі елементи гена Foxp3 беруть участь у різних етапах програми. В експериментальній роботі Zheng та колег CNS1 був пов'язаний із периферичною індукцією у відповідному сигнальному контексті, CNS2 — зі спадковим підтриманням експресії, CNS3 — з готовністю до вмикання гена. TSDR у зоні CNS2 є важливою епігенетичною ознакою стабільної регуляторної лінії. Він не є єдиним перемикачем: доступність хроматину, цитокінові сигнали й функціональна програма мають узгоджуватися.
Wong та колеги 2011 року спостерігали збільшення Foxp3 і IL-10 у лінії Jurkat та більше регуляторних клітин у лімфоїдних органах мишей. Результати підтримали гіпотезу про зміщення імунної регуляції під впливом EGCG, пов'язавши його з DNMT і загальним метилюванням. Але Jurkat — трансформована лінія, а мишачі тканини не замінюють первинних людських клітин. Зростання маркера в цих моделях не встановлює довготривалої стабільності або придатності для лікування людини.
Kehrmann та колеги 2014 року опублікували пряму перевірку цього обмеження. У первинних людських CD4⁺CD25⁻ клітинах порівнювали 5 і 50 мкМ EGCG протягом 4–7 днів. Вища концентрація зменшувала глобальне метилювання, але значного деметилювання FOXP3-TSDR, відповідної Treg-програми й супресорної функції не виявили. Висока експозиція супроводжувалася вираженою цитотоксичністю. Навіть порівняльний гіпометилювальний агент, що змінював TSDR і маркери, не забезпечив повноцінного пригнічення проліферації клітин-відповідачів: самої епігенетичної мітки недостатньо.
Людське дослідження клітин добровольців з ожирінням і нормальною масою тіла дало інший, але вужчий результат. Після 20 мкМ EGCG протягом 24 годин уже виділені Treg демонстрували збільшення кількості FOXP3-позитивних клітин і продукції IL-10; змінювалися NF-κB та активність HDAC. Це дослідження ex vivo наявної популяції, а не доказ перетворення звичайних клітин на стабільні Treg після вживання чаю. Відмінності вихідних клітин, концентрації, тривалості й критеріїв не дозволяють об'єднати ці дані в одну обіцянку.
Імунна відповідь змінюється й без переписування ДНК
EGCG може впливати на запалення через сигнальні й білкові процеси, що не потребують деметилювання FOXP3. Aktas та колеги показали зменшення запалення й нейронального ушкодження в моделях експериментального автоімунного енцефаломієліту. У людських мієлін-специфічних CD4⁺ клітинах ex vivo описали зупинку клітинного циклу та пригнічення протеасом 20S/26S. Накопичення IκBα стримує активацію NF-κB. Це клітинний механізм і результат на тваринах, а не доведений захист нервової системи пацієнтів.
В іншій роботі з експериментального автоімунного енцефаломієліту EGCG зменшував Th1- і Th17-відповіді, продукцію IFN-γ та IL-17 зі змінами STAT, T-bet і RORγt/RORα. Через CD80/CD86 змінювалася також костимулювальна функція антигенпрезентувальних клітин. Отже, запальна відповідь може слабшати через зміни активації та диференціювання ефекторних клітин, без виникнення нової стабільної Treg-лінії. Саме числове співвідношення Th17/Treg не встановлює причинного процесу.
Th1, Th17 і Treg мають різні сигнальні вимоги. IL-2–STAT5 підтримує регуляторну програму; TGF-β, IL-6, IL-1 та IL-23 діють залежно від стадії й оточення. STAT3 і RORγt беруть участь у Th17-програмі, T-bet — у Th1-програмі. Перенесення результату між тканинами може спотворити тлумачення, оскільки антигенна стимуляція, запальні цитокіни й поживні речовини здатні направляти ту саму клітину різними траєкторіями.
Поверхневий 67-кДа ламініновий рецептор, 67LR, запропонований як одна з мішеней EGCG. У початковій роботі Tachibana 2004 року виявили наномолярне зв'язування й залежну від експресії рецептора чутливість пухлинних клітин. Пізніші макрофагальні моделі описали шлях 67LR–Tollip, який обмежує TLR4-сигналінг. Це не доказ універсального ланцюга «67LR → PKA → блок mTOR → Treg» у всіх T-клітинах; поверхневе зв'язування, цитоплазматичний сигнал і події в ядрі потребують окремого підтвердження.
Запалення також залежить від вроджених механізмів. Матеріал про NLRP3-інфламасому допомагає розрізнити транскрипційну підготовку через NF-κB і подальшу активацію комплексу з дозріванням IL-1β. Зменшення одного сигналу не вимикає всього імунного каскаду. Зв'язок пояснює рівні регуляції, а не доводить клінічного контролю кожного з них через EGCG.
mTOR і енергетика: чому «вимкнути» недостатньо
mTOR поєднує інформацію про поживні речовини, ростові сигнали й енергетичний стан клітини. Комплекс mTORC1 із Raptor керує синтезом білків і ліпідів, зокрема через S6K і 4E-BP; mTORC2 із Rictor бере участь у регуляції Akt та інших процесів. AMPK реагує на енергетичне напруження й може обмежувати mTORC1 через TSC2 і Raptor. Це загальна біологія T-клітин; вона не доводить, що будь-яка схема зв'язків відображає фактично виміряний вплив EGCG на людину.
Під час первинного диференціювання зниження надмірного Akt–mTOR-сигналу може сприяти індукції FOXP3. Проте зрілим Treg потрібна певна активність mTORC1 для функціональної готовності. У роботі Zeng 2013 року вибіркова втрата Raptor у мишачих Treg різко порушувала супресію й викликала тяжке запалення. Мевалонатний шлях і синтез ліпідів були пов'язані з проліферацією та експресією CTLA-4/ICOS. Тому повне або постійне пригнічення mTORC1 не є універсальним способом посилити Treg.
Активовані ефекторні клітини часто посилюють гліколіз, тоді як регуляторна програма має іншу організацію обміну й мітохондріальної роботи. Однак Treg не живуть винятково на жирних кислотах, а гліколіз не є єдиною ознакою патологічної клітини. Енергетичні потреби змінюються під час міграції, проліферації та пригнічення імунної відповіді. Дослідження HIF-1α показало його роль в експериментальному балансі Th17/Treg через RORγt, гліколіз і стабільність Foxp3, але не довело, що EGCG однаково керує всіма цими гілками.
Для кишкового середовища корисно порівнювати різні метаболічні сигнали. Стаття про бутират і форми його доставки розбирає інший зв'язок обміну, епітеліального бар'єра й епігенетичної регуляції. Спільні вислови «впливає на HDAC» чи «підтримує Treg» не роблять бутират і EGCG взаємозамінними: їхні мішені, місцева експозиція та клінічні докази різні.
Що показали дослідження пацієнтів
Пілот Dryden 2013 року включав пацієнтів із легким або помірним виразковим колітом. У подвійному сліпому плацебо-контрольованому дослідженні 20 людей рандомізували у співвідношенні 4:1; більше однієї дози отримали 19 — 15 у групі Polyphenon E та 4 у групі плацебо. Використовували 400 або 800 мг EGCG на добу розділеними дозами протягом 56 днів. Оцінювали активність хвороби та опитувальник запальних захворювань кишківника. Відповідь становила 10/15 проти 0/4, 66,7% проти 0%, p=0,03; ремісія — 8/15 проти 0/4, 53,3% проти 0%, p=0,10. Останній результат не був статистично переконливим. Мала контрольна група, короткий термін і пілотний дизайн обмежують висновок: це сигнал для подальших досліджень, а не доказ TSDR-механізму чи стандарт лікування.
Більше дослідження Bellmann-Strobl за ремітуючого розсіяного склерозу перевіряло EGCG як доповнення до стабільної терапії глатирамеру ацетатом. До багатоцентрового подвійного сліпого рандомізованого дослідження включили 122 пацієнти: 62 отримували EGCG, 60 — плацебо. Дозу підвищували до 800 мг на добу; спостереження тривало 18 місяців. Первинний результат — частка пацієнтів без нових гіперінтенсивних T2-вогнищ на МРТ мозку за цей період. Міжгрупової переваги не показано ні за ним, ні за іншими МРТ-показниками, EDSS, функціональним комплексом чи річною частотою рецидивів. Цей негативний результат для конкретної популяції та режиму не можна приховувати за успіхами мишачого енцефаломієліту.
Робота Lovera важлива і для ефективності, і для безпеки. У першій неконтрольованій фазі 10 пацієнтів із розсіяним склерозом отримували Polyphenon E з 800 мг EGCG на добу шість місяців; оцінювали переносимість і мозковий N-ацетиласпартат як дослідницький маркер нейропротекції. Зміна маркера дозволила продовжити вивчення, але без контрольної групи не доводила клінічної користі. До другої рандомізованої фази включили 13 людей, 12 розпочали лікування; планували рік спостереження. Її зупинили через порушення печінкових тестів у 5 із 7 учасників на Polyphenon E, включно з одним випадком третього ступеня. Ефективність другої фази проаналізувати не вдалося. Відмінності партій також показують, чому вміст EGCG не описує препарат повністю.
Печінка й хімічні пастки тлумачення
У Minnesota Green Tea Trial 1075 жінок після менопаузи рандомізували до екстракту зеленого чаю або плацебо на 12 місяців; початкова мета стосувалася маркерів ризику раку молочної залози. Печінковий аналіз включав 1021 учасницю з нормальними вихідними ферментами: 513 отримували екстракт, 508 — плацебо. Добова порція містила в середньому 843 мг EGCG разом з іншими катехінами. Помірні або виразніші порушення хоча б одного печінкового показника виникли у 26 учасниць групи екстракту проти 4 у контролі; відношення шансів становило 7,0, 95% ДІ 2,4–20,3. Воно описує шанси, а не семикратний абсолютний ризик. Нормалізація після скасування й повторне підвищення після поновлення підтримують причинний зв'язок.
EFSA у висновку 2018 року пов'язала добавки з 800 мг EGCG на добу й вище з підвищенням трансаміназ і не змогла встановити надійно безпечну дозу концентрованих добавок. Це не гарантує безпеки 799 мг і не підтверджує початкової обіцянки «безпечного діапазону 400–600 мг». Звичайний настій і концентрат відрізняються складом, швидкістю надходження та режимом експозиції. Дані не дають підстав самостійно лікувати автоімунну хворобу екстрактом чи замінювати призначену терапію.
Нарешті, назва «антиоксидант» не усуває хімічних артефактів. Long та колеги показали утворення H₂O₂ після додавання EGCG та інших поліфенолів до поширених клітинних середовищ. Частина ефектів у культурі може відображати окисний стрес від продуктів реакції, а не специфічне пригнічення мішені. Особливо важливо відрізняти зменшення запальних маркерів унаслідок регуляції від зменшення через загибель клітин. Обмеження не знецінюють усіх експериментів, але вимагають обережності при перенесенні результатів на харчування людини.
Як читати висновок про EGCG
EGCG має відтворювані експериментальні взаємодії з ферментами й імунними сигнальними шляхами, а деякі моделі показують зміни ефекторних та регуляторних популяцій. Стабільні людські Treg, спрямоване деметилювання TSDR і клінічне поліпшення — окремі вимоги, які поки не зійшлися в одному доказовому ланцюгу. Негативні результати на первинних клітинах, відсутність користі в рандомізованому дослідженні та печінкові ризики належать до цієї картини нарівні з позитивними механістичними спостереженнями.
Практичний сенс літератури сьогодні — розуміти межі гіпотези, а не підбирати дозу «для Treg». Переконлива майбутня робота має пов'язати реальну експозицію з дією на мішень, стабільним клітинним станом і значущим результатом для пацієнта за прийнятної безпеки. Ані збільшення FOXP3, ані один аналіз цитокінів, ані висока концентрація у пробірці самостійно цього не забезпечують.
Часті питання
Чи доводить зростання FOXP3 появу корисних Treg?
Ні. В активованих людських клітинах FOXP3 буває тимчасовим. Потрібні стабільний стан і справжня супресорна функція; один маркер їх не замінює.
Чи знімає EGCG метильні мітки саме з FOXP3-TSDR?
Спрямоване деметилювання цієї ділянки в людських T-клітинах не встановлене. У прямій роботі Kehrmann значного впливу на TSDR і повноцінної регуляторної функції не виявили.
Чому мишачі результати відрізняються від людських клітин?
Відрізняються вихідні клітини, експозиція та критерії. Jurkat, мишачі лімфоїдні тканини й первинні людські клітини перевіряють різні ланки гіпотези.
Чи потрібно повністю пригнічувати mTOR для посилення Treg?
Ні. Первинне диференціювання й функція зрілих Treg мають різні вимоги. Втрата Raptor/mTORC1 у зрілій мишачій регуляторній лінії порушувала супресію.
Чи підтвердили випробування лікування розсіяного склерозу EGCG?
Дослідження 122 пацієнтів на глатирамеру ацетаті не показало переваги до 800 мг на добу за 18 місяців. Інше випробування Polyphenon E зупинили через печінкові порушення.
Чи можна назвати 400–600 мг EGCG безпечною добовою дозою?
Розглянуті дані не дають такої підстави. EFSA не встановила надійно безпечної дози концентратів; склад екстракту й умови приймання змінюють експозицію та ризик.
Чи варто приймати концентрат натще для кращого всмоктування?
Більша фармакокінетична експозиція не доводить більшої користі. Вона може посилити небажані ефекти; одноразове дослідження не підтверджує тривалої безпеки такого режиму.
Джерела
- Tea polyphenol (-)-epigallocatechin-3-gallate inhibits DNA methyltransferase and reactivates methylation-silenced genes in cancer cell lines.
- Mechanisms for the inhibition of DNA methyltransferases by tea catechins and bioflavonoids.
- Effects of dosing condition on the oral bioavailability of green tea catechins after single-dose administration of Polyphenon E in healthy individuals.
- Impact of 5-aza-2'-deoxycytidine and epigallocatechin-3-gallate for induction of human regulatory T cells.
- Induction of regulatory T cells by green tea polyphenol EGCG.
- Effects of epigallocatechin gallate on regulatory T cell number and function in obese v. lean volunteers.
- Role of conserved non-coding DNA elements in the Foxp3 gene in regulatory T-cell fate.
- mTORC1 couples immune signals and metabolic programming to establish T(reg)-cell function.
- Control of T(H)17/T(reg) balance by hypoxia-inducible factor 1.
- Novel immunoregulatory properties of EGCG on reducing inflammation in EAE.
- Green tea epigallocatechin-3-gallate mediates T cellular NF-kappa B inhibition and exerts neuroprotection in autoimmune encephalomyelitis.
- A receptor for green tea polyphenol EGCG.
- TLR4 signaling inhibitory pathway induced by green tea polyphenol epigallocatechin-3-gallate through 67-kDa laminin receptor.
- A pilot study to evaluate the safety and efficacy of an oral dose of (-)-epigallocatechin-3-gallate-rich polyphenon E in patients with mild to moderate ulcerative colitis.
- Epigallocatechin Gallate in Relapsing-Remitting Multiple Sclerosis: A Randomized, Placebo-Controlled Trial.
- Polyphenon E, non-futile at neuroprotection in multiple sclerosis but unpredictably hepatotoxic: Phase I single group and phase II randomized placebo-controlled studies.
- Effect of Green Tea Supplements on Liver Enzyme Elevation: Results from a Randomized Intervention Study in the United States.
- Artifacts in cell culture: rapid generation of hydrogen peroxide on addition of (-)-epigallocatechin, (-)-epigallocatechin gallate, (+)-catechin, and quercetin to commonly used cell culture media.
- Activation-induced FOXP3 in human T effector cells does not suppress proliferation or cytokine production
- Conversion of 5-methylcytosine to 5-hydroxymethylcytosine in mammalian DNA by MLL partner TET1
- The mTOR kinase differentially regulates effector and regulatory T cell lineage commitment
- Interleukin-2 signaling via STAT5 constrains T helper 17 cell generation
- Scientific opinion on the safety of green tea catechins