
Реверсивный T3: обмен, тканевая сигнализация и пределы диагностики
Химия rT3, DIO1/2/3, транспорт, рецепторы и митохондрии. Чем NTIS отличается от гипотиреоза, почему отношение FT3/rT3 не диагностирует блокаду и где заканчиваются данные о лечении и добавках.
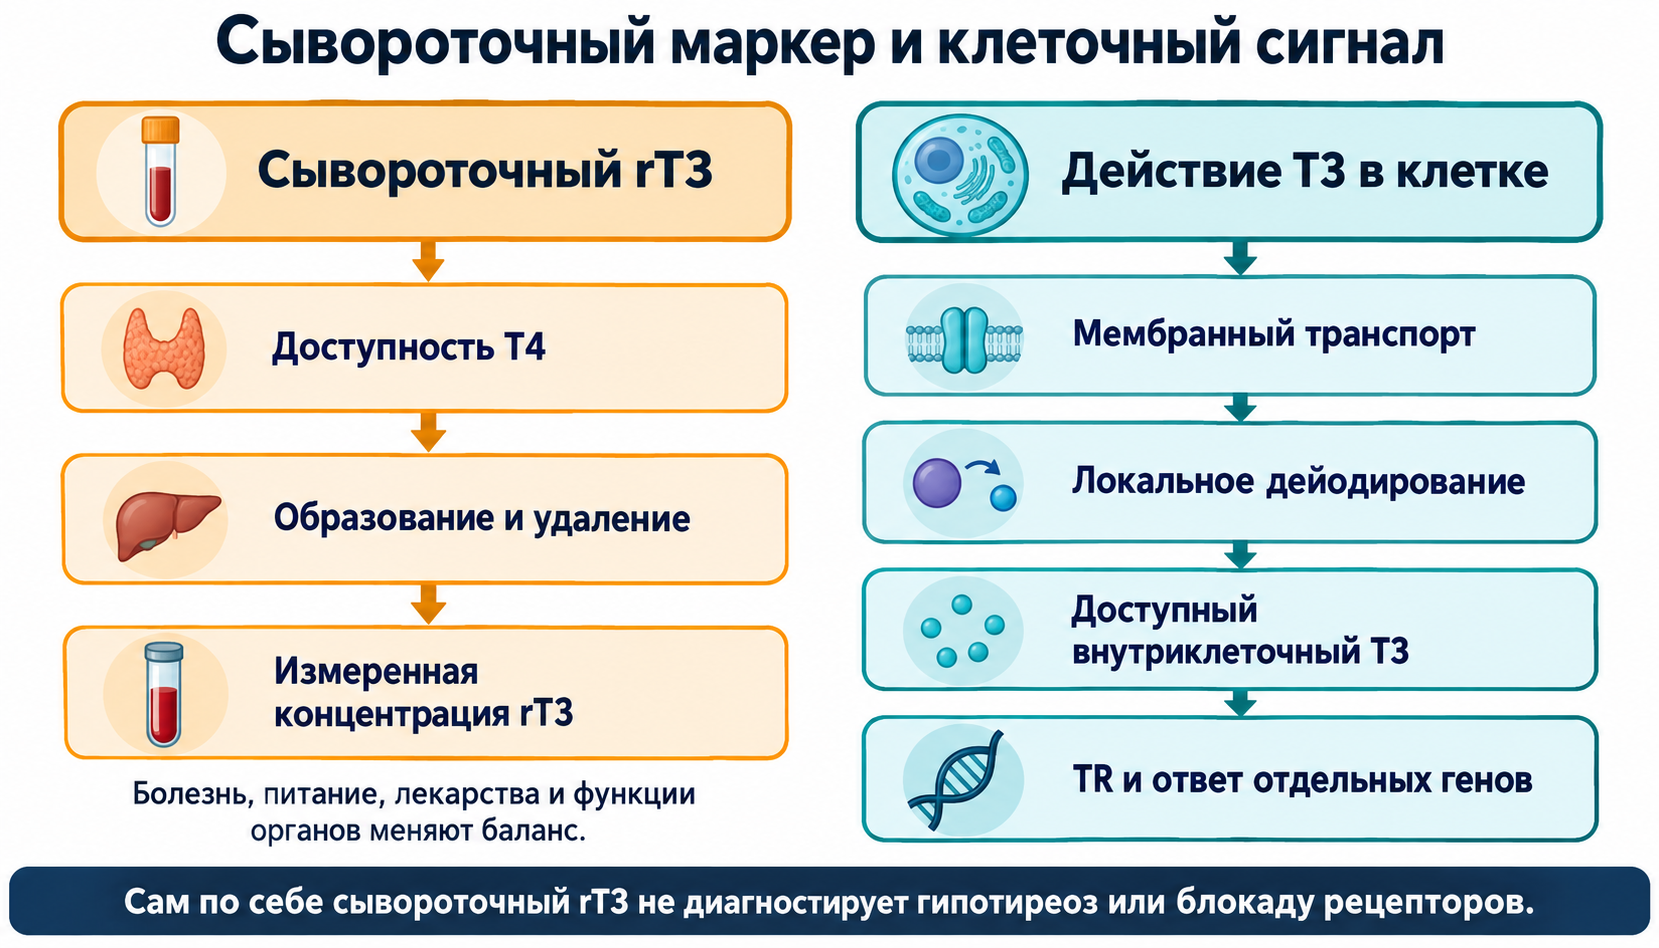
Реверсивный трийодтиронин, rT3, — йодтиронин, образующийся преимущественно при дейодировании тироксина. Он принадлежит к пути инактивации тиреоидных гормонов. Изменение его концентрации может отражать питание, заболевание, действие лекарств и скорость выведения. Это не равнозначно доказательству, что rT3 заблокировал рецепторы T3 и вызвал общий «тканевой гипотиреоз».
Тканевая доступность T3 действительно отличается от концентрации гормонов в крови: ее определяют переносчики, локальные дейодиназы, рецепторы и состояние клетки. Однако из этой физиологической сложности не следует, что один анализ rT3 измеряет все перечисленные процессы. Важно отдельно рассматривать химическое превращение, локальную сигнализацию, синдром нетиреоидного заболевания (NTIS) и установленную недостаточность щитовидной железы.
Положение йода меняет молекулу
T4, T3 и rT3 имеют общий дифенилэфирный каркас с аминокислотной боковой цепью. В принятой нумерации внутреннее кольцо содержит положения 3 и 5, наружное — 3′ и 5′. T4 — 3,5,3′,5′-тетрайодтиронин; T3 — 3,5,3′-трийодтиронин; rT3 — 3,3′,5′-трийодтиронин. T3 и rT3 являются позиционными конституционными изомерами, а не стереоизомерами. Их формула C15H12I3NO4 и молярная масса около 650,97 г/моль совпадают, но положение йода и биологические свойства различаются.
Удаление одного атома йода не означает одинаковую активацию: наружное дейодирование T4 дает T3, внутреннее — rT3. Пространственная форма зависит также от растворителя, протонирования и связывающего белка. Нельзя приписывать каждой молекуле универсальный угол колец или объем рецепторной полости без соответствующего структурного эксперимента. Corinti и соавт. (2021) исследовали газофазные депротонированные ионы с помощью спектроскопии и квантовых расчетов. Эта работа помогает аналитическому различению изомеров, но не устанавливает их водные pKa или клиническую блокаду рецептора.
Три дейодиназы и четыре маршрута
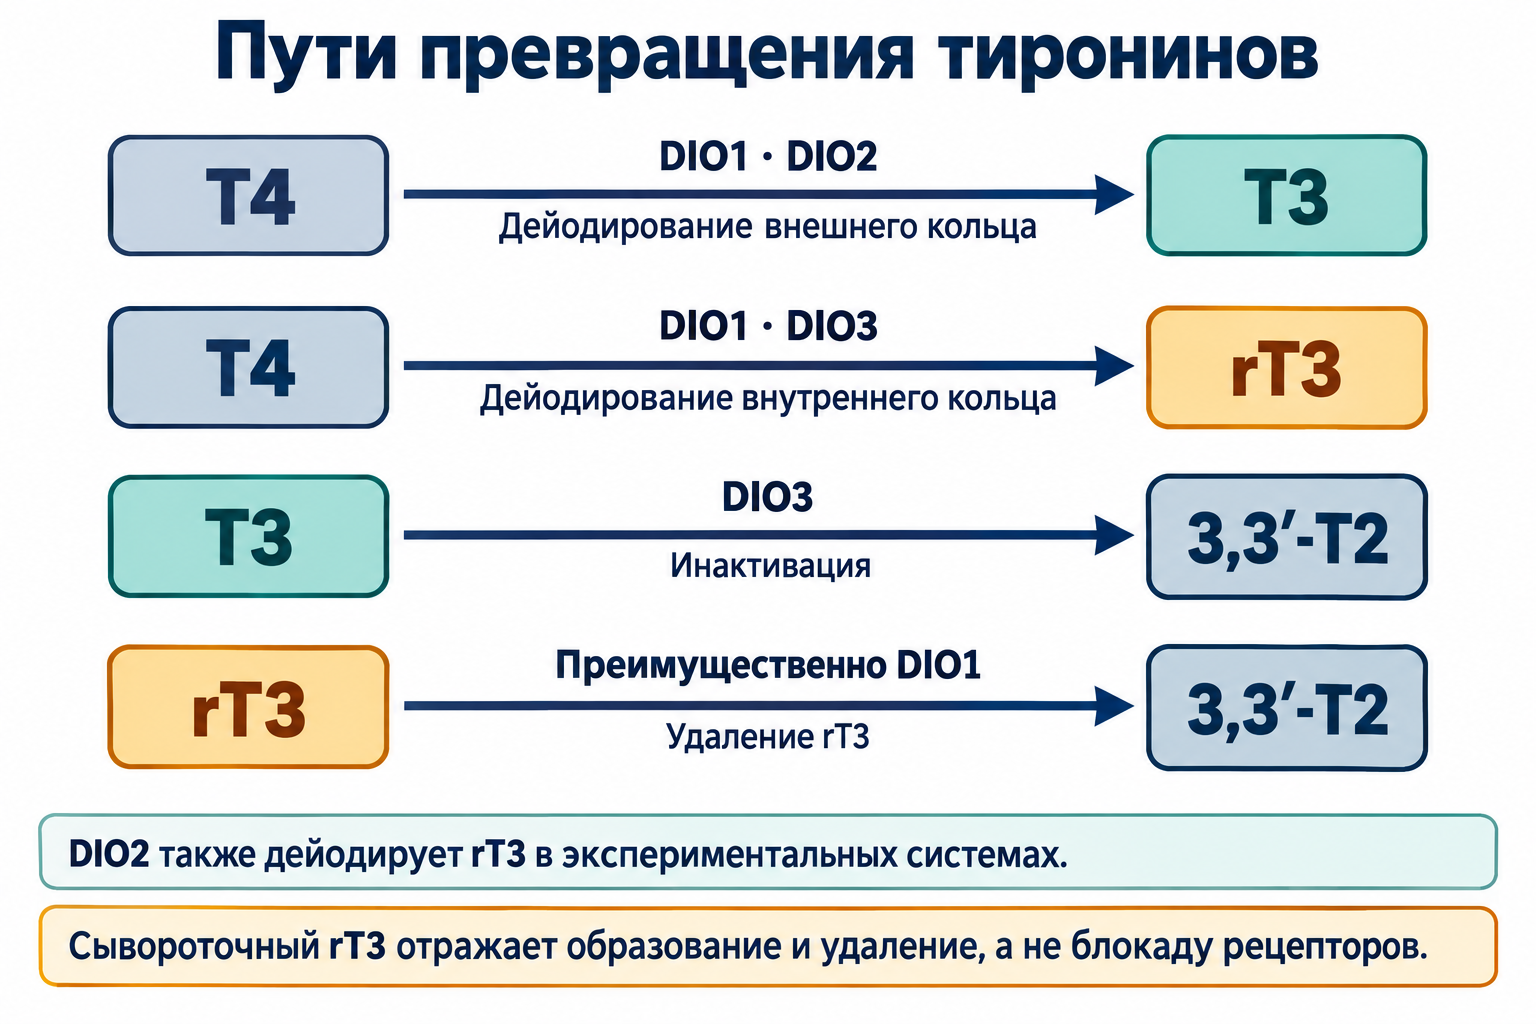
| Фермент | Основные превращения | Физиологический смысл |
|---|---|---|
| DIO1 / D1 | Наружное и внутреннее дейодирование; участие в T4 → T3, T4 → rT3 и особенно удалении rT3 | Печеночный, почечный и другие пулы; вклад в циркулирующий T3 и клиренс |
| DIO2 / D2 | T4 → T3; также дейодирование rT3 в экспериментальных системах | Локальная активация, в том числе мозг, гипофиз и бурая жировая ткань |
| DIO3 / D3 | T4 → rT3; T3 → 3,3′-T2 | Ограничение внутритканевого действия гормона, развитие и некоторые патологические состояния |
Экспрессия и активность не совпадают автоматически. D2 регулируется, в частности, убиквитинированием и оборотом белка; наличие субстрата влияет на локальный поток. D3 способен снизить доступность T3 непосредственно путем его инактивации: для этого не требуется предполагать антагонизм rT3. Схема «D3 только создает rT3, D1 только выводит его» слишком жесткая. Небольшой вклад в rT3 может вносить и секреция щитовидной железы (Chopra, 1976; Bianco и соавт., 2002).
Дейодиназы — селенопротеины. Селен участвует в синтезе каталитического селеноцистеина через специальную систему включения UGA/SECIS; это не обычное превращение пищевого селена непосредственно в активный фермент. Каталитический центр и тиоредоксиноподобная укладка обеспечивают восстановительное удаление йода. Для условного остатка R общий баланс можно записать:
Два восстановительных эквивалента нельзя заменять одним GSH в несбалансированной реакции. В модели с глутатионом возможна сбалансированная запись:
Это иллюстрация баланса, а не утверждение об универсальном доноре электронов всех трех ферментов. Rodriguez-Ruiz и соавт. (2022) исследовали редокс-механизм рекомбинантной D1, включая Cys124/Sec126 и восстановление GSH. Перенос этих результатов на все ткани, D2 и добавки NAC требует отдельных данных. Глутатионредуктаза использует NADPH для восстановления GSSG; пентозофосфатный путь важен, но не единственный источник NADPH. Ограничение углеводов не доказывает остановку этого пути: клеточные субстраты и альтернативные восстановительные системы сохраняются.
Кинетика: концентрация не равна потоку
Для одиночного субстрата приближенная модель Михаэлиса—Ментен имеет вид:
Здесь S — доступная ферменту концентрация субстрата, v — скорость реакции, Vmax — максимальная скорость в данных условиях, Km — концентрация при половине Vmax. Для дейодиназ параметры зависят от препарата фермента, восстановителя, клеточной среды и метода измерения. Табличное Km из опыта с искусственным восстановителем нельзя считать персональным порогом крови.
При действительно установленном конкурентном ингибировании кажущееся Km может содержать множитель 1 + I/Ki, где I — концентрация конкурента, Ki — его константа ингибирования. Сам вид этой формулы не доказывает, что физиологический rT3 ингибирует определенный фермент или рецептор. Нужны измеренные концентрации в нужном компартменте и данные о взаимодействии.
Полезна и простая модель сывороточного баланса:
C — концентрация, P — скорость образования вещества, V — условный объем распределения, k — константа удаления, CL — клиренс. При постоянных параметрах увеличение C может быть следствием большего образования, меньшего клиренса или обоих процессов. В историческом исследовании Chopra (1976) цирроз сопровождался сниженным клиренсом rT3. Одно значение анализа не позволяет вычислить индивидуальный период полувыведения или назначить срок «очистки». Реальный организм имеет несколько связанных пулов, переменные ферменты и белковое связывание.
Свободный гормон, транспорт и компартменты
TBG, транстиретин и альбумин связывают тиреоидные гормоны в плазме. Общая концентрация включает связанную и свободную фракции; доля свободного гормона зависит от белков, состояния пациента и аналитического метода. Внутриклеточная доступность определяется не только этой фракцией, но и транспортом, метаболизмом и выходом из клетки.
MCT8, кодируемый SLC16A2, переносит T3, T4, rT3 и некоторые T2. В опытах Friesema и соавт. (2003) с крысиным MCT8 в ооцитах Xenopus получены параметры микромолярного диапазона. Они не являются универсальной константой человеческого мозга. OATP1C1, SLCO1C1, имеет предпочтение к T4 и rT3; параметры Pizzagalli и соавт. (2002) относятся к конкретной экспериментальной системе. Вклад MCT10, LAT и других переносчиков также зависит от ткани.
Общий субстрат переносчика создает возможность взаимодействий, но не доказывает клинически значимую «пробку» rT3. Сравнение общего сывороточного rT3 с Km, измеренным при иной доступности субстрата, некорректно. Для конкуренции важны свободные концентрации, локализация, направление переноса и реальные эффекты в клетках.
TRα/TRβ и транскрипция
T3 связывается с ядерными рецепторами TRα и TRβ. Взаимодействие с RXR, элементами ответа TRE и хроматином регулирует экспрессию генов. Без лиганда в определенных контекстах участвуют корепрессоры NCoR/NCOR1 и SMRT/NCOR2, комплексы HDAC3 и TBL1. Агонист меняет лигандсвязывающий домен, включая положение спирали H12 и поверхность AF-2; коактиваторы семейства SRC/p160 с мотивами LXXLL и p300/CBP участвуют в последующей регуляции. Ответ различается для положительно и отрицательно регулируемых генов, рецепторных изоформ и типов клеток.
Структурные данные Wagner и соавт. (1995) и комплексы TRβ с T3 подтверждают механизм агонистической сигнализации. Они не изображают rT3, удерживающий H12 в блокирующем положении. Исторические эксперименты Wiersinga и соавт. (1982) с ядерными экстрактами животных не устанавливают антагонизм человеческих TR при обычной концентрации rT3.
Формула конкурентной занятости полезна как гипотетическая модель, если взаимодействие обоих лигандов действительно измерено:
L и I здесь — свободные концентрации агониста и подтвержденного конкурента у рецептора, Kd — соответствующие константы диссоциации. Подставлять общий сывороточный rT3 как I и выдуманное Kd значит заранее принять недоказанную гипотезу. Физиологически значимая блокада TR посредством rT3 и ее диагностика по отношению FT3/rT3 не установлены (Van Uytfanghe и соавт., 2023).
NTIS и настоящий гипотиреоз
При тяжелой болезни часто снижается T3; rT3 может повышаться, но бывает нормальным или сниженным. TSH часто не повышен соответственно низкому T3, а при длительном тяжелом состоянии может уменьшаться и FT4. При выздоровлении возможен временный подъем TSH. Печеночный клиренс, питание, лекарства, воспаление, центральная регуляция и тканевые дейодиназы меняются одновременно.
| Состояние | Типичная лабораторная связь | Ограничение |
|---|---|---|
| Первичный явный гипотиреоз | Высокий TSH, низкий FT4 | Болезнь, препараты и метод анализа учитываются вместе |
| Субклинический первичный гипотиреоз | Повышенный TSH при нормальном FT4 | Причина, стойкость изменения и клиническая ситуация важнее rT3 |
| Центральный гипотиреоз | Низкий FT4 с неадекватно низким или нормальным TSH | Иногда TSH слегка повышен, но биологически недостаточен; нужен гипофизарный контекст |
| NTIS | Часто низкий T3, вариабельный rT3, нормальный/низкий TSH | Не единый профиль и не доказательство блокады рецептора |
Нормальный TSH не описывает сигнализацию каждой клетки и не исключает центральный гипотиреоз. Но эта оговорка также не делает rT3 универсальным диагностическим решением (Persani и соавт., 2018). Антитела к тиреоидным антигенам помогают устанавливать аутоиммунную причину; их отсутствие не исключает любое заболевание щитовидной железы.
Гипофизарная D2 и рецепторы TRβ2 участвуют в обратной связи. Гипоталамические танициты, TRH, питание, лептин и воспаление меняют ось на разных уровнях. Нельзя объявлять гипофиз полностью защищенным от всех изменений дейодирования или объяснять любое нормальное TSH «обманом» со стороны rT3. В NTIS локальная концентрация гормонов может снижаться, сохраняться или увеличиваться в разных органах и стадиях (Fliers и Boelen, 2021).
D3-индукция при гипоксии через HIF-1 и снижение локального действия T3 показаны в экспериментальных системах (Simonides и соавт., 2008). Это важный тканевой механизм, отличающийся от рецепторной конкуренции. Человеческие наблюдения при критической болезни также поддерживают изменения активации и инактивации гормонов, но не общий диагноз по единственному сывороточному маркеру (Peeters и соавт., 2003). Редкий потребительский гипотиреоз при гемангиомах с высокой D3 — отдельное подтвержденное состояние (Huang и соавт., 2000).
Органы и митохондрии: реальные эффекты T3
В сердце T3 влияет на кальциевый обмен, сократительные белки, частоту и сосудистое сопротивление. SERCA2a, ATP2A2, — насос возврата кальция в саркоплазматический ретикулум, а не рецептор. Фосфоламбан регулирует его работу. Изменения MYH6/MYH7 зависят от вида: человеческий желудочек нельзя описывать через соотношения миозина у грызунов. Вклад HCN-каналов, адренергической чувствительности и диастолического расслабления объясняет часть сердечного фенотипа гипотиреоза. Брадикардия сама по себе не определяет rT3-синдром.
В печени тиреоидная сигнализация связана с LDLR, обменом холестерина и желчных кислот, взаимодействиями TR с PPAR/LXR и энергетическим обменом. Регуляция CYP7A1 различается между моделями и человеком. В мышцах изменяются субстратное использование, GLUT4, волоконный состав и потребность в ATP; в нервной системе особенно важны развитие и миелинизация. Утомляемость, «туман», мышечные боли и изменения массы неспецифичны. Нельзя выводить из них установленное подавление всех перечисленных генов rT3 или гарантированную прибавку массы при любом дефиците энергии (Mullur и соавт., 2014).
T3 регулирует митохондриальный биогенез через PGC-1α, ядерные респираторные факторы и TFAM. Здесь NRF2/GABP, ядерный респираторный фактор 2, необходимо отличать от антиоксидантного NFE2L2, также часто называемого NRF2. TFAM участвует в организации и транскрипции mtDNA; согласованная экспрессия ядерных и митохондриальных белков необходима для дыхательной цепи.
Протонодвижущая сила включает электрический потенциал и градиент pH. Перенос электронов, потребление кислорода и ATP-синтаза функционально связаны; отдельные изменения не означают автоматически «коллапс» всех митохондрий. Образование ROS зависит от участка цепи и условий, в том числе комплексов I и III. Путь p43, укороченного TRα1, исследован в митохондриях и экспериментальных клетках (Casas и соавт., 1999; Wrutniak-Cabello и соавт., 2018). Он не доказывает rT3-индуцированное падение PGC-1α на фиксированный процент у пациентов. Связь редокс-состояния с энергетикой подробнее рассмотрена в материале о R-альфа-липоевой кислоте и пируватдегидрогеназе; наличие такого механизма не устанавливает лечение rT3.
В регуляцию субстратного обмена входят также CPT1A, обеспечивающая перенос длинноцепочечных жирных кислот в митохондрии через карнитиновую систему, и тканезависимые изменения UCP3. Это не означает полной остановки β-окисления. Креатинфосфатная система буферизует мышечные потребности в ATP; ее роль не превращает мышечную боль в специфический тиреоидный тест. Нейротрофические пути, включая BDNF, обсуждаются в экспериментальной тиреоидной биологии, но не дают измеренного универсального дефицита у человека с высоким rT3. Цинк и медь участвуют в широком обмене и должны оцениваться по реальной потребности; их комбинация не подтверждена как специфическое восстановление D1.
Болезнь, стресс, питание и препараты
LPS/TLR4, клетки Купфера, цитокины, NF-κB и STAT3 могут участвовать в перестройке печеночного и системного обмена при воспалении. Острые и длительные ответы различаются. Гипоксия, органная недостаточность и инфекция могут менять образование и удаление гормонов. Из этого нельзя вывести универсальные проценты роста rT3 при ожирении или апноэ сна, обязательное действие эндотелина-1 на каждый орган или доказанный эффект CPAP через «очистку rT3».
Глюкокортикоиды влияют на тиреоидную ось и конверсию в зависимости от дозы и состояния. Измерение кортизола без контекста не подтверждает постоянное подавление промотора DIO1 или обязательное включение DIO3. Сон, циркадный ритм и психологический стресс заслуживают оценки самостоятельно. Материал об ашваганде, витанолидах и HPA-оси объясняет эту отдельную систему; влияние растения на стрессовые показатели не доказывает снятие тиреоидной блокады.
Голодание и энергетический дефицит способны снизить T3 и изменить rT3. Исследования питания у людей показывают роль энергии и состава рациона (Danforth и соавт., 1979). Порог «меньше 50 г углеводов отключает D1» и обязательная схема возврата 100–250 г не следуют из этих наблюдений. Нужно отличать вынужденное недоедание, тяжелую болезнь, плановое ограничение энергии и индивидуальный пищевой контекст. Глюконеогенез, редокс-метаболизм и доступность NADPH не сводятся к числу граммов сахара.
| Воздействие | Возможная связь | Что нельзя заключить |
|---|---|---|
| Амиодарон | Йодная нагрузка, тиреоидные эффекты и изменение дейодирования | Любое изменение rT3 не означает необходимость отмены препарата |
| Пропилтиоурацил | Подавление синтеза и преимущественно D1-зависимой конверсии | Не универсальный необратимый блок всех дейодиназ |
| Глюкокортикоиды, высокие дозы пропранолола | Контекстное снижение T4 → T3; центральные эффекты у части препаратов | Не все бета-блокаторы действуют одинаково |
| Дофамин при интенсивной терапии | Может подавлять TSH | Не специфическое доказательство клеточной блокады rT3 |
| Металлы и некоторые органические загрязнители | Экспериментальная токсикология тиреоидной системы | rT3 не обосновывает хелатирование или «детокс-протокол» |
Аналитика и арифметика отношения
Иммуноанализы зависят от антител, перекрестной реактивности, матрицы и возможных интерференций. Нельзя объявлять фиксированную долю всех результатов ошибочной. LC–MS/MS позволяет специфичное измерение при валидированном методе, но изомеры T3/rT3 имеют одинаковую массу. Нужны подтвержденное различение, контроль матричных эффектов, калибровка, внутренние стандарты и пределы количественного определения. Хроматографическое разделение широко применяется; фрагментация и ионная подвижность также могут давать аналитическую информацию. Масс-спектрометрия не означает отсутствие любых интерференций.
Референсный интервал лаборатории зависит от метода и популяции; он не является универсальным «оптимумом». Не установлены общие лечебные пороги rT3 или отношения FT3/rT3 (Van Uytfanghe и соавт., 2023). Burmeister (1995) показал ограничения rT3 для различения состояний у госпитализированных пациентов.
Особенно часто смешиваются свободный T3 в pg/mL и общий rT3 в ng/dL:
Для иллюстрации при FT3 = 2,4 pg/mL и rT3 = 24 ng/dL индекс J = 10. Но физическое молярное отношение свободного T3 к общему rT3 равно 2,4/240 = 0,01, поскольку молярные массы совпадают:
Это не «10% активного гормона» и не отношение двух свободных внутриклеточных лигандов. Если оба общих гормона измерены в одинаковых массовых единицах, их отношение совпадает с молярным, но по-прежнему не измеряет рецепторную занятость или скорость дейодирования. Цифры 15, 20 или 25, используемые как границы такого индекса, не приобретают диагностическую валидность от правильного деления.
Лечение: различать болезнь и суррогат
Левотироксин — стандартная заместительная терапия установленного гипотиреоза. T3 не превращается в rT3 путем простого удаления йода, но это не основание заменить всем T4 на T3. Прекращение LT4 не удаляет немедленно тканевые и белково-связанные пулы T4. Универсальная «промывка» на несколько недель с возрастающими дозами T3 не подтверждена как лечение rT3-блокады.
Консенсус Jonklaas и соавт. (2021) рассматривает ограниченные ситуации обсуждения комбинации LT4/LT3 при сохраняющихся жалобах, после оценки других причин. Это не выбор по произвольному индексу rT3; польза в испытаниях не была последовательной. Избыточное действие гормона связано с сердечными и костными рисками; беременность и сопутствующие заболевания меняют решения. При NTIS в критической болезни рутинное назначение тиреоидных гормонов не имеет установленного преимущества, тогда как существовавший гипотиреоз требует отдельного ведения (Jonklaas и соавт., 2014).
Добавки, растения и редокс-исследования
Дефицит селена и железа может иметь значение для тиреоидной биологии, но функции различаются: селенопротеины участвуют в дейодировании, железозависимая тиреопероксидаза — в синтезе гормонов. Это не устанавливает универсальную дозу селена или единственный целевой ферритин для «снятия rT3». Избыток микроэлементов также нежелателен. Железо может мешать всасыванию LT4; лекарственные взаимодействия важнее предположения, что любой комплекс усиливает D1 (Schomburg, 2012; Duntas, 2010).
Существует человеческое рандомизированное исследование NAC: Vidart и соавт. (2014) включили 67 пациентов с острым инфарктом миокарда и наблюдали гормональные и окислительные показатели в течение 48 часов. Результаты поддерживают редокс-гипотезу в этом остром контексте. Они не доказывают лечение хронической усталости пероральной схемой NAC, улучшение клинических исходов или устранение рецепторной блокады. Lehnen и соавт. (2020) отдельно исследовали D3 и окислительный стресс после инфаркта у крыс. Нельзя объединять эти модели в подтвержденный амбулаторный протокол.
| Средство или направление | Что действительно изучалось | Предел переноса |
|---|---|---|
| Селен | Тиреоидная биология и, например, аутоантитела в исследовании Gärtner и соавт. (2002) | Не лечение диагностированной rT3-блокады |
| Ашваганда | Небольшое испытание субклинического гипотиреоза, Sharma и соавт. (2018) | Тиреоидные индексы, не доказанный клиренс rT3 |
| Гуггул | PTU-модель гипотиреоза у мышей, Panda и Kar (2005) | Не человеческая эффективность или дозировка |
| R-ALA, силимарин, артишок | Отдельные редокс- и метаболические механизмы | Не установленная терапия rT3 или обязательное усиление желчного выведения |
| NAC | Острый инфаркт у людей и отдельные экспериментальные модели | Не универсальный курс при усталости |
Холод, свет, пептиды, эпигенетика и кишечник
Холод может активировать симпатическую β-адренергическую/cAMP/PKA-сигнализацию, D2 и UCP1 в бурой жировой ткани. Это локальная термогенетическая адаптация, а не доказанный способ очищать кровь от rT3. Свет через меланопсиновые клетки сетчатки и супрахиазматическое ядро влияет на циркадный ритм. TSH обычно имеет ночной подъем; описание обязательного утреннего максимума неверно. Из циркадной физиологии нельзя вывести универсальное лечение rT3 светом заданной освещенности.
MOTS-c — митохондриально кодируемый пептид из 16 аминокислот. В работе Lee и соавт. (2015) его метаболические эффекты связаны с фолатным/пуриновым обменом и AMPK в экспериментальных системах. Humanin содержит 24 аминокислоты; Guo и соавт. (2003) исследовали взаимодействие с BAX и апоптоз. Внутриклеточный путь BAX следует отделять от предложенных внеклеточных рецепторных комплексов. Эти исследования не подтверждают инъекционные схемы для DIO1 или rT3 у людей.
Метилирование DNA, DNMT и регуляция хроматина могут менять экспрессию. Но прием SAMe, B12 или 5-MTHF не является адресным «деметилированием» DIO1/SLC16A2. Наличие метильного донора не доказывает снятие репрессии нужного гена. Для такого вмешательства требуются прямые данные о ткани, мишени и клиническом результате.
Печеночные UGT и SULT образуют конъюгаты тиреоидных гормонов; кишечная деконъюгация может участвовать в энтерогепатическом обмене. Вклад микробиоты зависит от субстрата и состояния, а фиксированная доля «20–30% клиренса rT3» не подтверждена здесь. rT3 не является стероидом. SIBO, отдельные пробиотические штаммы, глутамин и цинк-карнозин не образуют проверенный протокол его выведения.
Генетика и границы персонализации
Редкие патогенные варианты MCT8 вызывают тяжелый нейроразвитийный фенотип с нарушением транспорта гормонов и характерными периферическими изменениями (Friesema и соавт., 2004). Это не распространенная приобретенная конкуренция rT3. Редкие нарушения других переносчиков также нельзя заменять интерпретацией распространенных SNP по неопроверенным процентам снижения активности.
DIO2 Thr92Ala, rs225014, изучается как модификатор. Panicker и соавт. (2009) описали ассоциацию с ответом в анализе исследования, но потребовали воспроизведения. Вариант не является самостоятельно утвержденным выбором LT3, объяснением любой усталости или показанием к «разблокирующему» нутрицевтику. Генетика не отменяет биохимические, клинические и аналитические ограничения.
От симптомов к клиническому вопросу
При сохраняющихся жалобах сначала важен контекст: установленная тиреоидная болезнь, недавнее тяжелое заболевание, динамика симптомов, питание, лекарства и способ измерения. TSH и FT4 интерпретируются вместе с этим контекстом; при подозрении на центральное нарушение необходима оценка гипофизарной оси, а не самостоятельный вывод по rT3. Временные изменения во время болезни могут потребовать переоценки после восстановления. В зависимости от симптомов рассматриваются также анемия, нарушения сна, депрессивные состояния и другие причины утомляемости. Такая последовательность не является новым валидированным протоколом: она объясняет, почему диагноз и цель вмешательства должны предшествовать попытке изменять суррогат. Улучшение самочувствия или одного анализа не доказывает предполагаемый рецепторный механизм.
Как читать доказательства
Материал подготовлен как научный повествовательный разбор с целевой проверкой спорных механизмов, идентификаторов и отдельных результатов 8 октября 2026 года. Использованы первичные статьи, доступные авторские обзоры, записи PubMed, страницы издателей и структурная база. Не проводились систематический поиск, собственная оценка GRADE или внешнее рецензирование. Некоторые полные тексты были недоступны; использованы доступные метаданные и аннотации. Поэтому точные методы и величины из недоступного полного текста не приписываются проверенным результатам.
rT3 полезен для понимания метаболизма гормонов и некоторых специальных клинических ситуаций. Он не является универсальным измерителем тканевой энергии. Доказанная локальная инактивация T3, различия между органами и диагностические ограничения TSH требуют более точного рассуждения, а не замены всей тиреоидной диагностики одним отношением или набором добавок.
Частые вопросы
Повышенный rT3 означает гипотиреоз?
Нет. Образование и клиренс меняются при болезни, питании и действии препаратов. Диагноз оценивают по клинической ситуации, TSH и FT4 с учетом центральных нарушений.
Есть ли универсальный нормальный индекс FT3/rT3?
Нет валидированного общего лечебного порога. Смешение свободного и общего гормона и разных единиц дополнительно ограничивает интерпретацию.
Нужно ли прекращать LT4 для снижения rT3?
rT3 сам по себе не обосновывает отмену заместительной терапии или переход на T3. Решение относится к конкретной тиреоидной болезни и клиническому контексту.
Разве тканевая доступность T3 не может снижаться?
Может: например, локальная D3 и транспорт меняют доступность гормона. Это отличается от неподтвержденной общей рецепторной блокады rT3.
Источники
- Chopra IJ. An assessment of daily production and significance of thyroidal secretion of 3,3′,5′-triiodothyronine (reverse T3) in man. J Clin Invest. 1976;58:32–40.
- Bianco AC, Salvatore D, Gereben B, Berry MJ, Larsen PR. Biochemistry, cellular and molecular biology, and physiological roles of the iodothyronine selenodeiodinases. Endocr Rev. 2002;23:38–89.
- Wiersinga WM, Chopra IJ, Solomon DH. Specific nuclear binding sites of triiodothyronine and reverse triiodothyronine in rat and pork liver: similarities and discrepancies. Endocrinology. 1982;110:2052–2058.
- Wagner RL, Apriletti JW, McGrath ME, West BL, Baxter JD, Fletterick RJ. A structural role for hormone in the thyroid hormone receptor. Nature. 1995;378:690–697.