
Постбиотиктер және бактерия жасуша қабырғасы: MDP, NOD2 және иммундық әсерлердің шегі
Бактерия қабырғасының құрамы, MDP-нің NOD2-ге жетуі, сигналдық және генетикалық жолдар мен нақты инактивтелген препараттарға қатысты клиникалық деректердің шегі туралы кәсіби шолу.
Инактивтелген бактерия химиялық сигналдар жиынтығы болып қала береді: оның пептидогликаны, тейхой қышқылдары және липопротеиндері микроб көбеймесе де, иесінің жасушаларымен әрекеттесе алады. Бірақ жасуша қабырғасының фрагментін NOD2 рецепторының тануы — түсіндірудің бір ғана деңгейі; бұл кез келген өлі бактерия ұнтағын пайдалы етпейді және тазартылған мурамилдипептидті дәлелденген постбиотикке айналдырмайды. Кәсіби бағалау үшін өнімнің құрамын, компоненттерінің жасушалық компартменттерге жетуін, адамдағы дәлелденген нәтижелерді және тиісті популяциядағы қауіпсіздігін байланыстыра қарастыру қажет.
1. Постбиотик деп нақты нені атайды?
2021 жылғы ISAPP сарапшылық консенсусы постбиотикті иесінің денсаулығына пайда әкелетін инактивтелген микроорганизмдер және/немесе олардың компоненттерінен жасалған препарат деп анықтайды. Жасуша құрылымдарымен бірге метаболиттер болуы мүмкін, бірақ тазартылған метаболиттің өзі бұл анықтамаға сәйкес келмейді. Бастапқы микроорганизмді, инактивация әдісін, соңғы өнімнің құрамы мен стандартталуын және пайдалы әсерді сипаттау қажет. Сондықтан «инактивтелген», «лизат» және «постбиотик» толық синонимдер емес: пайдасы дәлелденбеген лизат зерттеу нысаны болып қалады. Химиялық жолмен синтезделген тазартылған MDP — құнды молекулалық зонд не дәрілік қосылыс, бірақ консенсус бойынша автоматты түрде постбиотикалық препарат емес.
Инактивация тіршілік қабілеті сенімді тексерілген кезде көбеюге жол бермейді, алайда өздігінен термостабильділікті, эпитоптардың өзгермеуін, биогенді аминдердің не пирогенділіктің болмауын немесе ауыр иммундық тапшылықта толық қауіпсіздікті қамтамасыз етпейді. Қыздыру, жоғары қысым және ферменттік лизис бүтін жасушалардың, қабырға қалдықтарының, ДНҚ мен еритін заттардың әртүрлі арақатынасын тудырады. Кептірілген өнімнің қалдық тіршілік қабілеті, бөлшектер саны, штамм сәйкестігі және нақты партия белсенділігі бағаланады. «10⁹ инактивтелген жасуша» тірі пробиотиктің 10⁹ КТБ-сымен немесе тазартылған MDP миллиграмымен тең емес.
| Нысан | Құрамында не бар | Атауының өзі нені растайды |
|---|---|---|
| Тірі пробиотик | Тіршілікке қабілетті, сәйкестендірілген штамм | Тек осы класқа жататынын; пайдасы штамм мен көрсетілім бойынша тексеріледі |
| Инактивтелген препарат | Тірі емес бүтін жасушалар, фрагменттер, кейде метаболиттер | Валидтелген инактивациядан кейін көбеюдің болмауын; пайдасы әлі дәлелденуі тиіс |
| Тазартылған MDP немесе липотейхой қышқылы | Химиялық құрамы анық компонент | Құрамы мен рецепторлық механизмді зерттеу мүмкіндігін, бірақ клиникалық пайданы емес |
| Пребиотикалық субстрат | Микробтар таңдап пайдаланатын зат | Басқа механизм; инактивтелген жасуша препараты емес |
2. Жасуша қабырғасының архитектурасы және қолжетімді молекулалық үлгілер
Пептидогликан (муреин) бактериялық мембрананы қоршайтын тор түзеді. Оның гликан тізбектері β-1,4-гликозидтік байланыспен жалғасқан алма-кезек N-ацетилглюкозаминнен (GlcNAc) және N-ацетилмурам қышқылынан (MurNAc) тұрады. MurNAc-тың лактил тобына амидтік байланыспен қысқа пептидтік сабақша жалғанады. Әртүрлі бактерияларда сабақшаның үшінші орнында мезо-диаминопимелин қышқылы (meso-DAP) немесе L-лизин болады; D-аминқышқылдары мен пептидаралық көпірлер бұл құрылымды иесінің ақуыздарынан ерекшелендіреді. Транспептидазалар көрші сабақшаларды айқастыра жалғап, әдетте D-Ala–D-Ala ізашарынан соңғы D-Ala-ны алып тастайды. Тізбек ұзындығы, айқас байланыс түрі және модификация дәрежесі түрлер арасында айтарлықтай өзгеше: барлық жасуша қабырғасын NOD2 лигандының бірдей дозасы деп санауға болмайды.
Көптеген грамоң бактерияларда пептидогликан қалың болып, аниондық тейхой қышқылдарымен байланысады. Қабырғалық тейхой қышқылы (WTA) жасуша қабырғасына бекіген, ал липотейхой қышқылында (LTA) мембранаға кіріккен липидтік якорь бар; олардың қайталанатын бірліктерінде жиі глицеролфосфат не рибитолфосфат кездеседі. Dlt жүйесі арқылы D-аланилдену беткі теріс зарядты азайтып, катиондық микробқа қарсы пептидтердің байланысуын өзгертеді. Алайда LTA құрылымы мен ацилденуі, сондай-ақ липопротеин қоспалары TLR2-ге тәуелді жүйелердің жауабына әсер етеді; барлық LTA IL-10 туғызып, «қабынуды басады» деу дұрыс емес. Тазартылған фракцияның иммуностимуляциялық нәтижесі әсіресе препарат тазалығына тәуелді.
Грамтеріс бактерияларда пептидогликан қабаты жұқа және ішкі-сыртқы мембраналардың арасындағы периплазмада орналасады. Сыртқы мембрананың сыртқы қабатында A липиді, өзек және бар болса O-антигені бар липополисахарид болады. A липидін TLR4–MD-2 кешені таниды, ал оның ацилденуі белсенділігін өзгертеді. Кей бактерияларда Браун липопротеині сыртқы мембрананы қабырғамен байланыстырады, бірақ тексермей бұл архитектураны барлық грамтеріс түрлерге жалпылауға болмайды. Тиісті реттіліктегі meso-DAP бар пептидогликан фрагменттері NOD1-ді белсендіре алады; ең аз танылатын мотив әдетте iE-DAP деп аталады. Бұл бөлек жол, MDP–NOD2-нің баламасы емес.
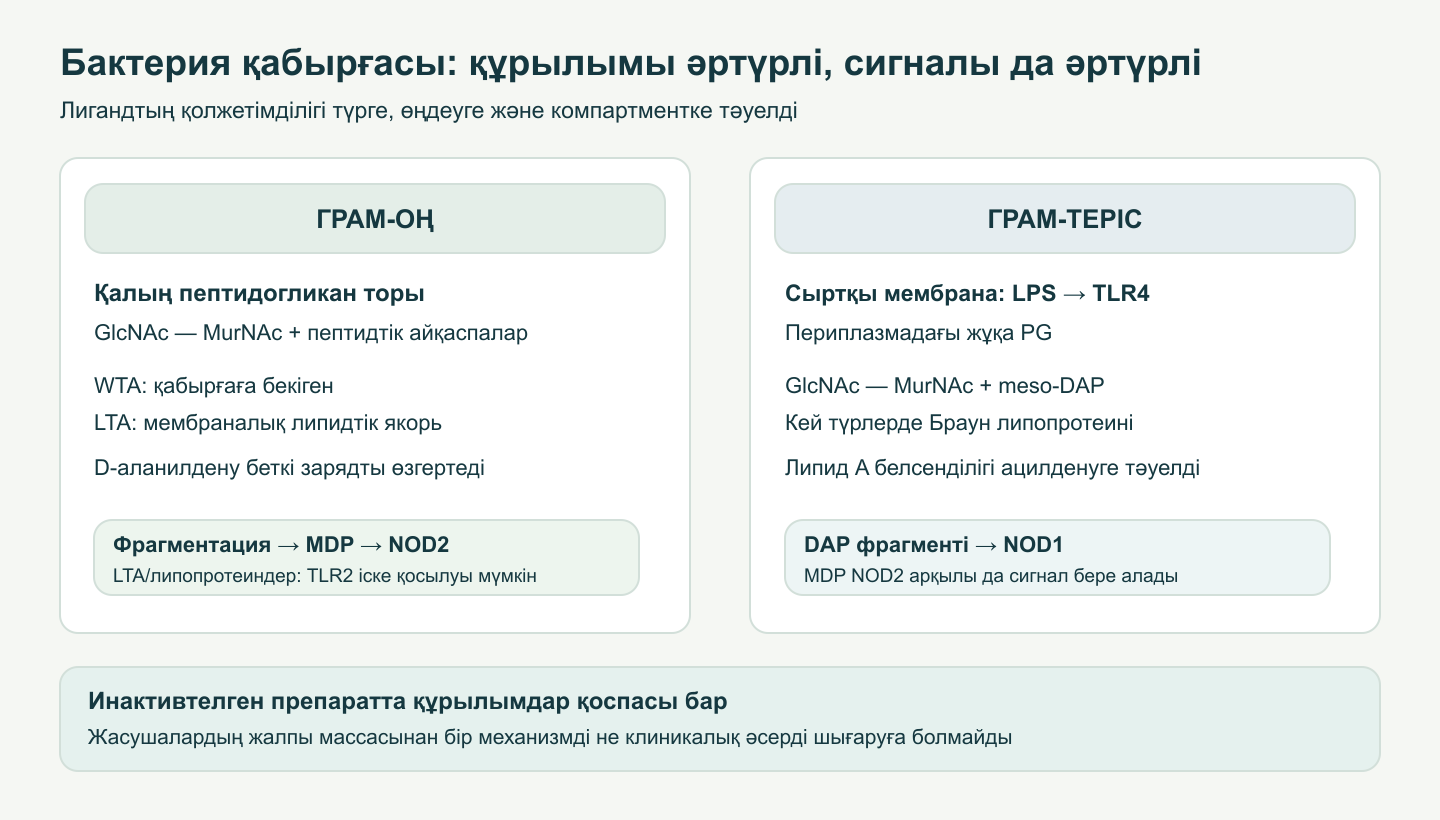
Өсу мен өлу кезінде бактерияның өз ішінде де қабырға ыдырайды: автолизиндер, транспептидазалар, амидазалар мен литикалық трансгликозилазалар әртүрлі ұзындықтағы мурамилпептидтер түзеді. Иесінің лизоцимі MurNAc пен GlcNAc арасындағы β-1,4 байланысын үзеді; PGLYRP2 N-ацетилмурамоил-L-аланин-амидаза белсенділігімен пептидті қанттан ажыратады. Демек, инактивация және ас қорыту өңдеуі лигандтар үлестірімін өзгертеді. Тұтас саккул цитозольдегі NOD2-мен тікелей байланыспайды: қолжетімді фрагмент түзіліп, мембрананың тиісті жағына жетуі керек.
Қабырға құрамы лиганд дозасын қалай өзгертеді
Пептидогликан сабақшасы бактерияның цитоплазмалық мембранасындағы липид тасымалдағышта құралады. Липид II-дегі MurNAc-пентапептидке GlcNAc қосылады; трансгликозилазалар қант тізбектерін ұзартады, ал транспептидазалар соңғы D-аланинді алып, көлденең жалғаулар түзеді. Сондықтан жетілген қабырғада тетра-, три- және басқа пептид фрагменттерінің қоспасы болады. Механикалық ұсақтау, қыздыру және гидролиз тіпті бір штамнан да әртүрлі мурамилпептидтер жиынтығын береді. Қолжетімді MDP молекулаларының санын жалпы құрғақ биомассадан аналитикалық өлшеусіз және қайталанымдар, айқас жалғаулар мен ыдырау дәрежесін ескермей есептеу мүмкін емес.
Грампозитивті WTA қабырғаға күрделі жалғағыш арқылы бекіген, ал LTA липидтік якорь арқылы мембранаға кіріккен. Микроб «өлтірілгеннен» кейін WTA, LTA, липопротеин фрагменттері және цитоплазмалық ДНҚ бір препаратта қатар болуы мүмкін. Иммундық әсерді арнайы NOD2-мен түсіндіру үшін тазартылған MDP, болжамды лигандты алып тастау/инактивациялау, NOD2 жоқ жасушалар немесе генді толықтыру сияқты бақылау тәжірибелері пайдалы. Бактериялық лизаттан кейін IL-6-ның жай ғана көтерілуі рецепторды анықтамайды: жауапқа TLR2, TLR4, TLR9 және басқа сенсорлар қатысуы мүмкін. Бұл әсіресе грамтеріс жасушалардан жасалған препараттар үшін маңызды, өйткені белсенді A липидінің қоспасы нәтижені түсіндіруді өзгертеді.
Ішек арқылы өту — көп сатылы үдеріс
Ауыз арқылы қабылданған дозамен алдымен асқазан қышқылдығы, протеазалар, өт, шырыш және микробтар мен иесінің ферменттері әрекеттеседі. Пептидогликан бір шағын молекуладай ерімейді: бөлшектердің өлшемі әртүрлі, олар шырышта ұсталып қалуы немесе тінге байланысты эпителий арқылы фагоциттермен жанасуы мүмкін. Энтероцитте PepT1 сәйкес шағын пептидтік субстраттарды тасымалдайды, тұтас жасуша қабырғасын емес. Фагоцит ішкен бөлшек фагосомада болып, тиісті лиганд цитозольдік сигналға қатысуы үшін өңделуі керек. Ішек саңылауындағы концентрация, жасуша ішіндегі қолжетімділік және плазмадағы концентрация — үш түрлі шама. Оларды өлшемей, химиялық құрамға қарап әдеттегі тағам дозасы адамда NOD2-ні белсендіреді деп қорытынды жасауға болмайды.
3. MDP: химиясы, тасымалы және препарат нұсқалары
Канондық мурамилдипептид — N-ацетилмурамил-L-аланил-D-изоглутамин. MurNAc қанты мен екі аминқышқыл орны оны иесінің көптеген молекулаларынан ажыратады. Жирарден мен Инохара тәжірибелерінде MDP NOD2 танитын ортақ ең аз мотив болып шықты, ал NOD1 DAP бар пептидтерге басым жауап берді. Стереохимия мен амид тобының алмастырылуы биологиялық белсенділікті едәуір өзгертеді, бірақ басқа конфигурациядағы кез келген аналогты «толық инертті» деу шектен тыс; нәтиже жүйе мен концентрацияға байланысты. MDP — пептидогликан мотиві, бактерия жасушасының барлық биологиялық белсенділігінің толық сипаттамасы емес.
Ішек саңылауындағы шағын фрагмент пептид тасымалдағыштармен әрекеттесуі мүмкін. hPEPT1/SLC15A1 MDP-ні тасымалдайтыны және бұдан кейін тәжірибелік эпителий жүйелерінде NF-κB/IL-8 жауабы туатыны көрсетілген. PepT1 протон градиентін пайдаланады; оның экспрессиясы әдетте аш ішекте жоғары, ал колит кезінде тоқ ішекте де пайда болуы мүмкін. Бұл қабылданған MDP-нің бәрі PepT1 арқылы өтеді, миелоидты жасушаларға жетеді немесе қабынуды әрдайым күшейтеді деген сөз емес. Эндоцитоз, жасуша бөлшектерінің фагоцитозы және эндолизосомадағы жасушаішілік ыдырау да ықтимал. SLC15A3/A4 тұқымдасы микроб пептидтерін өңдеуге және жасушаішілік сигналға қатысады, бірақ әр макрофагтағы MDP үшін міндетті жалғыз экспорттаушы рөлі SLC15A4-ке тән деу дұрыс емес; SLC15A4–TASL эндолизосомалық TLR7–9/IRF5 жолында да қызмет етеді. Компартментті тәжірибеде анықтау керек.
Синтетикалық мурамилпептидтер MDP-ден және бір-бірінен ерекшеленеді. Глюкозаминилмурамилдипептид (GMDP) мурамилпептидке GlcNAc қосады; ромуртид пен мифамуртидтің өзіне тән липофильдік модификациялары/жеткізу жүйелері бар. Липосомалық мифамуртид — химиятерапиямен бірге онкологияда зерттелген мурамилтрипептид-фосфатидилэтаноламиннің дәрілік формасы; оны тағамдық постбиотикалық қоспа деп сипаттауға болмайды. Мурамил фрагментінің болуы барлық туындыға бірдей аффинділік, ауыз арқылы биожетімділік, дозалау кестесі немесе пирогендік бейін бермейді. Өнімді бағалау оның өзіндік фармакокинетикалық және клиникалық зерттеулеріне әрі жергілікті реттеуші мәртебесіне сүйенуі тиіс.
Химиялық агонистер мен дәрілік формалардың айырмашылығы
Мурамилпептид белсенділігі нақты конъюгация орнына және қосылыстың жасушаға ену қабілетіне байланысты. Липофильді құйрық қосу мембранамен әрекеттесуді күшейтуі мүмкін, бірақ сонымен бірге тіндегі таралуы мен жиналу қаупін өзгертеді. Липосомаға қаптау фагоциттердің қармауын жеңілдетуі мүмкін, алайда везикула өлшемі, липид құрамы, енгізу тиімділігі және босап шығу жылдамдығы сияқты қосымша параметрлер пайда болады. Сондықтан химиялық құрамы бөлек аналогтардың миллиграммдық дозаларын салыстыру орынды емес. Екі қосылыс in vitro NF-κB репортерінде бірдей сигнал берсе де, оларды ауыз арқылы немесе көктамыр ішіне бергеннен кейін эпителийдегі, макрофагтардағы және қандағы концентрациясы салыстыруға келмеуі мүмкін.
MDP мен оның аналогтарының пирогенділігін «қауіпсіз/қауіпті» деген екілікке сыйғызуға болмайды. Жауап мөлшерге, енгізу жолына, эндотоксин қоспасына, бастапқы иммундық белсенділік пен дәрілік формаға байланысты. Тазартылған препараттың биосынамасы дайын өнімге реакцияны автоматты түрде болжамайды; басқа көрсетілімде қолданылған тарихы тағамдық форманың басқа популяциядағы қауіпсіздігін дәлелдемейді. Химиялық құрамы анық аналогтарды дәрі не адъювант ретінде зерттеуге болады, бірақ бұл құрамы анықталмаған инактивтелген бактерия қоспасын ұсынумен бірдей емес.
4. NOD2: цитозольдік танудан транскрипцияға дейін
CARD15/NLRC2 деп те аталатын NOD2 құрамында N-ұшында екі CARD домені, ортасында нуклеотид байланыстыратын NACHT домені және C-ұшында лейцинге бай қайталанымдар (LRR) бар. Тиісті стимул болмағанда ақуыз реттелетін күйде болады; MDP-ні тану, нуклеотидтердің қолжетімділігі және байланысты ақуыздар олигомерленуге, CARD–CARD әрекеттесуі арқылы RIPK2 тартуға жағдай жасайды. Құрылымдық модельдер конформациялық ауысуды түсіндіреді, бірақ жарияланған құрылымдар әр MDP молекуласындағы нақты атом in vivo адам NOD2-нің аталған қалдықтарымен тікелей байланысады немесе әр нодосомада міндетті түрде бірдей суббірлік саны бар деп айтуға негіз бермейді.
RIPK2 әрі киназа, әрі сигнал кешендерінің платформасы қызметін атқарады. XIAP және басқа E3-лигазалар RIPK2 убиквитинделуін күшейтеді; K63 тізбектері TAK1/TAB кешенін жалғайды, ал LUBAC түзетін сызықтық M1 тізбектері NEMO-ны, яғни IKK кешенінің құрамбөлігін тартуға көмектеседі. Одан соң IKK IκBα-ны фосфорлайды, ол ыдырап, NF-κB/RelA-ны ядродағы транскрипцияға босатады. TAK1-ге қатысты p38/JNK және өзге MAPK каскадтары AP-1-ді белсендіреді. Кейінгі хемокин, цитокин және микробқа қарсы жауап контекстке тәуелді. K63 және M1 полиубиквитині мұнда негізінен сигнал платформалары ретінде әрекет етеді; бұл протеасомада ыдырамас бұрын IκBα-ға жалғанатын K48 модификациясынан бөлек. CYLD, A20 және OTULIN деубиквитиназалары жауап ұзақтығын шектейді; реттелу қарапайым «қосулы/өшірулі» тетігі емес.
NOD2 басып кірген бактериямен түйіскен жерге ATG16L1 жергілікті тартылуына да ықпал ете алады. ATG12–ATG5–ATG16L1 кешені LC3-ті фосфатидилэтаноламинмен біріктіріп, аутофагиялық мембраналар құралуына көмектеседі; тиісті модельдерде бұл бактерияны өңдеу мен антиген көрсетілімін қолдайды. Бірақ NOD2 белсенуінің әрқайсысы ксенофагиямен аяқталмайды және аутофагияның бәрі NOD2-ге тәуелді емес. Фенотип патоген мен жасуша түріне байланысты.
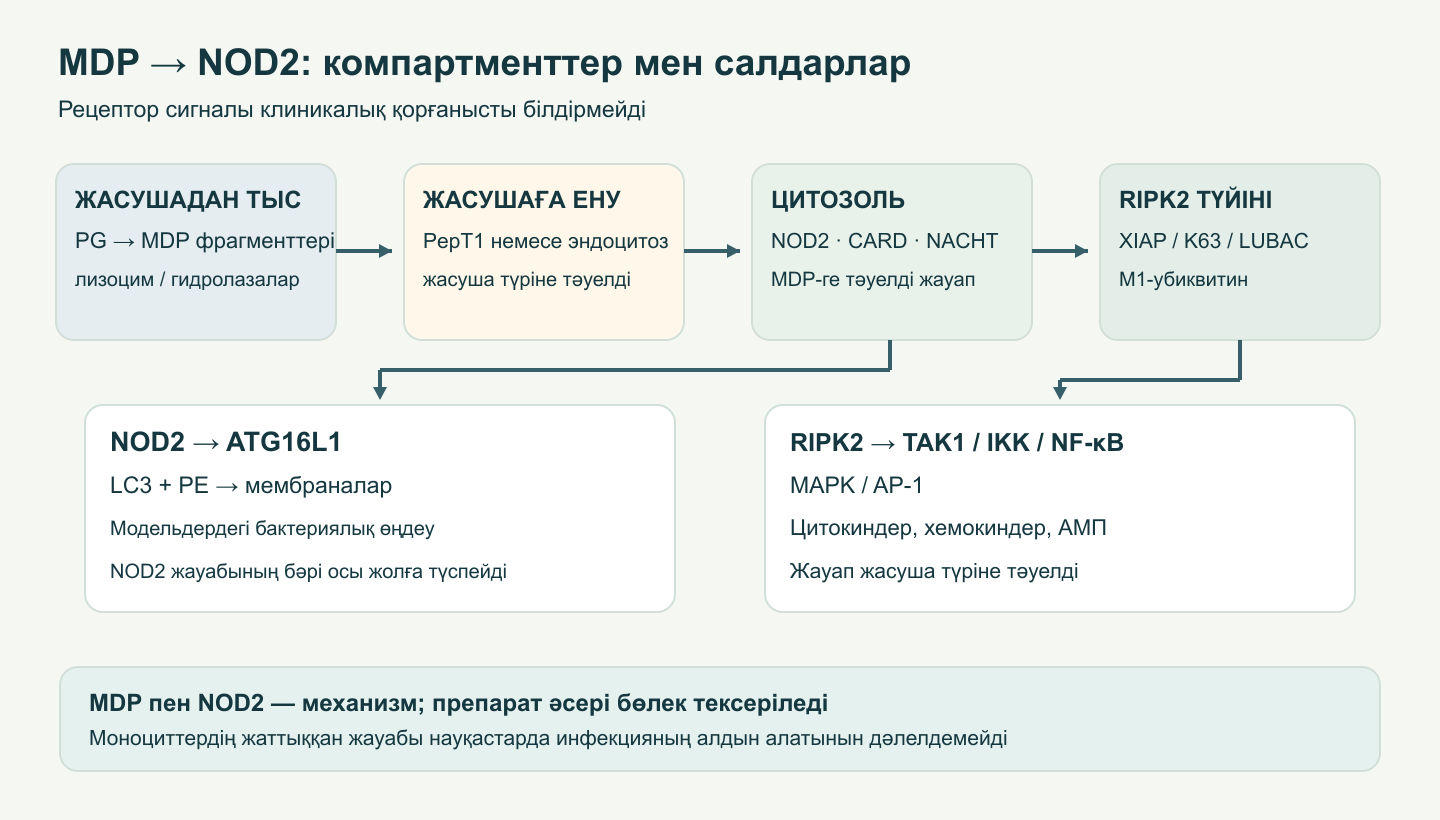
Сигнал сызбасының шегі
NOD2 әртүрлі жасуша типтерінде болады, ал соңғы жауап бұған дейінгі қабыну күйіне тәуелді. Макрофагтар мен дендриттік жасушаларда цитокин түзілуі не антиген көрсетілімінің өзгеруі басым болуы мүмкін; эпителийде хемокин және тосқауыл жауаптары алға шығуы ықтимал. Қайталанған стимулдан кейінгі төзімділік не күшею уақытқа және алғашқы әсерге байланысты. Белгілі убиквитин қалдықтары мен тізбектердің жинақталу реті молекулалық жүйелерде зерттелген, бірақ жасушалық кешен динамикалық; әр тінде өзгермейтін ферменттер конвейерін бейнелеуге болмайды. RIPK2 тежегіші NOD2-ні толық блоктаумен тең емес: бұл ақуыздың қаңқалық қызметтері бар, катализдік белсенділігі убиквитинделумен әрекеттеседі.
NOD1-де бір CARD домені бар және ол DAP бар фрагменттерді таниды. Грамтеріс лизат әсерлерін түсіндіргенде NOD1/NOD2 айырмасы маңызды: NOD1, NOD2 және TLR4 бір мезгілде белсенуі мүмкін, бірақ міндетті емес. NLRP3 — инфламмасома түзіп, каспаза-1 белсендіретін басқа рецептор кешені; NF-κB транскрипциясын жетілген IL-1β бөлінуімен теңестіру дұрыс емес. Әдетте pro-IL-1β транскрипциялық дайындалуы және бөлек жетілу механизмі қажет. Сондықтан MDP-тен кейін IL1B мРНҚ-сының өсуі ақуыз бен тиісті екінші сигнал өлшенбейінше пирогенді түрде жетілген цитокин бөлінгенін дәлелдемейді.
5. Крипта, Панет жасушалары және Крон ауруы
Мықын ішектегі крипталардың түбінде Панет жасушалары лизоцим, адамның HD5/HD6 α-дефензиндерін және басқа микробқа қарсы молекулаларды бөледі; LGR5⁺ бағаналы жасушалар жақын орналасады. NOD2 иммундық және эпителий популяцияларында, соның ішінде Панет жасушаларында экспрессияланады. Науқас тіндері мен модельдерге жасалған зерттеулер NOD2 нұсқаларын дефензин жауаптарының, микробтармен өзара әрекеттесудің және аутофагияның өзгеруімен байланыстырады. HD5 пен HD6 қызметтері әртүрлі: HD5 микроб мембраналарын зақымдауы мүмкін, ал HD6 тәжірибеде бактерияларды физикалық ұстайтын торлар түзеді. Бұл криптаның барлық жерінде стерильді «қауіпсіз аймақ» бар дегенді білдірмейді және науқаста нақты патобионт колонизациясын міндетті түрде болдырмайды.
Тәжірибеде MDP–NOD2 сигналын ішек бағаналы жасушаларын тотығу зақымынан қорғаумен байланыстырған. Мұны радиациядан немесе цитоуытты дәрілерден кейін адамдардың шырышты қабығы жылдам қалпына келеді деп аударуға болмайды. NOD2 және ATG16L1 гендері ішектің қабыну ауруларының күрделі генетикалық құрылымына кіреді; ауру ағымы эпителийге, микробиотаға, басқа гендерге, иммундық жасушаларға және ортаға да тәуелді. R702W, G908R және L1007fs нұсқалары кейбір популяцияларда негізінен мықын ішек Кронына бейімділікті арттырады, бірақ диагноз емес және NOD2 агонисін тағайындаудың тікелей ережесін бермейді. Кей тасымалдаушыларда ауру дамымайды, ал науқастардың көбінің дертін бір нұсқамен түсіндіру қажет емес.
Созылмалы қабынуда қызметі төмендеген сенсор парадоксы бір каскадпен шешілмейді. Микробпен жанасуды бақылаудың әлсіреуі, Панет жасушалары секрециясының өзгеруі, аутофагия және басқа туа біткен жолдар қабынуды ұстап тұруы мүмкін. Бастапқы «NOD2 ақауы → міндетті түрде толық TLR4/NLRP3 аса белсенуі» сызбасы балама тетіктерді шектен тыс оңайлатады және мутант ақуызды дәрімен белсендіру оның жауабын қайтарады дегенді білдірмейді. Ал Блау синдромындағы NOD2 домендерінің кей нұсқалары гранулематоздық дерматитпен, артритпен және увеитпен байланысты; бұл сирек аутосезгендік ауру әрі бөлек генетикалық жағдай, постбиотик жетіспеуінің көрінісі емес.
Генотип функционалдық фенотиппен бірдей емес
Крон ауруы мен NOD2 арасындағы бастапқы байланыстар бірнеше нұсқа үшін расталды, бірақ салыстырмалы қауіп популяцияның шығу тегі мен аллель көшірмесінің санына қарай өзгереді. Нұсқаның MDP-ге тәжірибелік жауабы төмен болғаны оны тасымалдаушы барлық дефензинді міндетті түрде аз өндіреді дегенді дәлелдемейді: қабыну, бактериямен жанасу, өзге генетикалық нұсқалар мен ем тін фенотипін өзгертеді. Мықын ішек биопсиялары механистік болжамдарға пайдалы болғанымен, Крон ауруына NOD2 бойынша диагноз қойылмайды. Блау синдромындағы кей мутациялардың бөлек әсерлері де нұсқа орны, ақуыз құрылымы мен жасуша түрінің маңызды екенін көрсетеді.
Клиникалық зерттеу дизайны тұрғысынан бұл «дербестендірілген MDP» идеясын шектейді: рецептор сигналы мутация салдарынан бәсеңдесе, дозаны арттыру қажетті кеңістіктік және уақыттық бақылауды міндетті түрде қалпына келтірмейді. Сигнал сақталған жағдайда оны шамадан тыс күшейту белсенді қабыну кезінде жағымсыз болуы мүмкін. Генотип бойынша тағайындау үшін жай биохимиялық қисын емес, генотип пен препарат әсерінің алдын ала белгіленген өзара ықпалын тексеретін клиникалық зерттеу қажет.
6. Жаттыққан туа біткен иммунитет: нақты әсерді өлшеу
Жаттыққан иммунитет алғашқы әсерден кейін туа біткен жасушалар мен олардың ізашарларында ұзақ сақталатын қызметтік өзгерістер болып, кейінгі стимулға жауаптың басқаша болуын білдіреді. Бұл T не B лимфоциттердің клондық рецепторларына негізделген адаптивтік жады емес, әрі міндетті түрде үнемі жоғары қабынуды білдірмейді. Тәжірибелерде моноциттерді тынығу кезеңінен кейін стандартталған жаңа стимулмен қайта сынайды; мұндай тәсіл бастапқы жедел әсерден қалған белгілерді ұзақ мерзімді қызметтік өзгерістен ажыратуға көмектеседі.
BCG мен NOD2 генотипіне арналған тәжірибе NOD2-нің жүре пайда болған бейспецификалық моноцит жауабына қатысатынын қолдады; ауыр біріктірілген иммундық тапшылығы бар тышқандарды тәжірибелік кандидоздан қорғау тазартылған MDP не дүкендік постбиотик қабылдауға емес, BCG вакцинациясына қатысты болды. Ex vivo қайта стимулданудан кейін TNF/IL-6 жоғарылауы инфекциялар санының азайғанын клиникада өлшемейді. «Жаттықтыру» қорғаныш та, созылмалы қабынуда жағымсыз да болуы мүмкін. Вирустардан маусымдық профилактика туралы айту үшін нақты препаратты расталған инфекцияның алдын ала анықталған жиілігі, қауіпсіздігі және бақылау тобымен зерттеу керек. Бұл биология MDP-ні «иммундық жады» үшін курспен қабылдауға ортақ ұсыным бермейді.
Жаттыққан жауапты жедел қабынудан қалай ажыратуға болады
Классикалық зерттеуде моноциттер белгіленген уақыт алғашқы стимул алады, содан соң жуылып, тынықтырылады да, басқа лигандпен немесе LPS-пен қайта стимулданады. Екінші әсерден кейінгі цитокиндер айырмасы — қызметтік көрсеткіш, бірақ оның өзі пациентке пайда әкелетінін көрсетпейді. Кей тәжірибелік жағдайларда және адам зерттеулерінде BCG NOD2-ге тәуелді жаттыққан жауап туғыза алады, алайда BCG — көптеген сигналы бар күрделі микобактериялық вакцина; ол тазартылған MDP де, ауыз арқылы ішілетін инактивтелген бактерия қоспасы да емес. BCG механизмі туралы деректі «постбиотик» деп таңбаланған әр өнімге көшіруге болмайды.
H3K4me3 және H3K27ac белсенді реттеуші аймақтармен байланысты, бірақ белгінің болуының өзі қай инфекцияның алдын алуға болатынын көрсетпейді. mTOR/HIF-1α-ға тәуелді гликолиз бен фумарат жиналатын глутаминолиз кейбір модельдік бағдарламаларға қатысқан; метаболит өзгерістері жедел қабынумен қатар жүруі де мүмкін. Себептілік туралы айту үшін жолға араласу және қажетті клиникалық әсердің сақталғанын көрсету керек. Бұған қоса, туа біткен жауапты жаттықтыру қорғанысты да, иммунопатологияны да күшейтуі мүмкін; қауіпсіздік бір цитокин панелімен емес, симптомдар мен ұзақ бақылау арқылы бағаланады.
Қандай эпигенетикалық өзгерістер маңызды
Жаттыққан күй хроматин қолжетімділігінің және жауап гендерінің промоторлары не энхансерлеріндегі H3K4me3, H3K27ac сияқты белгілердің өзгеруімен байланысты. Метаболизм де реттеудің бөлігі болуы мүмкін: mTOR/HIF-1α арқылы жүретін аэробты гликолиз, глутамин алмасуы және фумарат жиналуы модельдердегі эпигенетикалық әрі қызметтік өзгерістермен байланыстырылған. Бірақ гистон белгісін не гликолиз өзгерісін табу осы тетік клиникалық пайда туғызатынын дәлелдемейді. Жасушаның тағдыры маңызды: қандағы моноциттер қысқа өмір сүреді, ал миелоидты ізашарлардың қайта бағдарламалануы ұзаққа созылып, өзге жүйелік стимулдарды қажет етуі ықтимал.
Күшті кейбір стимулдардан кейін сүйек кемігінде миелоидты ізашарлардың жіктелуі ұзақ уақытқа өзгеруі мүмкін. Бірақ жануарларда BCG не β-глюканнан кейін мұны көрсету ішек өніміндегі бактерия фрагменттері тиімді концентрацияда адамның гемопоэздік бағаналы жасушаларына жетеді дегенді растауға жеткіліксіз. Гемопоэздік қайта бағдарламалау айналымдағы жасушалар құрамын өзгертіп, жеке жасушаның жауабы өзгермесе де цитокин түзілуі артқандай әсер беруі мүмкін. Сондықтан сапалы сынақтар стандартты стимулдан кейін жасуша саны, фенотипі мен қызметіндегі өзгерістерді бөлек өлшейді.
7. Адамдардағы деректер: нақты өнімдер, нәтижелер және шектеулер
Гастроэнтерологиядағы ең айқын мысал — Rome III өлшемдерімен диагноз қойылған және зерттеу басында іші ауырған IBS (тітіркенген ішек синдромы) бар ересектерде жылумен инактивтелген Bifidobacterium bifidum MIMBb75-ті зерттеген көпорталықты, қос соқыр, плацебо-бақыланатын сынақ. Қатысушылар сегіз апта бойы тәулігіне 1 × 10⁹ тіршіліксіз жасуша қабылдаған. Негізгі біріктірілген нәтиже ауырсынудың ≥30% азаюын және сегіз аптаның кемінде төртеуінде жалпы симптомдардың жеткілікті жеңілдеуін бірге талап етті; оған препарат тобындағы 74/221 (34%) және плацебо тобындағы 43/222 (19%) жетті. Бұл осы штамның осы түрі мен осы популяциядағы осы нәтижеге пайдасын қолдайды. Әсерді тек пептидогликанға не NOD2-ге телуді, оны IBS-Д/IBS-А фенотиптеріне бөлек қолдануды немесе басқа ауру емін алмастыруды дәлелдемейді. Сынақта өнімге қатысты ауыр жағымсыз құбылыс болмаған, бірақ бірнеше ауыр қосалқы ауру алынып тасталып, зерттеуге өндіруші демеушілік еткен.
Іш өтуге қатысты инактивтелген Lactobacillus acidophilus LB зерттеулері басқа өнімдер мен жас топтарына арналған. Бастапқы дизайн, салыстыру тобы және жас контексті сақталмайынша оларды MIMBb75-пен біріктіріп, іш өтуді барлық жағдайда 20–30 сағатқа қысқартады деуге болмайды. TLR2 және ZO-1 туралы бөлек зерттеу эпителий тосқауылының механизмін көрсетті, бірақ тазартылған липотейхой қышқылын ем ретінде сынаған жоқ. Нақты штамның LTA құрамы мен липопротеин қоспасы жауапты өзгерте алады; фармакологиялық тұрақтылық пен қауіпсіздікті бөлек сипаттау қажет.
Липосомалық мифамуртид остеосаркоманы химиотерапиямен емдеу аясында рандомизацияланған факторлық сынақта зерттелді: мурамилтрипептидті қосқан кезде алты жылдық жалпы өмір сүру 70%-дан 78%-ға артқаны хабарланды, ал оқиғасыз өмір сүруде сенімді статистикалық мәні жоқ үрдіс байқалды. Бұл — дәрілік қосылыс қолданылған шектеулі онкологиялық жағдай, тағамдық постбиотиктер обырдың алдын алады деген дәлел емес. NOD2 механизмі GMDP не басқа мурамилпептидтер қайталанатын инфекцияларға, аш ішектегі бактериялардың шамадан тыс өсуіне немесе «ағып тұрған ішекке» міндетті түрде көмектеседі дегенді дәлелдемейді; доза мен көрсетілімді аналогтар арасында көшірмей, нақты тіркеу мен зерттеуге қарай бағалау қажет. Тірі микроб болмауы иммунсупрессия кезінде қауіпсіздікке кепілдік бермейді: пирогендік және қабыну реакциялары болуы мүмкін.
Дайын өнім туралы практикалық сұрақтар: қандай штамм не бастапқы материал қолданылған, инактивация қалай расталған, дозада қандай компоненттер қанша мөлшерде бар, партия стандартталған ба, әсер қай адамдарда және қандай негізгі нәтижемен зерттелген? Мырыш, глутамин не ашытқы β-глюкандарымен араластырылған инактивтелген бактериялар — біріктірілген араласу; бір компоненттің нәтижесі қоспаның синергиясын дәлелдемейді. Қауіп тобында қолдану ұсынылса, «тірі емес бактерия» деген жалпы атаудан гөрі осы топтағы клиникалық қауіпсіздік бақылауы маңызды. Жеке класс болып саналатын тірі штамдар туралы пробиотиктер, ал микробиота субстраттары туралы тағамдық талшықтар материалынан қараңыз.
Популяцияларды алмастырмай, көрсетілімдерді салыстыру
MIMBb75-тің IBS сынағында Rome III өлшемдері қолданылып, қатысу кезінде ауырсыну талап етілді және бірнеше ауыр ауру алынып тасталды. Таңдалған біріктірілген нәтиже симптомдарға қатысты; ол NOD2 өзгерісін, тосқауыл зақымын немесе жүйелік инфекциялардың азаюын өлшемейді. Сондықтан жауап бергендердің үлесін нақты молекулалық механизм дәлелі ретінде пайдалануға болмайды. Идеал кейінгі сынақ сол инактивациялау үдерісін инактивтелмеген штаммен салыстырып, жасуша массасын бірдей ұстап, қабырға құрамын өлшеп, алдын ала белгіленген биомаркерлерді тексерер еді. Сонда да себептік медиаторды дәлелдеу үшін қосымша себептік араласу керек.
Мифамуртидтің онкологиялық зерттеуі көп дәрілі химиятерапия мен операция аясындағы факторлық сынақ болды; негізгі нәтиже остеосаркомадағы өмір сүру ұзақтығы еді. Бұл белгі өз саласы үшін маңызды, бірақ жас, диагноз, енгізу жолы және қауіптері жағынан нутрициялық практикадан өзгеше. GMDP-ні «барлық вирустық инфекцияларға қарсы» қабылдау немесе инактивтелген микробтарды глутамин, мырыш және β-глюканмен қосатын алдын алу қоспалары туралы коммерциялық ұсынымдар онкологиялық дерекке сүйене алмайды. Клиникаға көшіру үшін тиісті қоспаны қолайлы белсенді бақылаумен жаңа сынақта тексеру қажет.
Қауіпсіздік пен сапа — нақты препараттың қасиеті
Сенімді инактивация бактериемияны болдырмайды деген теориялық уәж түсінікті: тіршілікке қабілетсіз микроб көбейе алмайды. Бірақ бұл қауіптің бір ғана өлшемі. Сақталған беткі молекулалар туа біткен иммунитетті белсендіруі мүмкін, ал оқшауланған мурамилпептидтер бұрын адъювант және пирогендік сигнал ретінде зерттелген. Жасуша қабырғасын бұзу қолжетімді бетті өзгертеді және кей фракциялардың жедел биологиялық белсенділігін азайтпай, арттыруы мүмкін. Шырышты қабығы қабынған адамдарда фрагменттердің өтуі мен бастапқы белсенділік дені сау еріктілерден өзгеше. Сондықтан ауыр халдегі адамдар, шала туған нәрестелер, иммунсупрессиясы ауыр адамдар және трансплантат алушылар үшін қауіпсіздік дерегі бөлек қажет; тірі КТБ болмауы мұндай деректің орнын баспайды.
Сақтау кезінде ылғал, агрегация, LTA липидтік якорының ыдырауы, қанттардың химиялық өзгеруі және матрицаның басқа компоненттерінің сақталуы маңызды. Өнім стерильді болып, мәлімделген белсенділігін жоғалтуы мүмкін; белсенділігі сақталғанымен, микробиологиялық тазалық талаптарына сай келмеуі де ықтимал. Тағам, қоспа және дәрілік заттарға қойылатын реттеу талаптары әртүрлі. «Бөлме температурасында жылдар бойы ыстыққа төзімді» деген жарнамалық мәлімдеме «инактивтелген» деген атаудан туындамайды, партиялық сынақ пен жарамдылық мерзімі дерегімен расталуы керек. Клиникалық әсер белгілі бір қыздыру режимінде байқалса, инактивация үдерісін өзгерту биологиялық құрамды өзгертуі мүмкін, сондықтан баламалылығы тексеріледі.
«Постбиотик» деп жарнамаланатын тағам компоненттерінің бәрі ғылыми анықтамаға сәйкес емес. Инактивтелген жасушалар не олардың компоненттері жоқ оқшауланған бутират, сүт қышқылы немесе тазартылған бөлінетін метаболитті бактерия өндірсе де, ол басқа санатқа жатады. Сипатталған препарат пен клиникалық пайдасы жоқ тазартылған құрылымдық фрагмент те зерттеу нысаны болып қалады. Бұл айырмашылық ықтимал фармакологияны жоққа шығармайды; бір химиялық молекула зерттеуін жасуша бөліктері араласқан көптеген өнімге көшіруден сақтайды.
Шолу әдісі мен шектеулері
Бұл — бактерия химиясы, рецептор биологиясы және таңдалған жарияланған клиникалық зерттеулерге жасалған баяндаушы талдау. 2026 жылғы 9 қазанда ISAPP консенсусының мәтіні, MDP тану туралы бастапқы жұмыстар, BCG-ден кейінгі NOD2-ге тәуелді жаттыққан жауаптар, IBS-тегі инактивтелген MIMBb75 рандомизацияланған сынағы және мифамуртидтің онкологиялық зерттеуі арнайы тексерілді. Ресми жүйелі іздеу, хаттама бойынша ығысу қаупін бағалау немесе GRADE жүргізілген жоқ. Негізгі шектеулер: механизмнің құрам мен жеткізу жолына қатты тәуелділігі, тәжірибелік жүйелердің бірдей болмауы және тағамдық мақсаттардың көбі үшін тазартылған компоненттерге жасалған тікелей адам сынақтарының аздығы.
Жиі қойылатын сұрақтар
ISAPP бойынша постбиотик деген не?
Иесіне денсаулық пайдасы көрсетілген инактивтелген микроорганизмдер және/немесе олардың компоненттерінен жасалған препарат; микробтан шыққан кез келген зат емес.
Таза MDP-ні постбиотик деуге бола ма?
Тазартылған не синтезделген MDP өз алдына зерттеуге немесе дәрі жасауға арналған молекулалық компонент; постбиотик атауы анықтамаға сай болуды және нақты препарат пайдасының дәлелденуін талап етеді.
NOD1 мен NOD2 бірдей нәрсені таниды ма?
Жоқ. NOD2 мурамилдипептидке жауап береді, ал NOD1 көбіне DAP бар пептидогликан мотивтерін таниды.
Инактивтелген бактериялардың IBS-ке пайдасы дәлелденген бе?
Сегіз апталық РКЗ-де нақты жылумен инактивтелген B. bifidum MIMBb75 препараты плацебодан көбірек біріктірілген жауап берді; бұл басқа штамдарға автоматты түрде қатысты емес.
Жаттыққан иммунитет барлық инфекциядан қорғай ма?
Жоқ. Қайта стимуляциядан кейінгі моноцит жауаптарының өзгеруі және BCG модельдері белгілі бір ауызша постбиотикпен маусымдық профилактиканы дәлелдемейді.
Постбиотиктер иммундық тапшылықта қауіпсіз бе?
Дұрыс инактивация көбеюге жол бермейді, бірақ пирогенділік, құрам және клиникалық қауіпсіздік нақты өнім мен популяция үшін бағалануы керек.
Дереккөздер
- Salminen S et al. The ISAPP consensus statement on the definition and scope of postbiotics. Nat Rev Gastroenterol Hepatol. 2021;18:649–667.
- Vollmer W, Blanot D, de Pedro MA. Peptidoglycan structure and architecture. FEMS Microbiol Rev. 2008;32:149–167.
- Brown S, Santa Maria JP, Walker S. Wall teichoic acids of gram-positive bacteria. Annu Rev Microbiol. 2013;67:313–336.
- Percy MG, Gründling A. Lipoteichoic acid synthesis and function in gram-positive bacteria. Annu Rev Microbiol. 2014;68:81–100.
- Silhavy TJ, Kahne D, Walker S. The bacterial cell envelope. Cold Spring Harb Perspect Biol. 2010;2:a000414.
- Girardin SE et al. Nod2 is a general sensor of peptidoglycan through muramyl dipeptide detection. J Biol Chem. 2003;278:8869–8872.
- Inohara N et al. Host recognition of bacterial muramyl dipeptide mediated through NOD2. J Biol Chem. 2003;278:5509–5512.
- Vavricka SR et al. hPepT1 transports muramyl dipeptide, activating NF-kappaB and stimulating IL-8 secretion in human colonic epithelia. Gastroenterology. 2004;127:1401–1409.
- Sasawatari S et al. SLC15A4 peptide transporter is required for functional NOD2 signaling in dendritic cells. Immunity. 2011;34:522–532.
- Heinz LX et al. TASL is the SLC15A4-associated adaptor for IRF5 activation by TLR7–9. Nature. 2020;581:316–322.
- Maekawa S et al. Crystal structure of NOD2 and its implications for human disease. Nat Commun. 2016;7:11855.
- Kobayashi KS et al. RICK/Rip2/CARDIAK mediates signalling for receptors of the innate and adaptive immune systems. Nature. 2002;416:194–199.
- Damgaard RB et al. XIAP recruits LUBAC for NOD2 signaling in inflammation and immunity. Mol Cell. 2012;46:746–758.
- Hrdinka M et al. CYLD limits Lys63- and Met1-linked ubiquitin chains on RIPK2 to downregulate NOD2 signaling. Cell Rep. 2016;14:2399–2410.
- Travassos LH et al. Nod1 and Nod2 direct autophagy by recruiting ATG16L1 to the plasma membrane at bacterial entry. Nat Immunol. 2010;11:55–62.
- Cooney R et al. NOD2 stimulation induces autophagy in dendritic cells influencing bacterial handling and antigen presentation. Nat Med. 2010;16:90–97.
- Lala S et al. Crohn disease and the NOD2 gene: a role for Paneth cells. Gastroenterology. 2003;125:47–57.
- Wehkamp J et al. NOD2/CARD15 mutations in Crohn disease are associated with diminished mucosal alpha-defensin expression. Gut. 2004;53:1658–1664.
- Nigro G et al. Muramyl dipeptide signaling through NOD2 protects intestinal stem cells against oxidative stress. Cell Host Microbe. 2014;15:492–498.
- Netea MG et al. Trained immunity: a program of innate immune memory in health and disease. Science. 2016;352:aaf1098.
- Kleinnijenhuis J et al. Bacille Calmette–Guérin induces NOD2-dependent nonspecific protection from reinfection via epigenetic reprogramming of monocytes. PNAS. 2012;109:17537–17542.
- Saeed S et al. Epigenetic programming of monocyte-to-macrophage differentiation and trained innate immunity. Science. 2014;345:1251086.
- Arts RJ et al. Glutaminolysis and fumarate accumulation integrate immunometabolic and epigenetic programs in trained immunity. Cell Metab. 2016;24:807–819.
- Cheng SC et al. mTOR- and HIF-1alpha-mediated aerobic glycolysis as metabolic basis for trained immunity. Science. 2014;346:1250684.
- Hugot JP et al. Association of NOD2 leucine-rich repeat variants with susceptibility to Crohn disease. Nature. 2001;411:599–603.
- Ogura Y et al. A frameshift mutation in NOD2 associated with susceptibility to Crohn disease. Nature. 2001;411:603–606.
- Miceli-Richard C et al. CARD15 mutations in Blau syndrome. Nat Genet. 2001;29:19–20.
- Andresen V, Gschossmann J, Layer P. Heat-inactivated Bifidobacterium bifidum MIMBb75 (SYN-HI-001) in the treatment of irritable bowel syndrome: a multicentre, randomised, double-blind, placebo-controlled clinical trial. Lancet Gastroenterol Hepatol. 2020;5:658–666.
- Cario E, Gerken G, Podolsky DK. Toll-like receptor 2 enhances intestinal epithelial barrier function via ZO-1 up-regulation. Gastroenterology. 2007;132:1359–1374.
- Meyers PA et al. Osteosarcoma: the addition of muramyl tripeptide to chemotherapy improves overall survival—A report from the Children’s Oncology Group. J Clin Oncol. 2008;26:633–638.