
mPTP: митохондрия өткізгіштігі, циклофилин D және циклоспорин
Өткізгіштік ауысуы, саңылау құрамы туралы пікірталас, кальций мен CypD, энергетикалық зақым және клиникалық араласу шектері.
Митохондрияның ішкі мембранасы электрлік потенциал мен протон концентрациясының айырмасын сақтап, сонымен бірге арнайы тасымалдағыштар арқылы таңдалған метаболиттерді өткізуі керек. Митохондриялық өткізгіштік ауысуы осы таңдамалылықты бұзады: ұсақ еріген заттар мен иондарға өткізгіш жол ашылып, жинақталған электрохимиялық энергия таралады. mPTP — mitochondrial permeability transition pore — осы құбылысқа қатысты саңылауды білдіреді. Оның реттелуі түпкілікті молекулалық құрылымына қарағанда әлдеқайда жақсы зерттелген.
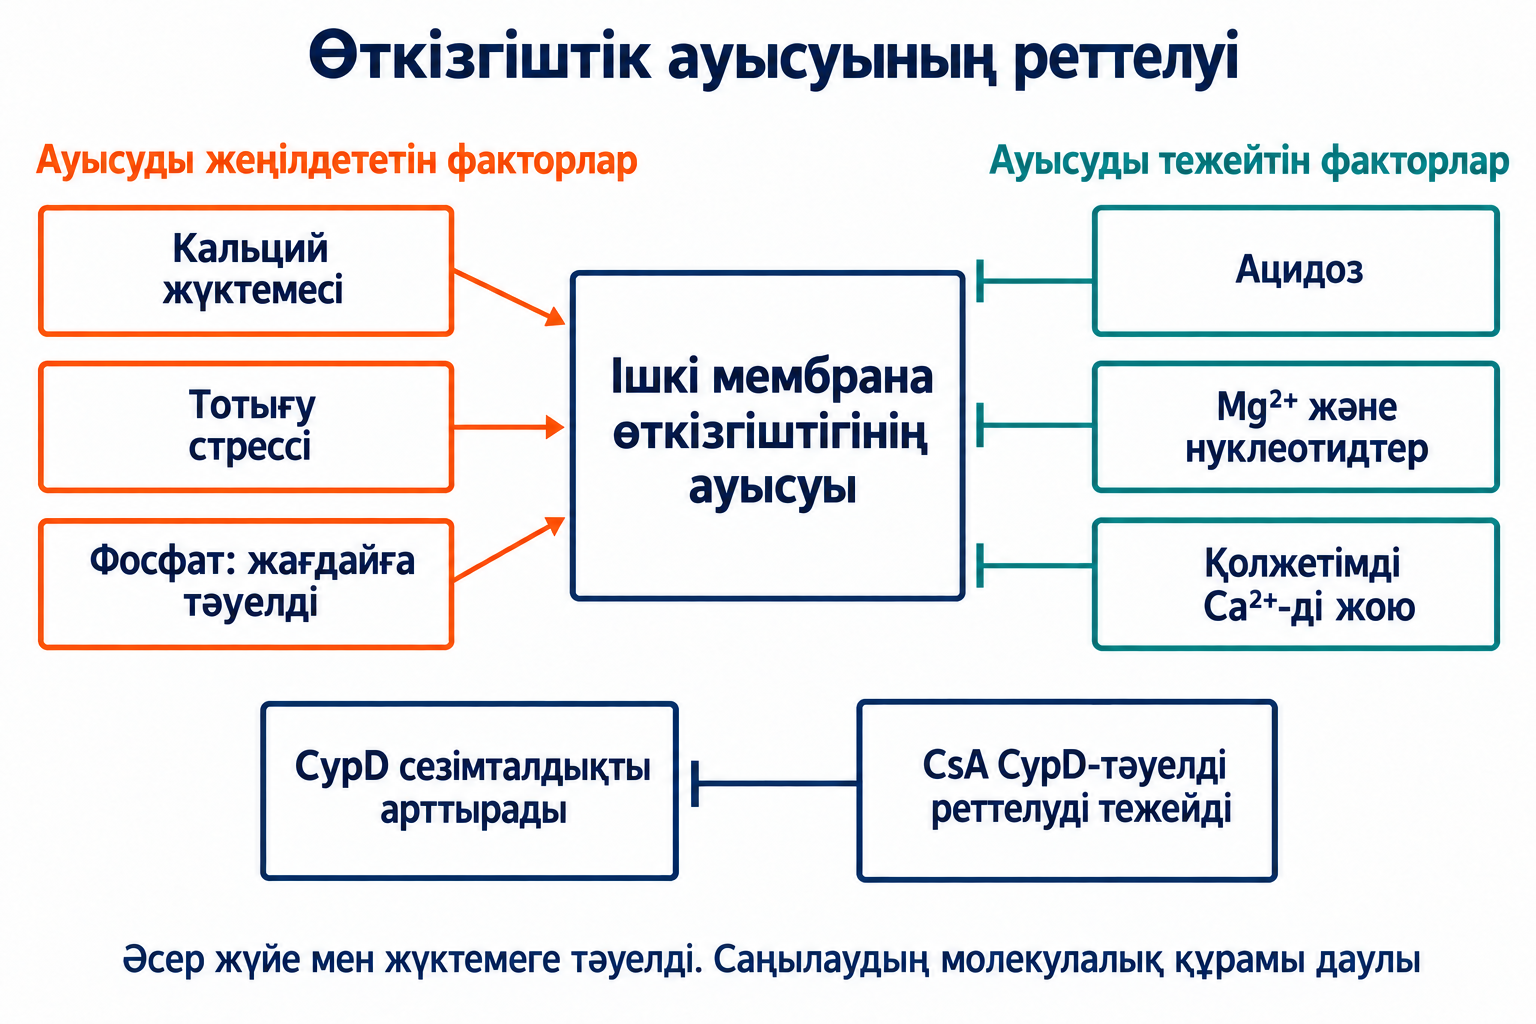
Кальцийдің шамадан тыс жүктемесі, тотығу стрессі, бейорганикалық фосфат және энергетикалық күй ауысу ықтималдығын өзгертеді. Матрикстегі циклофилин D ашылуға сезімталдықты арттырады; циклоспорин A тәжірибеде осы реттеу бөлігін тежей алады. Алайда тышқандағы генетикалық қорғаныс, оқшауланған митохондриялардың ісінуін азайту және адамдағы инфаркт нәтижесін жақсарту — бөлек тұжырымдар. Оларды біріктіру саңылау құрылымы анықталған және әмбебап ем дайын деген қате түсінік тудырады.
Мембраналық бөгет және алғашқы бақылаулар
Сыртқы мембрана VDAC арқылы шағын метаболиттерді салыстырмалы оңай өткізеді. Ішкі мембрана тыныс тізбегінің ақуыздары мен тасымалдағыштарға бай, кардиолипинді қамтитын ерекше липидтік құрамы бар және протон градиентін ұстайды. Тыныс кешендері протондарды матрикстен мембранааралық кеңістікке шығарады. Олардың ATP-синтаза арқылы кері келуі электрохимиялық энергияны ATP түзілуімен байланыстырады. Сондықтан аз ғана қосымша ағып өту байланысу тиімділігіне әсер етеді, ал үлкен таңдамасыз өткізгіштік энергетикалық бөгетті тез жоя алады.
және деп анықтайық. Осы таңба келісімі бойынша протонқозғаушы күш:
Матрикс әдетте электрлік теріс және сілтілірек, сондықтан екі үлес те осы анықтамада мәнін теріс етеді. Энергия қоры жиі модулі арқылы талқыланады. Теріс потенциалды оң «жалпы күшпен» таңбаларды түсіндірмей қосуға болмайды. Мәндер тінге, субстратқа, жүктемеге және өлшеуге тәуелді; оқшауланған митохондриядағы сан әмбебап ашылу шегі емес. — газ тұрақтысы, — абсолют температура, — Фарадей тұрақтысы.
Hunter мен Haworth-тың 1979 жылғы сериясында кальций өткізгіштіктің артуы мен ісіну ауысуын туғызды; фосфаттың қатысуы, кальцийлік іске қосу және аралық күйлер бөлек зерттелді. Қолжетімді кальцийді хелаттау және аденин нуклеотидтері кейбір жағдайда қайтымдылықты өзгертті. Магний, спермін сияқты полиаминдер, қышқылдық және тотығу күйі де әсер етті. Бұл реттелетін мембраналық құбылыстың бақылаулары еді, бір ақуыздық тесіктің тікелей бейнесі емес.[1–3]
Crompton және әріптестері 1988 жылы фосфат пен тотығу стрессі белсендірген жүрек митохондрияларындағы кальцийге тәуелді саңылауды циклоспорин A тежейтінін көрсетті. Кейін CypD байланысы генетикалық қолдау тапты. Тәжірибе жағдайы маңызды: CsA сезімталдығы белгілі режимге қатысты және ішкі мембрананың кез келген зақымын препарат толық тоқтатады дегенді білдірмейді.[4,9–11]
Жоғары өткізгіш күйлер үшін өткізгіштік наносиименс шамасында, ал ұсақ еріген заттардың өтуі шамамен 1,5 кДа-ға дейін деп сипатталады. Бұлар кейбір өлшеулердің жұмыс сипаттамалары, барлық жасушадағы дәл бірдей диаметр емес. Өтуге молекулалық массаға қоса пішін, заряд, уақыт және канал күйі әсер етеді. Иондар, кейбір нуклеотидтер, NAD және глутатион мөлшері жағынан ықтимал өтетін шағын молекулаларға жатады; матрикс ақуыздары мен митохондриялық ДНҚ бұл жолмен еркін өтпейді.[6–8]
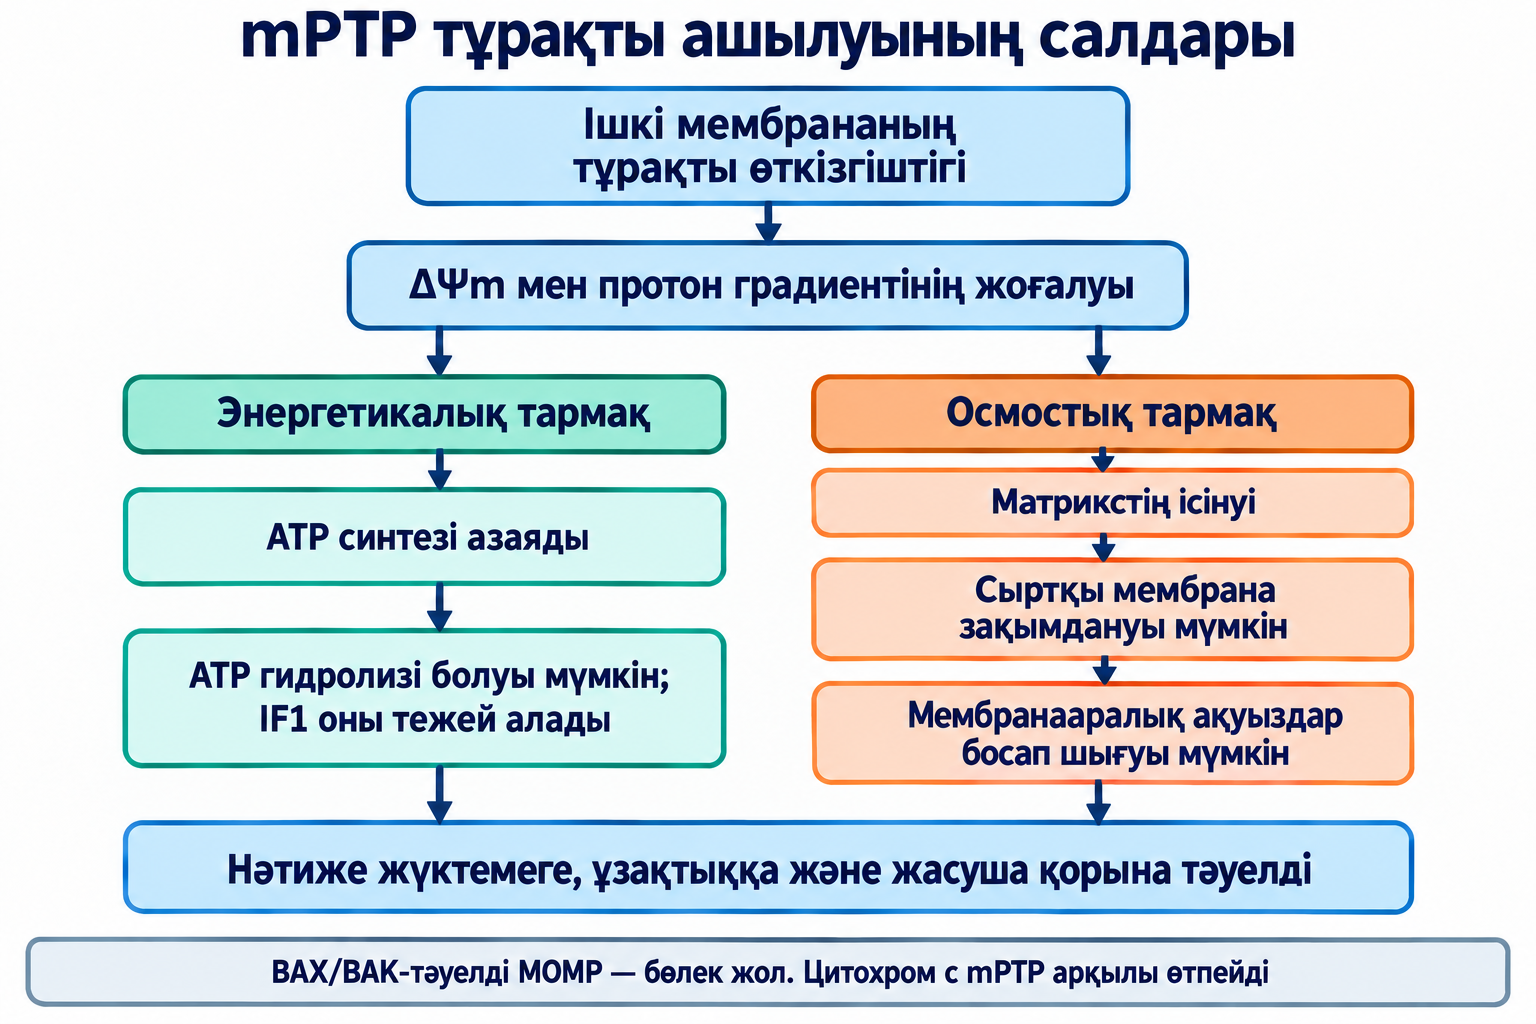
Цитохром c негізінен мембранааралық кеңістікте орналасады және массасы шамамен 12 кДа. Ол матрикстен mPTP арқылы шықпайды. Цитозольге жетуі үшін сыртқы мембрана өзгеруі керек: ісінуден кейін механикалық зақым немесе BAX/BAK реттейтін бөлек MOMP үдерісі. Осы кеңістіктік орналасу зақым оқиғаларының қайсысы тізбектей, қайсысы тәуелсіз болатынын анықтайды.
Саңылау құрамы туралы не дәлелденген?
Тарихи модель сыртқы мембранадағы VDAC, ішкі мембранадағы ANT және матрикс жағындағы CypD-ні біріктірді; TSPO мен гексокиназа II де талқыланды. Бұл фармакологиялық байланыстар мен мембрана түйісулерін түсіндіргенімен, ішкі мембрана құбылысын екі қабықты қамтитын болжамды кешенге теліді. VDAC жетіспеген тәжірибелерде ауысу сақталды, сондықтан VDAC әмбебап міндетті саңылау түзуші емес. Әртүрлі жұмыстардың генетикалық араласулары бірдей емес; оларды болмаған бір «барлық VDAC-тың үштік нокауты» деп көрсетуге болмайды.[13,14]
ANT — аденин нуклеотидтерінің транслоказасы — қалыптыда матрикстің бір ATP молекуласын кіретін бір ADP-ге айырбастайды. Адамдағы отбасы SLC25A4, SLC25A5, SLC25A6 және SLC25A31 тасымалдағыштарын қамтиды; экспрессия мен өтем тін және түрге тәуелді. Алты трансмембраналық спираль үш қайталанатын блок түзеді. Тұздық көпір желілері матрикс пен мембранааралық жақтан қолжетімділікті кезекпен шектейді; қалыпты тасымалдауда екі кіреберіс бір мезгілде ашық өтпелі канал түзбеуі керек.[17,18]
-күй мембранааралық, шартты түрде цитозольдік жаққа, -күй матрикске ашылады. Карбоксиатрактилозид -күйді тұрақтандырып, бірнеше модельде ауысуды жеңілдетеді. Бонгкрек қышқылы -күйді тұрақтандырып, оны тежеуі мүмкін. Екі лиганд та ADP/ATP алмасуын тоқтатады және уытты. Әсерлері ANT пен өткізгіштік байланысын қолдайды, бірақ кальций барлық жағдайда екі қақпа желісін бұзып, бір нақты саңылау жасайтынын дәлелдемейді.
Kokoszka зерттеуінде ANT1 мен ANT2 жойылуы ауысуды толық жоймады, бірақ сезімталдық пен лиганд жауабын өзгертті. Karch 2019 жұмысында ANT отбасының кеңірек тапшылығы зерттелген жүйедегі ауысуды қатты шектеді; CypD-ні қосымша жою ерекше қорғаныс берді. Қалған изоформалар, генетикалық негіз және кальцийлік сынақ мөлшері айырманы түсіндіруде маңызды. Бұл ANT-тің елеулі рөлін қолдайды, әр тінде жалғыз саңылау ақуызы екенін дәлелдемейді.[15,16]
Басқа модельдер -ATP-синтазаны қарастырады. Каталитикалық басы матрикске бағытталған, мембраналық протон жолын береді, OSCP бар статор механикалық байланысын ұстайды. Димерлер мен қатарлары криста қисықтығына қатысады. Каталитикалық аймақта магний орнына кальций, механикалық байланыс өзгеруі, димер интерфейсі және -суббірлік сақинасындағы канал ұсынылған. Димер интерфейсі мен -сақинасы — бөлек құрылымдық гипотезалар; оларды байқатпай бір модельге біріктіруге болмайды.[19,20]
Тазартылған бөліктерді жасанды мембранада қайта құрастырып ток жазу сол жағдайда өткізгіштікті көрсетеді. Генетикалық жою кандидаттың жасушада қажет екенін тексереді. He 2017 және Carroll 2019 жұмыстарында ауысу белгілері тиісінше -суббірліксіз және құрастырылған ATP-синтазасыз сақталды. Сондықтан канал түзілуін даудың түпкілікті шешімі деп көрсетуге болмайды. Әдістер, қалдық белсенділік, метаболикалық қайта құрылу және өлшенетін оқиға анықтамасы талқылануда.[21,22]
ATP-синтаза, ANT және фосфат тасымалдағышының байланысын кейде ATP-синтасома дейді. Мұндай ұйымдасу субстрат алмасуы мен энергетикалық байланысқа маңызды болуы мүмкін. Алайда көршілестік немесе ақуыз әрекеттесуі су каналының қабырғасын өздігінен анықтамайды. «ANT — негізгі саңылау, ATP-синтаза — резерв, ортақ кешен — қазіргі келісім» деу деректерден күштірек. Бәсекелес модельдер мен механизмнің жүйеге тәуелділігін ажырату қажет.
| Модель | Қолдайтын бақылаулар | Негізгі шектеу |
|---|---|---|
| Екі мембрананы қамтитын VDAC–ANT–CypD | Тарихи әрекеттесулер мен фармакология | VDAC міндетті емес; құбылыс негізінен ішкі мембранаға қатысты |
| ANT | Лиганд күйлері, каналға ұқсас режимдер, кең отбасылық тапшылықтағы қорғаныс | Алғашқы жоюлар ауысуды жоймады; изоформа мен жағдай әртүрлі |
| ATP-синтаза димері | Қайта құрастырылған кешендердің токтары, CypD/OSCP байланыстары | -сақина моделінен бөлек; генетикалық қажеттілік туралы дерек қайшылықты |
| -суббірлік сақинасы | Ажыратушы канал жөніндегі тәжірибелер | -суббірліксіз де ауысу байқалған |
| Бірнеше жол немесе ортақ ұйымдасу | Кейбір айырмашылықты түсіндіруі мүмкін | Бірыңғай молекулалық құрылым ретінде анықталмаған |
Циклофилин D сезімталдықты реттейді
CypD-ні PPIF гені кодтайды. Митохондриялық бағыттау сигналы оның ізашарын матрикске жеткізіп, жетілген ақуыз сонда жұмыс істейді. Ол пептидил-пролил-цис-транс-изомеразалар — циклофилиндер тобына жатады. Ақуыз бүктелуі субстрат пен циклоспоринге қалта қалыптастырып, пролин алдындағы пептидтік байланыстың конформациялық ауысуын жылдамдатады:
Бұл каталитикалық қызмет, CypD ірі трансмембраналық каналды өзі қаптайтынының дәлелі емес. ANT және OSCP байланыстары, конформациялық өзгерістер мен реттеуші түйісулер талқыланады. Арнайы құрылымдық тәжірибесіз бір ілмек не пролинді әмбебап міндетті құлып деуге болмайды. Изомерлену тосқауылы да субстрат пен жағдайға тәуелді.
CypD жоқ митохондриялар әдетте ауысу үшін үлкенірек кальций сынағын қажет етеді; тиісті режимде CsA сезімталдығы азаяды немесе жоғалады. Саңылау міндетті түрде жоғалмайды: күшті сынақ CypD-сіз өткізгіштік туғызуы мүмкін. PPIF сенімді реттеуші нысана, бірақ нокауттың төзімділігі барлық зақым жолы жоқ деген дәлел емес.[9–11]
Трансляциядан кейінгі өзгерістер CypD-ні метаболикалық және редокс-күймен байланыстырады. Hafner NAD-тәуелді SIRT3 арқылы деацетилденуді, қолданылған тышқан тізбегіндегі Lys166-мен байланысын көрсетті. SIRT3 жоқ тышқандарда ісіну және жасқа байланысты жүрек фенотиптері өзгерді. Қалдық нөмірі түрге, жетілген не ізашар ақуызға қатысты оқылады. Бұл NAD көбейту арқылы әр адамда саңылауды жабатын клиникалық тәсіл емес.[25]
Тиолдардың күйі де маңызды. Nguyen жұмысында NO доноры GSNO CypD бар жасушада пероксид туғызған ашылуды азайтты, ал Cys203-ті серинге алмастыру жасушалық және тышқан модельдерінің сезімталдығын төмендетті. Мутация мен S-нитрозилдену бірдей емес, бірақ нәтижелер CypD S-нитрозилденуін сөзсіз ашылу белсендіргіші деп салуға жол бермейді. NO әсері дозаға, редокс-ортаға, нысанаға және уақытқа тәуелді; реактивті азот түрлерінің артықтығы зақым келтіруі мүмкін.[33]
Кардиопротекциялық RISK модельдеріндегі Akt/ERK жолдары және GSK3β тежелуі, соның ішінде Ser9 арқылы, сыртқы сигналдарды митохондрия төзімділігімен байланыстырады. Сигналдық киназаның фосфорлануы, CypD түйісуінің өзгеруі және CypD-нің тікелей өзгергенінің дәлелі — бөлек оқиғалар. Бүкіл қорғанысты «GSK3β CypD-ні фосфорлап, саңылауды ашады» деген өзгермейтін реакцияға сыйғызу дұрыс емес.[6,8,32]
Кальций, фосфат, pH және редокс-күй
Кальций матрикске негізінен MCU кешенімен электрлік қозғаушы күш арқылы кіреді; NCLX және басқа шығару жолдары жинақталуын шектейді. Қалыпты жоғарылау метаболизмге көмектесуі мүмкін, ал мембрана күйі қолайсыз кезде артық кальций ауысу қаупін өсіреді. Нәтиже тек сыртқы концентрациядан емес, кіріс, шығыс және байланыс теңгерімінен туындайды.
Еркін матрикстік пен жалпы кальций әртүрлі. Фосфат кальцийді байланыстырып, кальций–фосфат кешендерін түзеді, сондықтан жалпы қор еркін ионды пропорционал өсірмей ұлғая алады. Бір идеалданған теңгерім:
Атом мен заряд сақталады, бірақ барлық тірі митохондрияда дәл осы таза кристалл түзіледі деген сөз емес. Буферленген, аморфты және ақуызбен байланысқан формалар күрделі. Фосфат кальцийді буферлеуді де, ауысу сезімталдығын да өзгертеді; әсер бағыты орта мен CypD-тәуелді режимге байланысты.[1–3,6,11]
Жауап ықтималдығын кейде Хилл функциясымен жуықтайды:
— анық таңдалған өлшенетін концентрация, — модельдік жарты жауап мәні, — эмпирикалық тіктік. Хилл саны саңылау молекуласына байланысқан ион санын автоматты есептемейді. Параметрлерді тін, түр, буфер және әдіс арасында тікелей көшіруге болмайды. Байланысу, жинақталу, потенциал арқылы кері байланыс және популяция әркелкілігі ұқсас бейсызықтық беруі мүмкін.
Кальцийді ұстап қалу қабілеті — CRC — көбіне кальций импульстерін жиналған қор кенет шыққанға дейін беру арқылы өлшенеді. Бұл митохондриялық ақуыз массасына шаққандағы сынақ мөлшері, матрикстегі әмбебап еркін концентрация емес. Импульс мөлшері мен аралығы, температура, субстрат, фосфат, тыныс, кальций шығуы және препарат сапасы нәтижеге әсер етеді. Бірдей CRC әртүрлі жинақталу жылдамдығы мен зақымға сәйкес келуі мүмкін.
Тиол тотығуы, NAD(H) күйі және кардиолипин зақымы ауысуды ROS-пен байланыстырады. Кері байланыс бар: тотығу ашылуды жеңілдетеді, ал энергетикалық күйреу мен метаболит жоғалуы ROS түзілуі мен жойылуын өзгертеді. Потенциал төмендеуі барлық жағдайда ROS артуының дәлелі емес: тізбектің тотықсыздану күйі мен электрон тасымалы да өзгереді. Тотықтырғыш көзін ашылу салдарынан ажырату керек.
Ацидоз әсіресе ишемия модельдерінде ауысуды жиі тежейді; pH қалпына келуі тежеуді алып тастауы мүмкін. Бірақ барлық митохондрияны сөзсіз жабық ұстайтын бір pH жоқ. Магний және аденин нуклеотидтері белгілі режимдерде кальций реттелуі, ақуыз күйі мен Mg–ATP/ADP арқылы қарсы әсер етеді. Потенциал әрі кальций жинақталуына, әрі өткізгіштікке ықпал етеді: «матрикс неғұрлым теріс болса, саңылау әрдайым жабық» деу қарама-қарсы әсерлерді елемейді.[6–8]
Қысқа ашылудан энергетикалық зақымға дейін
Ауысу қысқа және қайтымды болуы мүмкін. Кейбір жүйелерде ол кальцийді босату және редокс-күйді өзгерту тәсілі ретінде қаралады. Бірақ потенциал бояғышының жыпылықтауы mPTP-ні өздігінен анықтамайды: басқа ион ағындары, тыныс тербелістері, фотозақым және митохондрия қозғалысы ұқсас белгі береді. Физиологиялық қызметті әр қысқа төмендеуіне автоматты телімей, расталған механизм және жағдаймен байланыстыру қажет.[6,8]
Тұрақты жоғары өткізгіштікте протондар мен басқа иондар градиентті таратып, тотығулық ATP синтезін азайтады. Бастапқы ажырау протон градиентінің қарсы қысымын азайтып, тынысты кейде жылдамдатады. Ұзақ ашылу ұсақ метаболиттер мен кофакторларды жоғалтып, матрикс көлемін бұзып, тыныс кешендерін зақымдай алады. Сондықтан «саңылау ашылғанда тыныс әрдайым барынша жылдам» деу дұрыс емес: кейін ол төмендеуі мүмкін.
Қайтымды ATP-синтаза қолайлы жағдайда ATP-ні гидролиздеп, энергиясын протондарды матрикстен шығаруға жұмсайды:
Гидролиздің химиялық үлесі:
белсенділіктерді білдіреді; түрлендірілген стандарт күй белгілі pH-ты қабылдайды. Нақты иондық формалар, магний байланысы мен жағдай сандық мәнге әсер етеді. Байланысқан жұмыс бағыты протон тасымалының шығынына және фермент стехиометриясына да тәуелді. төмендеуі кері бағытты жеңілдеткенімен, әмбебап жылдамдықтағы үздіксіз гидролизді дәлелдемейді: ATP мен жұмыс істейтін фермент қажет. IF1 жүйе күйі мен pH-қа қарай кері ATPазалық белсенділікті шектеуі мүмкін. Зақымданған мембранада ATP гидролизімен градиентті ұстауға әрекет энергетикалық сарқылуды күшейтеді.[6–8,23]
Осмостық бөлік еріген заттар мен су қозғалысынан туады. Матрикстегі өтпейтін макромолекулалар, ион қайта бөлінуі және Доннан әсері ісінуге көмектеседі. Идеал сұйылтылған ерітінді үшін Вант-Гофф заңы бағдар береді:
Бұл осмостық белсенді бөлшек концентрациясының рөлін түсіндіреді, тығыз ақуыздық матрикстің дайын сандық моделі емес. Электрбейтараптық, байланысу, идеалдықтан ауытқу және мембрана механикасы қолдануды шектейді. Кристалардың жазылуы ішкі беттің белгілі қорын береді; сыртқы мембрананың геометриясы басқа және көлем қатты өскенде зақымдануы мүмкін.[6,8]
Сыртқы бөгет өзгерсе, мембранааралық ақуыздар цитозольге шыға алады. Цитохром c Apaf-1 және ATP/dATP-пен апоптосома түзуге қатысады, кейін каспаза-9 және әсер етуші каспазалар-3/7 белсенеді. Smac/DIABLO IAP отбасының, соның ішінде XIAP-тың, каспаза тежеуін жеңілдетеді; Omi/HtrA2 және басқа ақуыздар жеке зақым жолдарына қатысуы мүмкін. AIF пен EndoG үшін босап шығу, өңделу және орын ауыстыру маңызды; ішкі саңылаудың пайда болуының өзі жеткіліксіз. Тізім барлық ақуыз міндетті түрде бірге және бір жолмен шығады деген сөз емес.
Жасуша өліміне қатысты дәлдік ерекше қажет. Nakagawa-да CypD тапшылығы кейбір некроздық әсерлерден қорғады, бірақ зерттелген апоптозды тоқтатпады. BAX/BAK-тәуелді сыртқы мембрана өткізгіштігі CypD-тәуелді ішкі ауысудан бөлек дамуы мүмкін. Энергия қоры апоптоздың орындалуына және некроздық зақымға ауысуға әсер етеді, бірақ барлық жасушаны екі режимге бөлетін қалдық ATP-нің әмбебап пайызы жоқ.[9,10]
Ауысуды өлшеу: бір маркер неге жеткіліксіз?
Оқшауланған митохондрия суспензиясында ісіну көбіне жарық шашырауының азаюымен, кальций шығуы сыртқы индикатормен, потенциал сезімтал бояғышпен өлшенеді. Жасушада матрикс кальцеинінің сақталуы және митохондриядан тыс сигналды тиісті басу қолданылады; электрофизиология ішкі мембрананың жоғары өткізгіш күйлерін жазады. Әр әдіс өз сұрағына жауап береді: көлем, бояғыш таралуы немесе белгілі препараттағы ток режимі.
Потенциал ажырау, тыныстың тежелуі, субстрат тапшылығы және mPTP дәлелденбеген зақымда да төмендейді. Кальцеин жоғалуына орналасу мен жасуша сапасының бақылауы қажет; кальций шығуы оны ұстай алу қабілетіне де тәуелді. CsA сезімталдығы мен PPIF өзгерісі түсіндіруді күшейтеді, бірақ зақым режимдері әртүрлі жауап береді. Уақыт тізбегі, бірнеше тәуелсіз белгі және тиісті бақылау бір тартымды графиктен сенімдірек.
Ашылуды алдын алу мен болған зақымнан қалпына келуді ажырату керек. Сынаққа дейінгі жоғары CRC кофактор жоғалған және сыртқы мембрана үзілгеннен кейін жабылуды дәлелдемейді. Потенциалдың қысқа оралуы жасуша сақталуына кепіл емес. Қайтымды ашылу да міндетті түрде бірден қайтымсыздық нүктесі емес: ұзақтық, қатысқан митохондрия саны, метаболикалық қор және басқа зақым нәтиже береді.[6–8,11]
Ишемия мен реперфузия: бірнеше жүктеменің қосылуы
Ишемияда оттегі тапшылығы тотығулық ATP түзілуін азайтады. ATP-тәуелді сорғылар мен кальцийді бақылау бұзылады; ацидоз, метаболиттер және иондық өзгерістер митохондрия күйіне әсер етеді. Кейбір модельдерде төмен pH зақым көбейсе де ауысуды уақытша тежейді. Бұл ишемияда барлық саңылау жабық, митохондриялық зақым жоқ дегенді білдірмейді.
Қан ағынының оралуы оттегіні қалпына келтіріп, pH пен ROS түзілуін өзгертеді және субстраттар әкеледі. Кальций артықтығы мен тотығу стрессі бар кезде қышқылдық тежеудің алынуы ауысуға жағдай жасайды — реперфузиялық pH парадоксының бір түрі. MCU арқылы кіріс, NCLX арқылы шығыс, жасушалық Na/Ca алмасуы және ATP-тәуелді SERCA ықпал етеді. Тін мен кезең тізбекті өзгертеді; барлық инфарктқа бірдей бірнеше минуттық терезе не тек mPTP туғызатын некроз үлесін тағайындауға болмайды.[6,8,32]
Кальций артықтығы басқа жолдармен де зақымдайды. Кальпаиндер-1/2 белгілі модельдерде цитоскелеттік және мембранамен байланысқан ақуыздарды, оның ішінде спектрин, талин және дистрофин кешенін кеседі. Титин, анкирин, коннексин-43 және NDUFS1 сияқты тыныс ақуыздары өзгеруі талқыланады, бірақ нысана жиыны мен себептік үлесі бірдей емес. Гиперконтрактура және сарколемманың механикалық зақымы кардиомиоцит өлімін күшейтеді. Тропонин миокард зақымын көрсетеді, mPTP ашылуының арнайы сынағы емес.
Пре- және посткондициялау қысқа қорғаныс әсерлерін Akt/ERK, GSK3β және митохондрия төзімділігімен байланыстырады. Бұл тәжірибелік кардиопротекцияның маңызды саласы, бірақ сигнал сызбасы клиникалық нәтижені алмастырмайды. Модельдік сынақтан қорғаныс, зақым аймағының азаюы және өлімнің төмендеуі бөлек бағаланады.
Жүйке жүйесі және коллаген VI миопатиялары
Ми ишемиясында NMDA және кальций өткізетін AMPA нұсқалары арқылы қозу жасуша кальцийін арттыра алады. Барлық AMPA бірдей өткізбейді: суббірлік құрамы мен өңделуі маңызды. Митохондриялық жинақталу сақталған қозғаушы күшке тәуелді, ал потенциал жоғалуы тасымал мен ATP-тәуелді иондық қалпына келуді өзгертеді. Бұл ишемиялық жартылай зақым аймағында маңызды. CypD өзгерген тышқандағы ошақты ишемия қорғанысы ауысу рөлін қолдайды, инсульт пациентінде препарат әсерін дәлелдемейді.[12]
Du CypD мен β-амилоид байланысын зерттеп, Альцгеймер моделінде CypD тапшылығымен митохондриялық, нейрондық және мінез-құлық көрсеткіштері жақсарғанын көрсетті. Бұл қолданылған жүйедегі механизм, адам деменциясының емі емес. Паркинсонда α-синуклеин мен I кешен, Хантингтонда мутантты хантингтин, БАС-тың кейбір модельдерінде мутантты SOD1 мен митохондриялық өзгерістер талқыланады. Ортақ кальций және редокс байланыстары бірдей бастапқы себеп не барлық ауруда сезімталдықтың бір тұрақты есеге өсуін білдірмейді.[24,29]
Коллаген VI тапшылығы жасушадан тыс матриксті бұлшықет зақымы және митохондриялық реттеумен байланыстырады. COL6A1, COL6A2 және COL6A3 нұсқалары Бетлем мен Ульрих фенотиптерін қамтитын миопатия спектріне негіз бола алады. Irwin тапшылық модельдеріндегі дисфункция мен апоптозды, Tiepolo Debio 025 арқылы митохондриялық қасиеттер мен тышқан фенотипінің жақсаруын көрсетті. Соңғы жұмыс нақты тышқандарға қатысты: оны адамның бұлшықет дистрофиясын емдеудегі алиспоривирдің II/III фазалық дәлелі деуге болмайды.[30,31]
Циклоспорин A: механизм және клиникалық тексеру
CsA — бірнеше циклофилинді байланыстыратын циклдік пептид. CypD арқылы тәжірибеде төзімділікті өсіре алады, бірақ тек PPIF-ке таңдаулы тежегіш емес. Цитозольдік циклофилин A кешені кальциневринді тежеп, иммундық басуға қатысады. Нефроуыттылық пен дәрілік әрекеттесу қаупі «тек митохондрияда жұмыс істейді» деген сипаттамамен жоғалмайды.
Piot 2008 пилоты инфаркт реперфузиясы алдында CsA бергенде зақым азаю белгісін хабарлады. Шағын таңдамада белгілі биомаркерлер мен бейнелеу өлшенді; бұл әр пациентте некроз азаюының кепілі немесе өмір сүрудің дәлелі емес. Белгі үлкенірек сынақты негіздеді.[26]
CIRCUS-та алдыңғы STEMI және кінәлі артериясы жабық 970 пациентті қан ағымы қалпына келер алдында көктамырлық CsA 2,5 мг/кг немесе плацебоға рандомизациялады. Басты құрама нәтиже өлім, алғашқы ауруханадағы жүрек жеткіліксіздігінің нашарлауы, соған қайта жату және бір жылдағы қолайсыз сол қарынша ремоделдеуін қамтыды. Бағаланатын топта ол CsA-мен 59,0%, бақылауда 58,1% болды; сенімді артықшылық жоқ (). Бұл тексерілген стратегияның клиникалық бейтарап нәтижесі.[27]
Зақым тініне жеткізу, дәрілік форма, уақыт, no-reflow және антитромбоцитарлық ем сияқты фондық әсерлер модель мен сынақ айырмасының ықтимал түсіндірмелері ретінде талқыланады. CIRCUS жеткізу нақты сәтсіздік себебі болғанын дәлелдеген жоқ. Бейтарап нәтиже өткізгіштік құбылысының өзін де жоққа шығармайды. Препарат, доза, уақыт пен популяция тексерілді; басқа стратегия өз дерегін қажет етеді.
MITOCARE алғашқы коронарлық араласуға TRO40303 қосуды тексеріп, таңдалған көрсеткіштер бойынша күтілген инфаркт зақымының азаюын растамады. TSPO мен сыртқы мембрана байланысы теріс клиникалық нәтижені TSPO ешбір механизмге қатыспайды деген генетикалық дәлелге айналдырмайды. Дәріні сынау және ақуыздың қажеттілігін тексеру бөлек міндеттер.[28]
| Қосылыс немесе фактор | Зерттелген жүйедегі әсер | Түсіндіру шегі |
|---|---|---|
| Циклоспорин A | CypD-тәуелді сезімталдықты тежейді; басқа циклофилиндерді де байланыстырады | Кальциневриндік иммундық басу; CIRCUS режимі пайда көрсетпеді |
| Алиспоривир / Debio 025 | Әдеттегі кальциневриндік иммундық басу механизмінсіз циклофилиндерді тежейді | Тек CypD-ге таңдаулы емес; келтірілген коллаген VI жақсаруы тышқанда |
| NIM811 | CsA туындысы, кей циклофилин және кальциневрин әсерін ажыратады | Тәжірибелік нейроқорғаныс инсульт не бас-ми жарақаты емін бекітпейді |
| Санглиферин A және туындылары, зерттелетін NV556 | Циклофилин байланыстыратын басқа класс | CsA тәрізді кальциневрин тежелмеуі барлық иммундық не жағымсыз әсерді жоймайды |
| Бонгкрек қышқылы | ANT-ті -күйде тұрақтандырады | ADP/ATP алмасуының уытты бөгегіші; зертханалық зонд |
| Карбоксиатрактилозид | -күйді тұрақтандырып, кей режимде ауысуды жеңілдетеді | Уытты тәжірибелік индуктор, емдік физиологиялық реттеуші емес |
| TRO40303 | TSPO-мен байланыстырылатын модуляция | MITOCARE кардиопротекцияны растамады; саңылау құрылымын өлшемеді |
| Магний және аденин нуклеотидтері | Кальций сезімталдығы, кешендер мен ақуыз күйін өзгертеді | Буфердегі әсер тағамдық қоспамен емдеуді дәлелдемейді |
Метаболикалық қолдау және қоспалар туралы қорытынды шегі
Магний Mg–ATP реакциялары үшін маңызды, тапшылығының дербес клиникалық салдары бар. Бірақ тәжірибедегі ион бәсекесі жүрек не ми mPTP-сін жабатын әмбебап ішу дозасын бермейді. Матрикс концентрациясы, тінге қолжетімділік және бастапқы күй буферден өзгеше. Дәлелденген тапшылықты түзету мен саңылауды тәжірибеде тежеу — бөлек мақсаттар.
CoQ электрон тасымалы және липидтік редокс алмасуына қатысады. Тотықсызданған қорды сақтау тотығу жүктемесін өзгерте алады, бірақ қоспа әсері жеткізу, тін және ауруға тәуелді. CoQ10 және полифенолдар туралы материал молекула қызметі мен препарат қабылдау дәлелін ажыратады. Жалпы антиоксиданттық рөл CypD немесе саңылаудың кепілді тікелей бөгелуін білдірмейді.
Липой қышқылы мен дигидролипоат редоксқа қатысады; ферментке байланысқан липоил топтарының қызметі бос енгізілген заттан бөлек. Тиолды зертханада қалпына келтіру тірі тінде Cys203-ті арнайы түзетуді дәлелдемейді. Ацетил-L-карнитин ацил топтары және субстрат қолжетімділігіне қатысады; бұл ацетил-L-карнитин мақаласында талданады. NADH-ты SIRT3 белсендіргіші деуге болмайды: деацетилаза реакциясы NAD⁺ пайдаланады, NAD⁺/NADH арақатынасы бөлек талдауды қажет етеді.
Магний, CoQ, липой қышқылы және ацетил-L-карнитинді біріктіру әрқайсысына биохимиялық жебе табылғаны үшін дәлелденген «саңылауға қарсы» режим болмайды. Нақты экспозиция, нысана тін, өлшенген механизм, клиникалық нәтиже және үйлесім қауіпсіздігі туралы дерек керек. Бұл шек компоненттердің метаболикалық биологиясын сақтап, нақты емдік тиімділік тұжырымын шектейді.
Деректерді оқу және дайындау әдісі
mPTP-ні үш деңгейде қарастырған жөн: ішкі мембрана таңдамалылығының функционалдық жоғалуы, өткізгіш жолдың молекулалық модельдері және ауру нәтижесін клиникада жақсарту мүмкіндігі. Біріншісін электрофизиология, биохимия мен генетика қолдайды; екіншісінде ANT және ATP-синтаза түсіндірмелері бәсекелес; үшіншісі нақты стратегия сынағын қажет етеді. CypD көптеген модельде жақсы негізделген реттеуші болғанымен, қалған сұрақтарды автоматты шешпейді.
Тұрақты өткізгіштік кальций артықтығын, градиент жоғалуын, ATP сарқылуын және осмостық зақымды біріктіреді. Әр кезең шартты: тыныс субстратқа, гидролиз ATP мен фермент шектеуіне, ақуыз шығуы сыртқы мембранаға, өлім энергия және сигнал бұзылыстарының қосылуына тәуелді. Осы жағдайлар қайтымдылықты анықтайды және бір сызба диагноз не ем тағайындауға жеткіліксіз екенін түсіндіреді.
Бұл ғылыми баяндаушы шолу берілген мақаладан негізгі механизмдік және клиникалық тармақтарын сақтап дайындалды. 2026 жылғы 8 қазанда анықталған қайшылықтар бойынша бастапқы жарияланымдар нысаналы тексерілді: ANT/ATP-синтаза генетикасы, CypD-тәуелді өлім, SIRT3/CypD, Cys203 және CIRCUS. Сәйкес келмеген библиографиялық идентификаторлар түзетілді; CypD құрылымы туралы расталмаған бастапқы жазба дәлел ретінде қолданылмады. Бұл бүкіл әдебиетті жүйелі іздеу емес; ресми GRADE бағасы немесе сыртқы сарапшылық рецензия мәлімделмейді. Сандар тәжірибелік жағдаймен беріледі, клиникаға дейінгі нәтиже адам дерегінен ажыратылады.
Жиі қойылатын сұрақтар
mPTP-ні қай ақуыз түзеді?
Түпкілікті әмбебап құрылым анықталмаған. ANT және ATP-синтазаның бірнеше моделі қолдау табады, бірақ қайта құрастыру мен генетикалық жою нәтижесі толық үйлеспейді.
Циклофилин D не істейді?
Матрикстегі CypD кальций және басқа жүктемеге сезімталдықты реттейді. Жою не тежеу белгілі модельді қорғай алады, барлық зақым жолын жоймайды.
Кальцийдің бір ашылу шегі бар ма?
Жоқ. Еркін және жалпы кальций бөлек; CRC фосфат, субстрат, кальций кірісі мен шығысы, температура және әдіске тәуелді.
Потенциал жоғалуы ашылуды дәлелдей ме?
Өздігінен дәлелдемейді: тыныс тежелуі мен ажырау да потенциалды азайтады. Бірнеше сәйкес белгі мен бақылау қажет.
Циклоспорин инфаркт нәтижесін mPTP арқылы жақсарта ма?
Тәжірибелік қорғаныс CIRCUS режимінің клиникалық жақсаруына айналмады. Үлкен сынақта PCI алдындағы CsA негізгі нәтижені жақсартқан жоқ.
Қоспалар үйлесімі саңылауды жаба ала ма?
Магний, CoQ, липой қышқылы мен карнитин қызметтері мұны дәлелдемейді. Тіндік экспозиция, механизм және клиникалық нәтижеге дерек керек.