
Қоңыр және беж май тіні: UCP1, суық және капсиноидтар
Митохондриялық жылу, адренергиялық сигнал және глюкоза/липид сіңуі. Адамдағы суық, капсиноид, мирабегрон зерттеулері және ПЭТ пен клиникалық қорытынды шектері.
Митохондриялық жылу, адренергиялық сигнал және глюкоза/липид сіңуі. Адамдағы суық, капсиноид, мирабегрон зерттеулері және ПЭТ пен клиникалық қорытынды шектері.
Қоңыр май тіні (BAT) мен индукцияланатын беж адипоциттер субстрат тотығуынан алынған энергияның бір бөлігін жылуға айналдырады. Олар глюкоза мен липид алмасуына қатысады. Бірақ тінді анықтау, оны белсендіру және семіздікті емдеу тиімділігін дәлелдеу — бөлек міндеттер. Суық адамның BAT тінін белсендіреді; капсиноидтар мен адренергиялық препараттарға қатысты шағын зерттеулер бар. Олар міндетті арықтауды немесе әмбебап «термогендік қоспалар жинағын» негіздемейді.
Бұл ғылыми баяндау шолуы жасуша дамуын, митохондриялық биофизиканы, жүйкелік сигналдарды және клиникалық өлшемдерді байланыстырады. Жасушалық тәжірибе, тышқан моделі, бақылаулық когорта және адамдағы араласу нәтижелерінің шегі бөлек қарастырылады.
Ақ адипоциттер (WAT) триглицеридтерді сақтап, лептин, адипонектин сияқты сигналдарды бөледі. Қоңыр жасушада ұсақ липид тамшылары мен кристалары дамыған митохондриялар көп. Қылтамырлар оттегі мен субстрат әкеліп, жылуды таратады; симпатикалық ұштар норадреналин бөледі. Тіннің түсіне цитохромдар мен қанмен қамтылу әсер етеді. Тамшы өлшемі, митохондрия үлесі мен тамыр тығыздығы түрге, депоға және белсенділікке тәуелді. «Митохондрия көлемнің 40–50%-ын алады» немесе «қылтамыр 4–6 есе көп» адамға ортақ тұрақты көрсеткіш емес. Липид тамшысының PLIN1/PLIN2/PLIN5 бар фосфолипидті моноқабаты болады; ол мембраналық вакуоль емес.
Seale (2008) тышқанның классикалық қоңыр адипогенезін қаңқа бұлшықетімен ортақ Myf5-оң жасушалық желімен байланыстырды. Pax7 және En1 туыстас популяцияларды сипаттайды. Бұл қоңыр адипоцит жетілген бұлшықет жасушасынан айналды дегенді білдірмейді. «Барлық BAT Myf5+, барлық WAT/beige Myf5−» бөлінісі тым қатаң: нәтиже депоға және желіні қадағалау әдісіне тәуелді. PDGFRα, CD34, Sca-1, α-SMA тәжірибедегі ішінара қабаттасқан стромалық/периваскулярлық популяцияларды анықтайды; Sca-1 әмбебап адам маркері емес.
Беж жасушалар прекурсорлардан түзілуі және бұрын термогендік болған күйден қайта белсендірілуі мүмкін; жетілген адипоцит ауысуының үлесі модельге тәуелді. Wu (2012) оларды ерекше термогендік тип ретінде бөлді. Стимул тоқтағанда UCP1 төмендеп, тамшы іріленуі мүмкін, бірақ қайта белсендірілу қабілеті сақталады. Классикалық BAT та өзгермейтін емес, бейімделгіш.
Нәрестеде жауырынаралық, бүйрек маңы және тамыр маңы деполары маңызды. Ересекте белсенді аймақтар мойында, бұғана үстінде, омыртқа маңында және көкірекаралықта жиі анықталады; жасушалық құрамы әркелкі. Cypess, van Marken Lichtenbelt, Virtanen (2009) FDG-ПЭТ/КТ және тін зерттеулері арқылы ересек BAT белсенділігін растады. ZIC1/LHX8, TMEM26/TBX1/CITED1/CD137 бағдарламаларды сипаттайды, бірақ биопсия профилі адам эмбриондық желісін немесе депо тереңдігі бойынша қатаң бөліністі дәлелдемейді. Бүкіл эпикардтық не шажырқай майын BAT деп атауға болмайды.
PRDM16 — мырыш саусақтары бар транскрипциялық корегулятор. C/EBPβ, PPARγ және коактиваторлармен әрекеттесіп термогендік бағдарламаны қолдайды, CtBP кешендері балама бағдарламаларды бәсеңдете алады. PR-домен болуы өздігінен дәлелденген гистон метилтрансферазалық белсенділік емес. PRDM16 жоғалуының әсері даму кезеңіне, тінге және компенсацияға тәуелді; кез келген эмбрионда барлық BAT жоғалады деу қате.
PGC-1α (PPARGC1A) ДНҚ-мен өзі байланыспайды. Ол PPAR, тиреоидтық рецепторлар, NRF1/NRF2-GABP ядролық тыныс факторларын коактивациялап, TFAM және митохондриялық гендерді қолдайды. TFAM мтДНҚ ұйымдастыруына, транскрипциясы мен сақталуына қатысады, репликация ферменті емес. DIO2 жергілікті T4-тен T3 түзеді. SIRT1 арқылы PPARγ деацетилденуі, зерттелген жүйелердегі Lys268/Lys293 қоса, PRDM16 байланысын жеңілдетеді; бұл бүкіл бежденудің жалғыз міндетті шарты емес. Байланыс митохондриялық биогенез және PGC-1α материалында түсіндіріледі.
«Ағаруда» термогендік экспрессия азайып, митохондриялар мен CIDEA/CIDEC-FSP27 қатысатын тамшы бірігуі өзгереді. Аутофагия, қабыну, микроРНҚ, қартаю және иннервация әсер етеді. PINK1 импорт пен мембраналық потенциал бұзылғанда, әсіресе деполяризацияда тұрақтанады; «гиперполяризация → PINK1 → митохондрияның міндетті бес есе азаюы» дұрыс емес. Термобейтараптық киімге, қозғалысқа, жасқа және жағдайға байланысты, бірыңғай бөлме температурасымен анықталмайды.
| Белгі | WAT | Классикалық BAT | Беж жасуша |
|---|---|---|---|
| Тамшылар мен митохондриялар | Әдетте бір ірі тамшы; функционалдық митохондриялар | Көп тамшы, дамыған кристалар | Стимул мен оның тоқтауына қарай өзгереді |
| UCP1 | Кәдімгі ақ жасушада аз/анықталмайды | Айқын, күйге қарай реттеледі | Индукцияланатын бағдарлама |
| Негізгі қызмет | Энергия сақтау және эндокриндік сигнал | Жылу мен субстрат қолдану | Бейімделгіш термогендік икемділік |
| Шығу тегі | Бір әмбебап желі емес | Myf5 байланысы тышқанда жақсы зерттелген | Бірнеше прекурсор мен күй |
| Қосымша жол | Зат алмасу және субстрат циклдері | UCP1 және өзге энергия шығыны | Креатин/кальций циклдері тәжірибеде зерттелген |
Адам UCP1 ақуызы SLC25 тобына жатады, локусы 4q31.1; канондық ақуызда 307 аминқышқыл, массасы шамамен 33 кДа. Үш қайталанатын домен алты трансмембраналық спираль құрайды. Тұздық байланыс желілері мен орталық қуыс тұрақты ашық су порасы емес, тасымалдаушы механизмін талқылауға мүмкіндік береді.
Бастапқы құрылымдық библиография түзетілді: RCSB8HBV — нуклеотидсіз UCP1,2,51 Å, Kang және Chen (2023) «Structural basis for the binding of DNP and purine nucleotides onto UCP1», DOI 10.1038/s41586-023-06332-w. 8G8W — GTP тежеген күй, 3,80 Å, Jones. 4C9G — ашытқы ADP/ATP тасымалдаушысы, UCP1 емес. Құрылым байланыс пен конформацияны көрсетеді, тірі жасушаның протон ағынын тікелей өлшемейді.
I, III, IV тыныс кешендері H+ иондарын матрикстен мембранааралық кеңістікке (IMS) айдайды; II кешен протон помпасы емес. IMS-тен матрикске қайтатын бір моль H+ үшін ΔΨ=Ψmatrix−ΨIMS, ΔpH=pHmatrix−pHIMS деп аламыз:
F — Фарадей тұрақтысы, R — газ тұрақтысы, T — абсолют температура. Матрикс потенциалы теріс, ΔpH оң болса, ішке өту энергия жағынан тиімді. ΔΨ=−0,170 В, ΔpH=0,8, T=310 K кезінде шамамен −21,2 кДж/моль H+ шығады. Бұл таңбалары анықталған мысал, барлық митохондрияға міндетті күй емес.
ATP-синтаза қайту ағынымен ADP және Pi-ден ATP түзеді. UCP1 реттелетін айналма жол жасап, тотығудың ATP синтезімен түйісуін азайтады және жылуды көбейтеді. ATP-синтаза міндетті түрде бұғатталмайды: жасушаға ATP қажет. Тыныс оттегі, отын және фермент шегінде үдейді, автоматты Vmax-қа жетпейді; потенциалдың міндетті −100…−120 мВ деңгейіне түсуі жоқ. ΔG=Q теңестіруі қате: жылу энергия теңгерімімен, ал бос энергия энтропия мен жұмыс мүмкіндігімен байланысты.
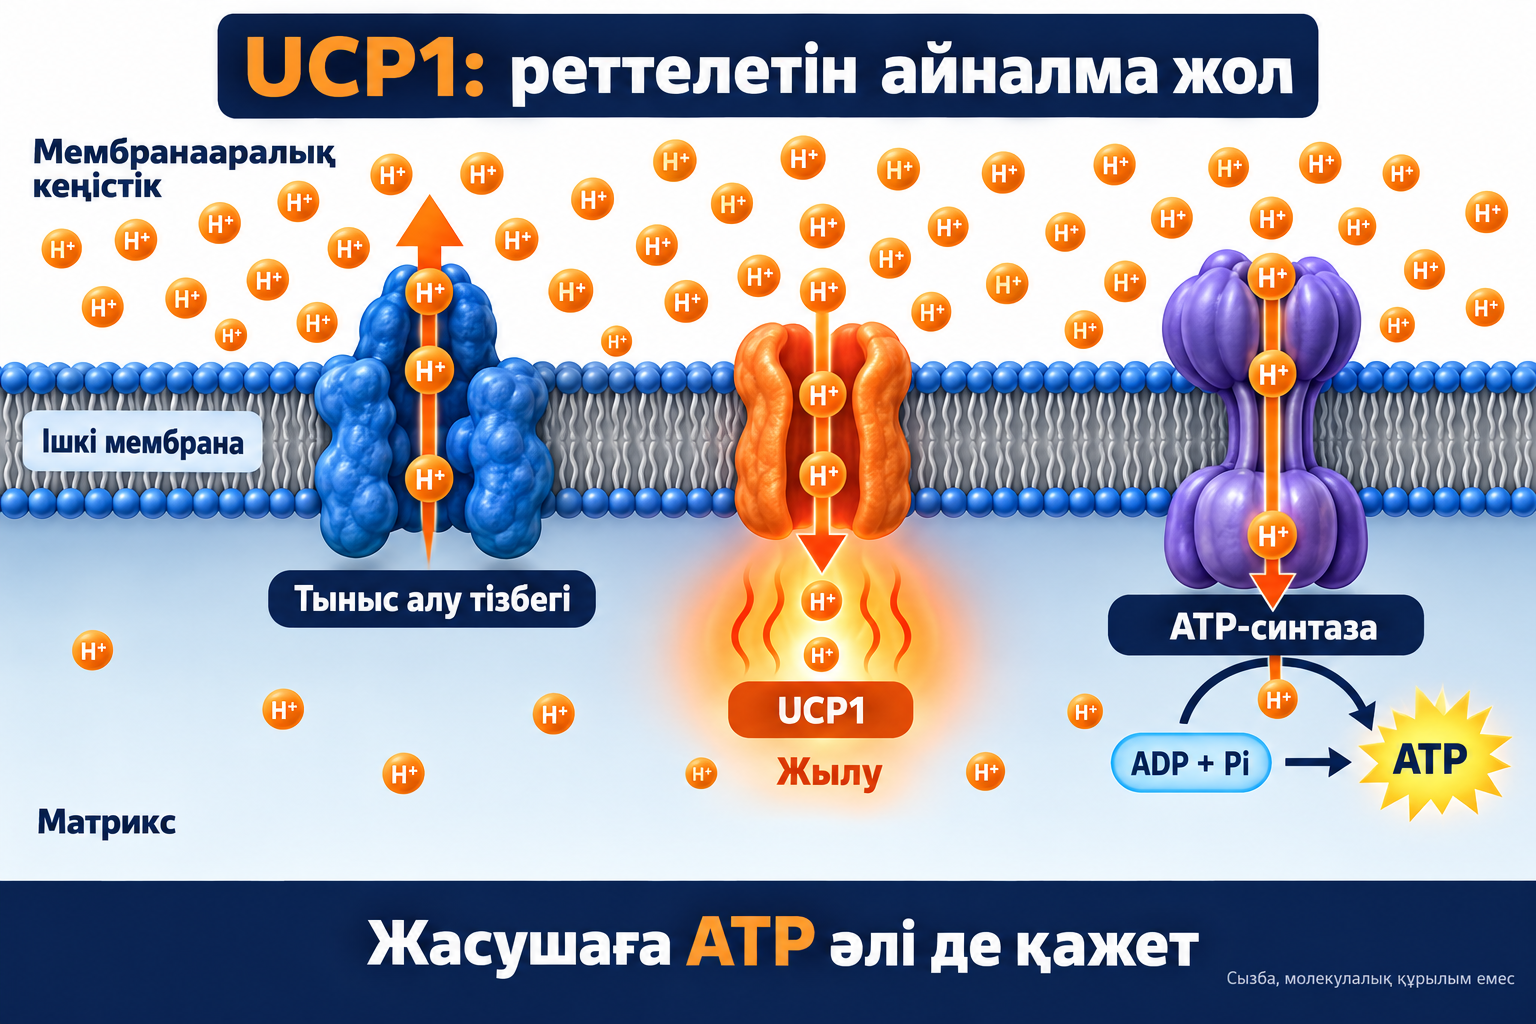
ATP, ADP, GTP, GDP UCP1-ді тежейді. Бос/Mg-байланысқан түрлер, pH және концентрация әсері жағдайға тәуелді. Arg83/Arg182/Arg276 секілді негіздік қалдықтармен орталық байланыс конформация ауысуын шектейді. Бір құрылымнан әмбебап IC50 немесе толық стерикалық су-пора «құлпын» шығару мүмкін емес.
Ұзын тізбекті май қышқылдары LCFA UCP1 белсендіруіне де, отын тотығуына да қатысады. Тарихи cycling моделі протондалған қышқылдың қосқабаттан өтуін, матриксте H+ беруін және анионның сыртқа тасымалын ұсынады. Кофакторлық модельдер карбоксилді ақуыздағы протон тасымалымен байланыстырады. Fedorenko (2012) митопласттарда — сыртқы мембранасы алынған митохондрияларда — ток өлшеді. Май қышқылына тәуелділік қолдау тапқанымен, LCFA құйрығы ATP-ді қайтымсыз ығыстырады немесе жалғыз Arg83–Glu190–Lys268 жолы толық дәлелденді деу артық. Реттеу қайтымды және тек адренергиялық сигналмен шектелмейді.
Симпатикалық норадреналин β-рецепторларға әсер етеді. β3 кеміргіште маңызды; адамда β2 және β1 де, депо мен модельге қарай, қатысады. Blondin (2020) адамдағы β2 жауапты көрсетті. β3 десенситизациясының аздығы реттеу жоқ немесе тоқтаусыз белсенділік кепілді дегенді білдірмейді.
GDP/GTP алмасуы Gs-ті белсендіреді, аденилатциклаза ATP-ден cAMP пен пирофосфат түзеді. cAMP кеңістіктік ұйымдасқан PKA кешендерін белсендіреді. PKA PLIN1-ді фосфорлап, ABHD5/CGI-58 арқылы ATGL/PNPLA2 әсерін жеңілдетеді, HSL/LIPE белсендіруі мен орын ауыстыруына көмектеседі. ATGL TG-ден DAG, HSL негізінен DAG-ден MAG түзеді; MGLL глицерин мен қышқылға дейін ыдыратады. Кеміргіштің фосфосерин нөмірлері мен еселік әсерін адамға тексерусіз көшіруге болмайды. ATGL көбіне sn-1,3-DAG түзеді, тек sn-1,2-DAG емес.
ACSL1 LCFA-ны ацил-CoA-ға белсендіреді; CPT1, SLC25A20 транслоказасы және CPT2 ұзын ацил қалдығын матрикске жеткізеді. β-тотығу ацетил-CoA мен тотықсызданған эквиваленттер береді. NADH I кешенге, ацил-CoA-дегидрогеназалар ETF/ETF: QO арқылы убихинонға электрон береді, II кешенге емес. Реттелуі карнитиндік шаттл және CPT1 материалында түсіндіріледі.
Жедел белсендіру мен тінді рекруттау әртүрлі. PKA/p38 MAPK, ATF2/CREB, PGC-1α, PPARγ/RXR UCP1, DIO2 және тотығу ферменттерінің транскрипциясын өзгертеді. CBP/p300 және хроматин ремоделденуі қатысады, бірақ әр аралық қадам адамда бірдей дәлелденбеген.
Kazak (2015) UCP1-ден тәуелсіз креатин циклін сипаттады: креатин фосфорлануы және фосфокреатин гидролизі жиынтық ATP гидролизін береді. Кейінгі механизмдік жұмыстар CKB және TNAP/ALPL-ді қарастырады; бәрін CKMT1/2-ге телу қарапайымдату:
Cr — креатин, PCr — фосфокреатин. ATP гидролизінің стандарт ΔG°′ шамамен −30,5 кДж/моль; жасушалық ΔG концентрацияларға тәуелді. Бұл цикл креатин қоспасынан клиникалық маңызды BAT әсері барын дәлелдемейді.
Ikeda (2017) беж жасушада SERCA2b/RyR2 кальций циклін зерттеді. SERCA Ca2+-ті ЭР-ға қайтаруға ATP жұмсайды; каналдан шығуы шығынды ұстайды. Номинал стехиометрия — бір ATP-ге екі Ca2+, нақты түйісуі өзгереді. IP3R, α1 сигналдары қатысуы мүмкін; RyR2 үнемі ашық күй адамға ортақ физиология емес. Дерек негізінен тәжірибелік; Ucp1-null тышқанның қалған жылуын адамның бекітілген 30–50%-ы деп есептеуге болмайды. Мұнда ATP алдымен түзіліп, кейін жұмсалады; UCP1 оның синтезін айналып өтеді.
Инсулин INSR–IRS–PI3K–Akt–TBC1D4 арқылы GLUT4-ті жылжытады. Адренергиялық глюкоза сіңуі GLUT1, cAMP және өзге жолдарды қамтуы мүмкін, түгел AMPK/GLUT4 жолына сыймайды. Суық пен инсулин перфузияға, сіңуге және тотығуға әртүрлі әсер етеді. Грамына жоғары сіңіру аз BAT депосы бүкіл организм глюкозасының негізгі тұтынушысы деген сөз емес.
Глюкоза гликолизге, тотығуға, лактатқа, глицерол-3-фосфатқа, липид толықтыруға жұмсалады; гликоген сақталуын абсолютті жоққа шығару дұрыс емес. MPC1/2 пируват тасиды, PDH ацетил-CoA, пируваткарбоксилаза оксалоацетат түзеді. Карбоксилдену — анаплероз; PDH цикл аралықтарының таза өсімін бермейді. Барлық сіңген глюкоза бірден жылуға айналмайды.
Қылтамырдың люминал бетіндегі, GPIHBP1 ұйымдастыратын LPL хиломикрон/VLDL TG-сын гидролиздейді. CD36/FATP қышқыл сіңуіне көмектеседі, ApoB-ремнанттарын негізінен бауыр тазалайды. GPI-якорь GPIHBP1-ге тиесілі, LPL-дің өз якорі емес. Bartelt (2011) тышқанда күшті әсер көрсетті. Атеросклероздан қорғаныс бауырдың ApoE/LDLR клиренсіне де тәуелді: TG гидролизі ApoB бөлшегін жоюға тең емес. Бұл адамның MASH немесе инфаркт профилактикасын дәлелдемейді.
Бауыр/бұлшықеттегі артық DAG және церамидтер PKCε, PP2A, Akt арқылы инсулин сигналын бұзуы мүмкін. BAT субстратты қайта бөлуі ықтимал, бірақ адамдағы себептік үлес пен көлемді араласу зерттеуі анықтауы керек. Becher (2021): 52487 пациенттің 134529 онкологиялық ПЭТ/КТ; анықталатын BAT кей аурудың төмен таралуымен байланысты. Бұл қалдық араласуы бар ретроспективалық байланыс, дәлелденген алдын алу немесе әмбебап 56/42/35% қауіп төмендеуі емес.
| Сигнал | Көзі мен жолы | Шегі |
|---|---|---|
| NRG4 | BAT-та бай фактор, ErbB, бауыр липогенезі | Тышқан механизмі адам MASH емін дәлелдемейді |
| BMP8b | Жергілікті адренергиялық сезімталдық, орталық реттеу | Орталық енгізу ГЭБ-дан еркін өтуді дәлелдемейді |
| FGF21 | Жиі бауыр басым; FGFR/β-Klotho | BAT үлесі жағдайға тәуелді |
| 12,13-diHOME | Линолеат, CYP-эпоксид, sEH; қышқыл тасымалы | Суық/жаттығу жауабы әмбебап пайдалы емес |
| Иризин/FNDC5 | Бұлшықет, αV интегриндер, кейінгі каскад | Адамдағы сандық үлес пен өлшеу күрделі |
| ANP/BNP | Жүрек; NPR1–cGMP–PKG–p38 | Жүрекке әдейі ауыр жүктеме беру себебі емес |
Lynes еңбегіндегі 12,13-diHOME деректері мен 2–3 суреттеріне 2026 жылы авторлық түзету жарияланды; авторлар түсіндіру мен қорытынды өзгермегенін хабарлады.
Терілік суық афференттер, TRPM8 қоса, жұлын және латерал парабрахиал желі арқылы преоптикалық аймаққа сигнал жеткізеді. DMH/rRPa тежелуі алынғанда IML арқылы симпатикалық шығу күшейеді. Толық схема көбіне кеміргіште зерттелген. TRPM8 ментол мен потенциалға да жауап береді; 15–28 °C ауаға қатаң шек емес. Суық вазоконстрикция мен бұлшықет жылуын да туғызады. Көзге көрінетін қалтырау болмаса да бұлшықет қатысуы мүмкін; шек жеке, әмбебап 15 °C емес.
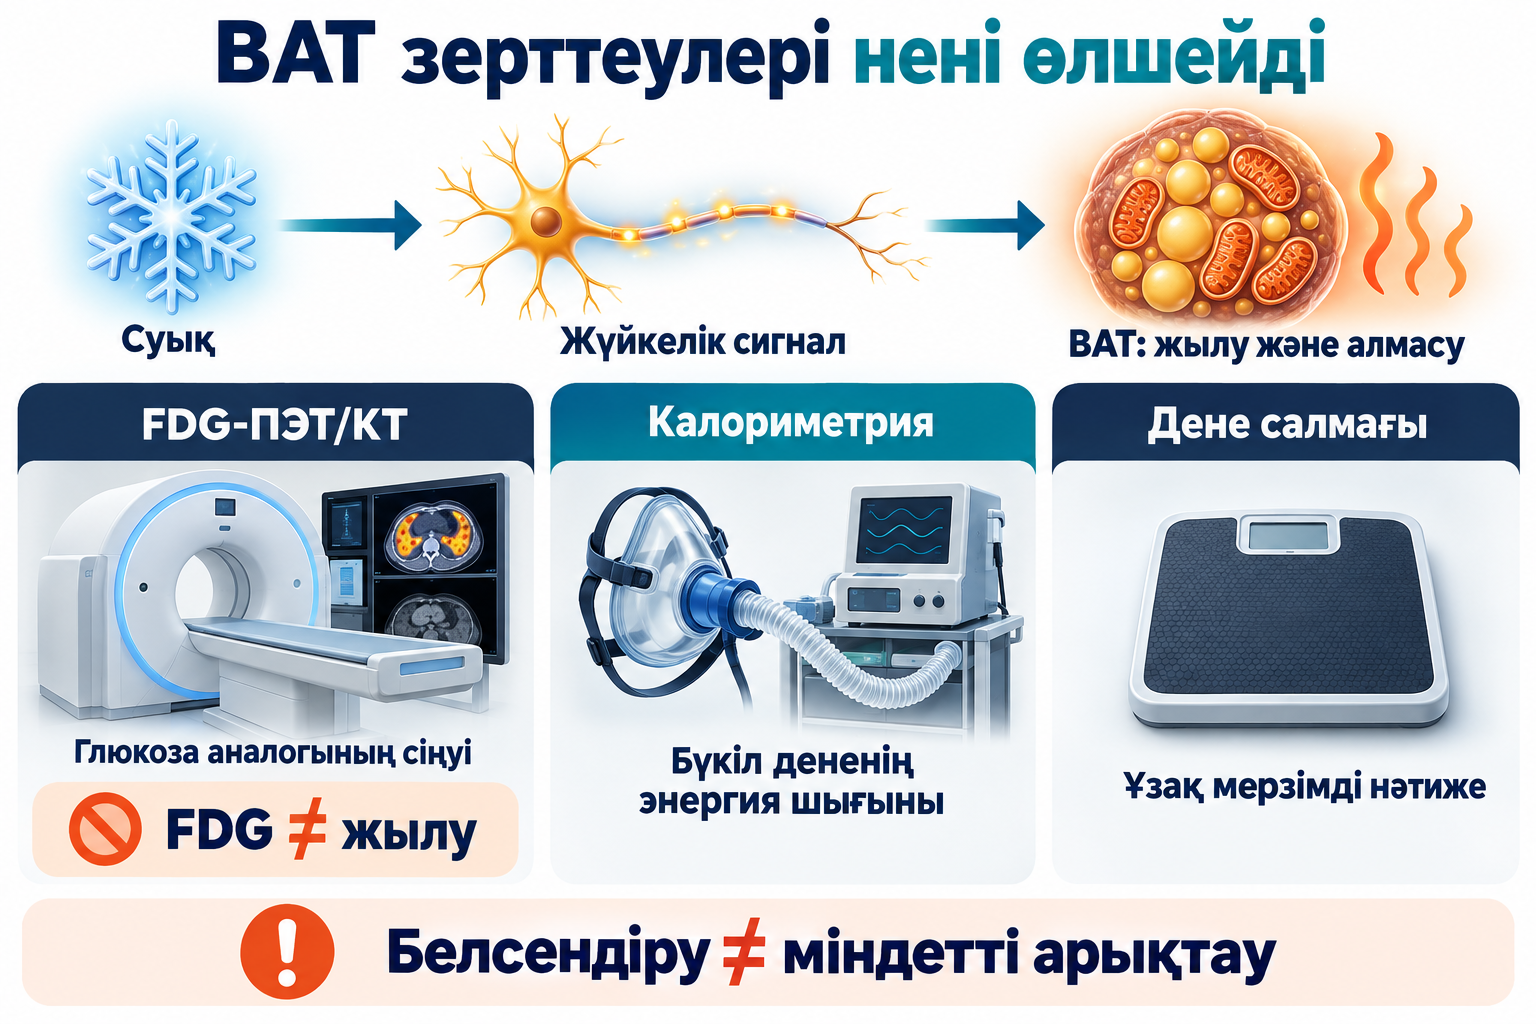
CIT — суықтағы және таңдалған жылы салыстырудағы энергия шығыны айырмасы, тәулік бойы базал алмасу өсімі емес. Yoneshiro (2013): 17 °C, күн сайын екі сағат, алты апта; капсиноидтың бөлек тармағы 9 мг/тәулік, он қатысушы. Бұл зерттеу жағдайы, жалпы тағайындау емес. Van der Lans (2013) басқа бейімделу кестесін қолданды; біреуін семіздік емінің «алтын стандарты» деуге болмайды.
Құрал екі сағатта қосымша жылдамдықты 180 ккал/тәулік деп берсе, тұрақты жылдамдықтың арифметикалық мысалы:
Бұл бірлік ауыстыруы, нақты сынақ бағасы емес. Қысқа жауапты 365 күнге көбейтіп 4–6 кг май жоғалтуға уәде беру ұзақтықты, тәбетті, компенсацияны, дене құрамын елемейді.
Жанама калориметриядағы RER=VCO2/VO2 — шығарылған CO2 мен қолданылған O2 ағындарының қатынасы. Тұрақты күйде жасушалық RQ-ға жуықтайды; 0,7 шамасы май тотығуын, 1 көмірсу басымдығын көрсетеді, ақуыз бен тұрақсыз күй шектеуі бар. RER алмасудың BAT-та болғанын немесе тек май отыны қолданылғанын дәлелдемейді.
FDG жасушаға еніп, фосфорланған соң көбіне FDG-6-фосфат түрінде ұсталады. Сигнал глюкоза аналогын сіңіру/фосфорлауды көрсетеді, UCP1 не жылуды тікелей емес. Инсулин, гликемия, қан ағымы, суық, дәрілер, маусым, сегментация көрінетін көлемді өзгертеді. Теріс ПЭТ термогендік жасушалар мүлде жоқ дегенді білдірмейді. BARCIST1.0 — Chen, Cell Metabolism 2016, бастапқы Diabetes сілтемесі емес. HU−190…−10 май тығыздығы мен майсыз массаға SUV нормалауын қамтиды; тұрақты SUVmax1,5–2 толық стандарт емес. SUVlean≥1,2 мәні SUVbody≥1,2/(LBM/BM)-ге сай; LBM — майсыз, BM — жалпы масса. Әдіс/метрика көрсетілуі керек; 50–250 мл әмбебап BAT көлемі емес. Сәулелендіретін ПЭТ/КТ қоспа әсерін күнделікті тексеру құралы емес.
Капсаицин TRPV1 — жылу мен қышқылға да сезімтал полимодал селективті емес катион каналын белсендіреді; ол жай потенциалға тәуелді канал емес. Ащы капсаициноидта амид байланысы, ал CH-19 Sweet капсиаты/дигидрокапсиаты секілді ащы емес капсиноидта эфир байланысы бар. Жылдам гидролиз таралу мен төзімділікті өзгертеді, бірақ асқорыту әсері болмайтынына кепіл жоқ. Ішектік сенсорлық/симпатикалық жол тәжірибеде қолдау тапқан; барлық адам жауабының жалғыз вагус–NTS механизмі дәлелденбеген.
Капсиноид сынақтары шағын және суррогаттар өлшейді. Snitker (2009) және Yoneshiro дозалары, мерзімі, нәтижелері әртүрлі; олар міндетті 100–160 ккал/тәулік әсері бар 9–12 мг/алты апталық әмбебап режим емес. Бастапқы ПЭТ-теріс адам бейімделуі мүмкін; BAT ғана жалғыз механизм деген абсолют дәлел жоқ. Тағам бұрышы мен стандартталған препарат бірдей емес.
Ментол TRPM8 және салқындық сезімін белсендіреді. Жасуша/жануарда Ca2+/CaMKII, термогендік гендер зерттеледі, бірақ сезім адамның BAT жылуын дәлелдемейді.100–150 мг не терілік гель үшін әмбебап +8–12% алмасу/инсулин сезімталдығы емі белгіленбеген.
Ресвератрол PDE, Epac, AMPK, NAD+/SIRT1, PPARγ деацетилденуі, PRDM16 арқылы зерттеледі. Кәдімгі ауызша дозада SIRT1/AMPK-тың қарапайым әмбебап тікелей активаторы деу дұрыс емес: субстрат, концентрация, биожетімділік маңызды. Куркумин, NF-κB, қабыну, микроРНҚ — негізінен тәжірибелік беждену болжамдары.
EGCG биохимиялық жүйеде COMT-ты тежеуі мүмкін; NET арқылы норадреналинді қайта сіңіру және жасушаішілік метаболизм де сигналды тоқтатады. COMT жалғыз басты синапстық жол емес. Экстракт адам BAT-та норадреналин әрекетін 3–5 есе ұзартады деген дәлел жоқ. Кофеин қалыпты концентрацияда көбіне аденозин рецепторын бөгейді; PDE-ні елеулі тікелей тежеу үшін жоғары деңгей қажет. A1 әдетте Gi, A2A — Gs және термогенезді қолдауы мүмкін; екеуін бөгеу бірдей «тежегішті алу» емес. Dulloo (1999) жасыл шай/кофеиннің тәуліктік шығынға шағын жедел әсерін тапты; ол BAT-ерекшелігін, тұрақты арықтауды, стимулятор қоспасының қауіпсіздігін дәлелдемейді.
| Әсер | Нысана | Түсіндіру |
|---|---|---|
| Бақыланатын жеңіл суық | Симпатикалық жүйе | Адам BAT белсендіруі/бейімделуі; жеке және бұлшықет үлесі |
| Капсиноидтар | TRPV1 сенсорлық жол | Шағын адам сынағы, емдік кепілсіз |
| Ментол | TRPM8 | Сенсорлық фармакология; BAT емдік дозасы белгісіз |
| EGCG/кофеин | COMT in vitro, аденозин | Шағын шығын BAT рекруттауын дәлелдемейді |
| Ресвератрол/куркумин | Көп сигналдық/қабыну жол | Валидтелген BAT режимі жоқ |
| EPA/DHA | FFA4/GPR120, PPAR, қабыну | Нақты препарат нәтижесін BAT не кез келген қоспаға телуге болмайды |
| NR/NMN/сенолитик | NAD, қартаю/SASP | BAT клиникалық қалпына келуі дәлелсіз; дазатиниб профилактикалық қоспа емес |
| Жаттығу | Бұлшықет, гормон, жалпы алмасу | Өзіндік пайда; міндетті иризин/ANP беждену схемасы емес |
Бастапқы A/B деңгейлері бағалау әдісінсіз берілгендіктен қайталанбайды. Зерттеу дозаларын біріктіру клиникалық валидтелген стек жасамайды. Қою шай экстракты, стимулятор, дәрі комбинацияларының өз қаупі бар; ащы емес дәм қауіпсіздік дәлелі емес.
Cypess (2015): 12 ер адамда 200 мг мирабегрон FDG мен өлшенген шығынды арттырды. O’Mara (2020): 14 әйел, 100 мг/тәулік, 4 апта, ашық дизайн; салмақ пен құрам өзгермеді. Бұлар зерттеу дозалары, семіздікке тағайындау емес. O’Mara сілтемесі JCI131126 болып түзетілді; бастапқы PMID Finlin-нің басқа 50 мг/тәулік және инсулинрезистентті топ зерттеуіне тиесілі. Ол да әмбебап BAT арқылы әсер етуді дәлелдемейді.
Мирабегрон урологиялық көрсетілімге тіркелген; BAT белсендіруі оны арықтауға мақұлданған етпейді. Қысым, пульс, селективтілік, басқа тін әсерлері аударуды шектейді. Вибегрон да β3-агонист, бірақ қауіпсіз BAT термогенезі мен метаболикалықII/III фазаларды дәлелдейді деген бастапқы тұжырым тексерілген алғашқы сынақпен расталмады. Рецептор селективтілігі клиникалық бағалауды алмастырмайды.
Жас пен семіздік артқанда көрінетін белсенділік жиі азаяды, бірақ бәріне бірдей жас пайыздары жоқ. Иннервация, сенесценция/SASP, қабыну, фиброз, митохондрия өзгерісі — зерттеу бағыттары, BAT «жасарту» үшін сенолитик, NMN/NR тағайындау негізі емес. Суыққа төзімділік жүрек-қантамыр және өзге жағдайға тәуелді; қатты қалтырау, ауырсыну, бас айналу, гипотермия мақсат емес. Суық суға түсу мен ауа әсері физиологиялық тұрғыдан өзгеше.
Өлшенген нәтижені ажырату маңызды: FDG, тыныс, CIT, инсулин сезімталдығы, салмақ бірдей көрсеткіш емес. Тамақтану, қозғалыс және метаболикалық емнің дербес дәлелі бар. Жасуша трансплантациясы, UCP1 редакциясы, шағын молекулалар зерттеу сатысында. Жүйелік ажырату қауіпті болуы мүмкін; құрылым зерттеуіндегі DNP қолдануға ұсыныс емес.
Толық бастапқы мәтін оқылып, 2026 жылғы 8 қазанда нысаналы тексерумен қайта жазылды. RCSB, таңдалған адам зерттеулері, BARCIST/O’Mara/Becher библиография қателері қаралды. Кей PubMed/PMC беттері reCAPTCHA не қате берді; қолжетімді алғашқы беттер мен автор жазбалары пайдаланылды, бас тарту айналып өтілмеді. Жүйелі іздеу және барлық библиографияның тәуелсіз толық тексеруі жасалмады. GRADE, сыртқы рецензия, өз эксперименті, клиникалық валидация жүргізілмеді. Расталмаған әмбебап коэффициент, режим, емдік уәде факт ретінде берілмейді.
Термогендік май митохондрия, жүйкелік реттеу және жалпы алмасуды байланыстырады. Адамдағы әлеуеті қызықты, бірақ ұзақ клиникалық нәтижеге себептік үлесі мен қауіпсіз басқару жолдары ашық сұрақ болып қалады.
Жоқ. FDG не энергия шығыны жылдамдығы тұрақты салмақ өзгерісін дәлелдемейді.
Капсиноид — ащы емес эфирлік аналог, капсаициноидта амид байланысы бар. Зерттеу препараты тағам бұрышына тең емес.
Жоқ. Ұзақтық, тәбет, бейімделу маңызды; ккал/тәулік қысқа сессия жылдамдығын көрсетуі мүмкін.
Урологиялық көрсетілімі бар; метаболикалық зерттеу шағын, тәжірибелік доза қауіпсіздік шегін талап етеді.