Omega-7 y palmitoleato: lipocina, hígado e insulina
SCD1, fracciones lipídicas y señalización entre órganos. Modelos murinos contradictorios, biomarcadores cis/trans, ensayo metabólico nulo y límites de los suplementos.
El ácido palmitoleico es un componente normal de los lípidos y un posible mensajero entre órganos. Esa doble función resulta interesante, pero facilita las promesas excesivas. En células y ratones, el cis-palmitoleato modificó la señalización de insulina, la lipogénesis y la inflamación. En humanos, su concentración sanguínea depende del tejido de origen, la alimentación y la fracción lipídica analizada. Una asociación favorable de un biomarcador no demuestra el beneficio de una cápsula; menos inflamación tampoco implica necesariamente menos grasa en el hígado.
Molécula, isómeros y entorno de membrana
El ácido cis-palmitoleico, ácido (9Z)-hexadec-9-enoico, se designa 16:1n-7: dieciséis carbonos y un doble enlace entre C9 y C10 desde el carboxilo, en posición n-7 desde el extremo metilo. Su fórmula C₁₆H₃₀O₂ corresponde a una masa molar aproximada de 254,41 g/mol. HOOC–(CH₂)₇–CH=CH–(CH₂)₅–CH₃ permite reconocer ambos sistemas de numeración. Omega-7 identifica una familia, no una única molécula.
La configuración cis curva la cadena, mientras que la trans permite un empaquetamiento más recto. No existe, sin embargo, un ángulo fijo que describa toda la molécula flexible. El ácido libre, el anión unido a albúmina y la cadena acilo de un fosfolípido ocupan entornos distintos. Valores precisos de pKa, partición o temperatura de transición sin especificar el método y el medio no predicen el efecto clínico.
| Compuesto | Designación | Diferencia relevante |
|---|---|---|
| Cis-palmitoleato | 16:1n-7, 9Z | Producto de desaturación endógena estudiado como lipocina |
| Trans-palmitoleato | trans-16:1n-7, 9E | Otro isómero geométrico; biomarcador alimentario en cohortes |
| Palmitato | 16:0 | Sustrato saturado; su exceso causa lipotoxicidad en ciertos modelos |
| Oleato | 18:1n-9, 9Z | Monoinsaturado más largo, con efectos propios y usado como comparador |
La insaturación cis suele reducir el empaquetamiento de cadenas. La fluidez también depende del colesterol, otras cadenas, grupos polares y temperatura. Incorporar palmitoleato a fosfatidilcolina, fosfatidiletanolamina u otros lípidos no demuestra una alteración específica de balsas lipídicas, mejor funcionamiento del receptor de insulina ni una reducción fija del grosor de la bicapa. Debe distinguirse el principio biofísico general del efecto probado de una intervención.
El trans-palmitoleato aparece en alimentos de rumiantes y puede proceder de otras grasas. SCD1 introduce un enlace cis, por lo que no sintetiza directamente el isómero trans. Aun así, trans-16:1 no es un marcador exclusivo de leche: en MESA también se relacionó con margarina y productos de pastelería. Las observaciones sobre trans no se transfieren a suplementos de cis purificado (Mozaffarian et al., 2013).
SCD1: enzima, origen y destino del producto
Una acil-CoA sintetasa activa primero el palmitato a palmitoil-CoA utilizando ATP. SCD1 actúa en la membrana del retículo endoplasmático sobre acil-CoA, no sobre el ácido libre. Cuatro hélices transmembrana anclan la proteína; su centro dimetálico y canal de unión al sustrato sustentan la selectividad posicional y estereoquímica. La estructura de SCD1 humana con sustrato confirma esta organización (Wang et al., 2015). Los electrones pasan por NADH–citocromo-b₅ reductasa–citocromo b₅ y se necesita oxígeno molecular.
Es la reacción acoplada global, no una afirmación de unión directa de NADH a SCD1. La desaturación de estearoil-CoA produce oleoil-CoA. El palmitoleoil-CoA puede incorporarse a triacilglicéridos (TAG), fosfolípidos y otros lípidos; su hidrólisis puede liberar palmitoleato no esterificado. No todo el producto de SCD1 se secreta inmediatamente como hormona.
La misma reacción sirve a flujos distintos en hígado y tejido adiposo. Con abundancia de carbohidratos, SREBP-1c y ChREBP hepáticos sostienen la síntesis y desaturación de lípidos. Un palmitoleato elevado en TAG o fosfolípidos puede reflejar intensa síntesis endógena. Su producción adipocitaria y liberación en la fracción libre pueden tener otro significado. La razón 16:1/16:0 es un índice indirecto de desaturación, afectado por dieta, transporte y recambio de ambos componentes; no mide directamente la actividad de SCD1.
El concepto de lipocina
Cao et al. (2008) estudiaron ratones deficientes en FABP4/aP2 y FABP5/mal1, proteínas que unen ácidos grasos. La lipidómica mostró mayor lipogénesis adiposa y cambios en el intercambio entre órganos. Cis-16:1n-7 surgió como candidato a señal entre grasa, hígado y músculo. Experimentos celulares, regulación de SCD1 hepática e infusión de lípidos respaldaron efectos sobre acción de insulina y esteatosis en esos modelos.
Lipocina subraya la función señalizadora de un lípido junto a las adipocinas peptídicas. No implica un receptor específico único ni un síndrome humano diagnosticable de deficiencia hormonal. Eliminar FABP4/5 altera muchos lípidos y procesos; administrar un ácido no reproduce necesariamente todo el fenotipo genético. La protección completa frente a todas las complicaciones de obesidad o la reversión de MASH exceden los datos.
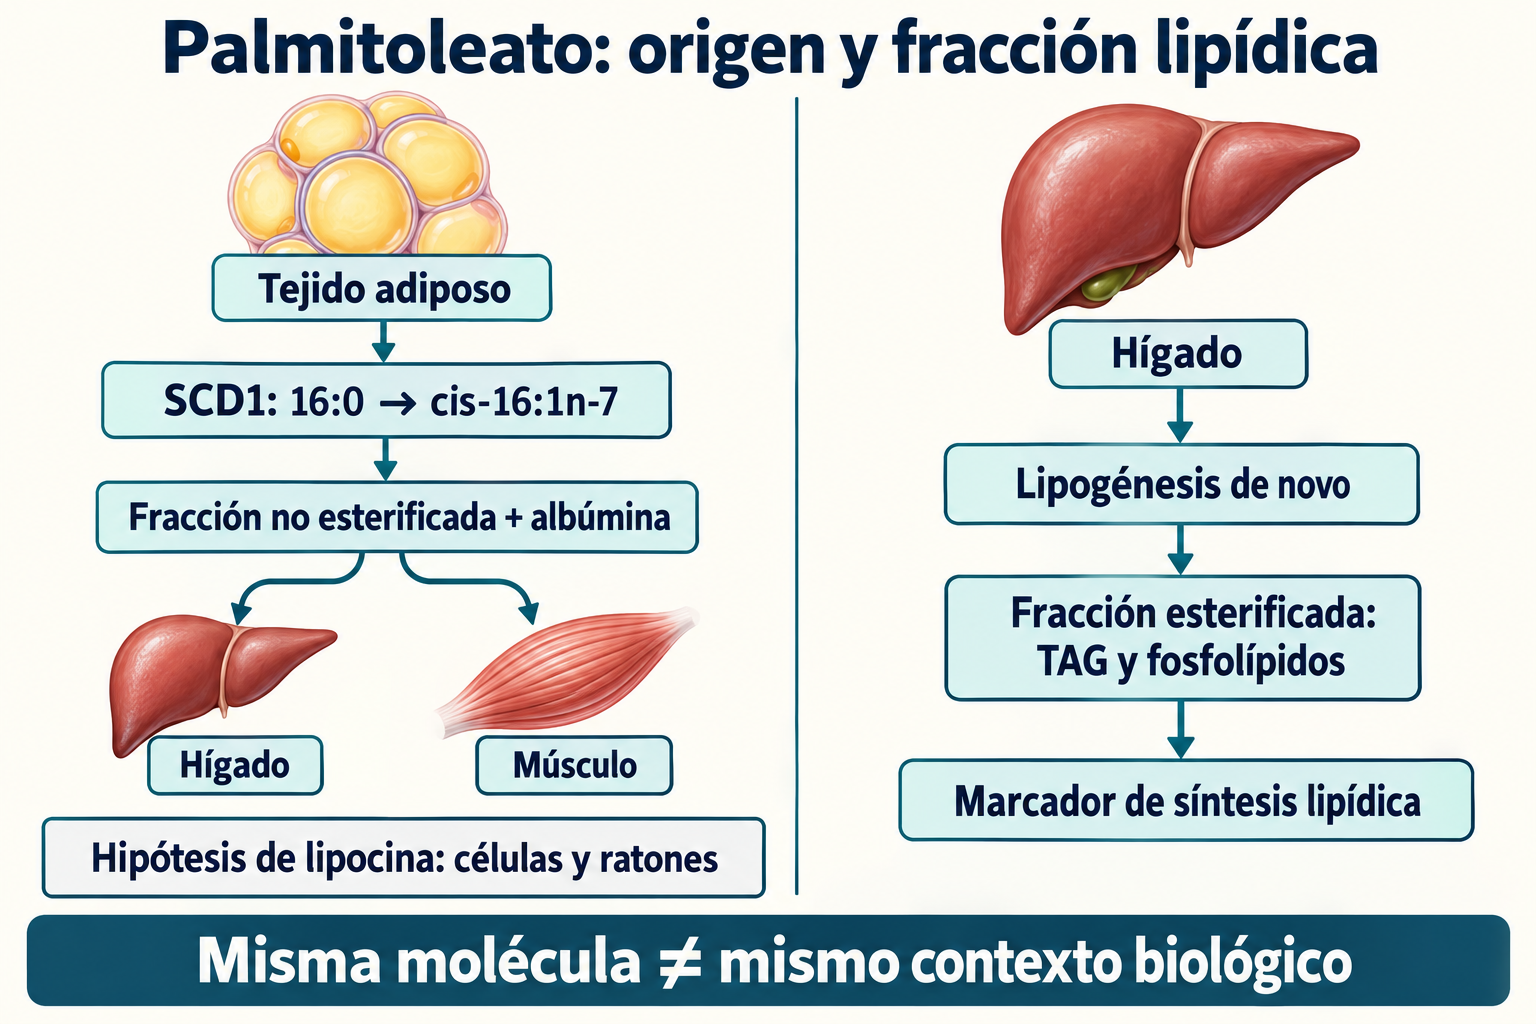
Los ácidos grasos no esterificados del plasma están en gran parte unidos a albúmina. Los esterificados circulan en lipoproteínas y lípidos celulares. Concentración en fracción libre, porcentaje en fosfolípidos y concentración en TAG son mediciones diferentes. Cada trabajo debe especificar fracción, unidades, ayuno y separación analítica de isómeros. Bolsillos concretos de albúmina, una semivida universal de 4–8 minutos o un órgano de origen exclusivo no deben presentarse como farmacocinética establecida del suplemento.
Hígado: síntesis, oxidación y resultados contradictorios
La grasa hepática resulta del equilibrio entre captación de ácidos grasos, lipogénesis de novo (DNL), oxidación y exportación de TAG en VLDL. La contribución de DNL varía según dieta y estado metabólico: no hay una proporción universal para todas las personas sanas o con MASLD. TAG es almacenamiento, no un sinónimo de todos los intermediarios lipotóxicos. En diacilglicéridos (DAG) importan estereoisómero, localización y relación con PKC; en ceramidas, especie molecular y entorno celular.
SREBP-1c se forma como precursor de membrana. SCAP e INSIG regulan su traslado del retículo al Golgi, donde la proteólisis libera el dominio nuclear. ChREBP con MLX responde a señales de carbohidratos. Ambos coordinan genes lipogénicos, pero ello no atribuye al palmitoleato un bloqueo directo de cada paso de transporte y fosforilación.
| Nodo | Función | Interpretación de los datos |
|---|---|---|
| ACLY | Citrato → acetil-CoA citosólico | Expresión génica no equivale a flujo DNL medido |
| ACC1/ACACA | Acetil-CoA → malonil-CoA con ATP | AMPK puede inhibir ACC; comprobar el modelo concreto |
| FASN | Inicio acetilo y siete unidades malonilo con NADPH → palmitato | Aumento o reducción dependen del contexto |
| SCD1 | Desaturación de acil-CoA | Fuente de monoinsaturados y nodo regulado |
| CPT1A | Transporte carnitínico de grupos acilo largos | Malonil-CoA frena la entrada a oxidación mitocondrial |
| PPARα/RXR, ACOX1 | Programa de oxidación, también peroxisomal | Dependencia de PPARα no demuestra especificidad del ligando ni eficacia clínica |
La regulación por malonil-CoA de la lanzadera de carnitina y CPT1 conecta síntesis y oxidación de grasas. ACOX1 participa en el sistema peroxisomal, no mitocondrial. La regulación energética de AMPK se relaciona con los mecanismos de berberina, pero compartir una diana no demuestra sinergia entre suplementos.
En ratones KK-Ay, Yang et al. (2011) administraron 300 mg/kg/día durante cuatro semanas y observaron menor acumulación lipídica hepática y expresión de varios genes lipogénicos. De Souza et al. (2017) encontraron fosforilación de AMPK dependiente de PPARα y cambios en glucocinasa, FGF21 y SREBP-1. AKT/IRS hepáticos no mejoraron ni con estímulo insulínico. Cambiar la utilización de glucosa es distinto de restaurar obligatoriamente toda la cascada.
Guo et al. (2012), en cambio, observaron aumento de grasa hepática, SREBP-1c y FAS, junto con menor inflamación y mejoría de algunas medidas de acción insulínica. No puede descartarse alegando una contaminación de 20–30% por palmitato: esa explicación no está demostrada. Genotipo, dieta, vía, dosis y duración pueden cambiar resultados, pero se necesitan comparaciones directas. Un efecto antiinflamatorio no equivale a un efecto antiesteatósico.
Músculo, señal de insulina y células β
Normalmente, el receptor de insulina fosforila IRS; PI3K forma PIP₃ desde PI(4,5)P₂ y recluta PDK1 y AKT. PDK1 y mTORC2 participan en activar AKT; después TBC1D4/AS160, Rab y SNARE regulan la llegada de vesículas GLUT4 a la membrana. Esto explica el aumento del transporte de glucosa, no un efecto inevitable de todo ácido insaturado.
El exceso de flujo lipídico puede interferir mediante DAG y las isoformas nuevas de PKC: PKCθ se estudia especialmente en músculo y PKCε en hígado. No son isoformas atípicas; PKCζ pertenece a esa otra clase. El significado de una fosforilación concreta de serina en IRS depende de especie y contexto; Ser 307/Ser 312 humano no es un interruptor universal. La secuencia IRS–PI3K–AKT–GLUT4 ayuda a entender la hipótesis, pero no prueba que el palmitoleato oral bloquee Ser 1101 en humanos o reduzca DAG un porcentaje fijo.
Maedler et al. (2003) observaron en islotes humanos cultivados que palmitoleato y oleato reducían el deterioro de supervivencia y secreción causado por palmitato y glucosa alta. Es tejido humano fuera del organismo, no un ensayo de prevención de diabetes. Ceramidas, apoptosis mitocondrial y estrés del retículo explican parte de la lipotoxicidad. PERK–eIF2α–ATF4–CHOP e IRE1–XBP1/JNK son ramas distintas de respuesta, con funciones también adaptativas. No se ha probado que cápsulas protejan universalmente SERCA2b, eliminen toda UPR o restauren masa de células β.
Macrófagos y vasos: límites de la hipótesis
La inflamación adiposa y hepática influye en metabolismo. En células y ratones, el palmitoleato modificó marcadores y estados de macrófagos. M1/M2 es una simplificación experimental que no abarca todos los estados humanos. Souza et al. (2017) estudiaron macrófagos primarios murinos estimulados por LPS: ciertos efectos persistían sin PPARα y el mecanismo exacto seguía incompletamente aclarado. No respalda una vía PPARα–AMPK obligatoria para todos los efectos.
IKK–IκB–NF-κB explica la transcripción inflamatoria. Su atenuación no demuestra unión directa del palmitoleato al centro activo de IKKβ. Tampoco deben llamarse a los ácidos saturados ligandos directos de TLR4 sin matices. NO, eNOS, sus cofactores e ICAM-1/VCAM-1 son relevantes para endotelio; no está establecida clínicamente la cadena palmitoleato → Ser 1177 → descenso de presión → prevención del infarto. Son preguntas de investigación, no protección vascular prometida.
Evidencia en humanos
| Estudio | Diseño | Hallazgo y límite |
|---|---|---|
| CHS, Mozaffarian 2010 | 3736 adultos; trans-16:1 en fosfolípidos; 1992–2006 | Quintil superior frente al inferior: HR diabetes 0,38; IC 95% 0,24–0,62. Asociación, no efecto del suplemento |
| MESA, Mozaffarian 2013 | 2617 mediciones basales; 2281 sin diabetes para incidencia; 205 casos | HR 0,52; IC 95% 0,32–0,85. LDL más alto junto a ciertos marcadores favorables |
| Stefan 2010 | Fracción libre en 100 personas, clamp en 79; nueve meses de cambios de estilo de vida | Asociación positiva con sensibilidad; no era suplementación con POA |
| Fabbrini 2011 | Obesidad con y sin resistencia; clamp, FFA y VLDL | Menor disponibilidad no explicaba diferencias de sensibilidad orgánica |
| Bernstein 2014 | Publicación sobre 60 participantes, 30 días | Marcada WITHDRAWN; no se usa para demostrar eficacia |
| Bridges 2025 | Ensayo doble ciego; 123 participantes con hs-CRP ≥ 2 mg/L al entrar; 500 o 1000 mg POA/día, 12 semanas | Sin reducción significativa de hs-CRP ni cambio de otros biomarcadores metabólicos frente a placebo |
El ensayo nuevo sí modificó algunas medidas de ácidos grasos sanguíneos; la falta de efecto metabólico no puede atribuirse simplemente a ausencia de exposición. Un resultado nulo no excluye cualquier efecto en toda población, pero contradice una respuesta garantizada con hs-CRP elevado o la idea de que basta una duración suficiente. Las dosis describen condiciones experimentales, no una ventana terapéutica (Bridges et al., 2025).
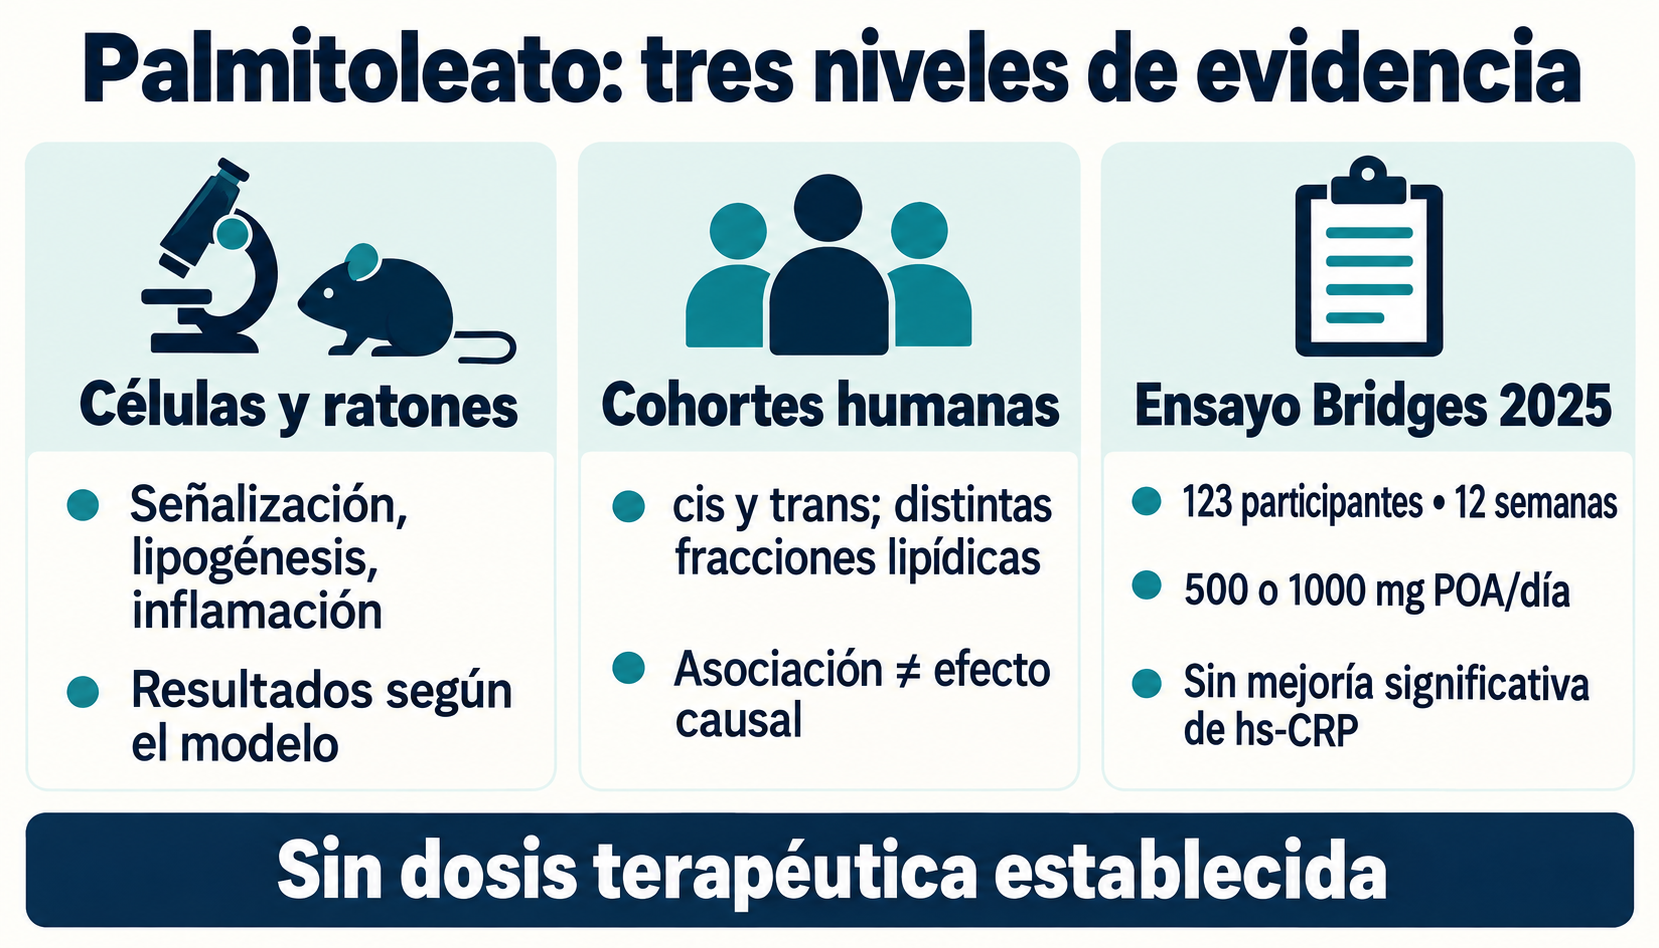
EPIC-InterAct de Forouhi et al. (2014) estudió ácidos saturados individuales y aparición de diabetes. No demuestra una relación del trans-palmitoleato con mortalidad por infarto o ictus. Diferencias cis/trans, fracción libre/esterificada, concentración absoluta/porcentaje ayudan a explicar heterogeneidad, sin eliminar confusión ni causalidad inversa.
Alimentos, concentrados y aritmética
Pulpa de espino amarillo, macadamia y algunos lípidos marinos contienen proporciones variables de ácido palmitoleico. Aceite de semillas y de pulpa de espino amarillo son distintos; variedad, procedencia y procesamiento cambian el perfil. Acompañan otros ácidos, antioxidantes y componentes. Un ensayo de aceite completo o dieta con frutos secos no aísla el efecto causal del 16:1n-7.
| Matriz | Información necesaria | Lo que la composición no demuestra |
|---|---|---|
| Aceite de espino amarillo | Pulpa o semillas, perfil real del lote | Palmitato cancela automáticamente beneficios o vuelve tóxico el alimento |
| Macadamia | Fruto entero o aceite, dieta y energía total | Todo cambio lipídico procede de POA |
| Lípidos marinos | Especie, EPA/DHA, alérgenos y oxidación | Cualquier aceite de pescado equivale a POA purificado |
| Concentrado | Masa de ácido, isómero, forma química y calidad | Mayor pureza garantiza tratamiento de MASLD o seguridad |
Fraccionamiento y transesterificación modifican el concentrado. Ésteres etílicos y TAG se digieren de manera diferente; los ésteres necesitan hidrólisis antes de absorción. No hay evidencia suficiente de una hora ideal única 12:00–19:00 ni de una caída universal del 70% de biodisponibilidad de POA en ayunas. Pureza de ácidos grasos no demuestra ausencia completa de contaminantes y oxidación, que requieren análisis independientes.
Las masas usan la misma unidad y w es fracción másica: 0,40, no 40. Un producto de 500 mg con 40% POA según una especificación adecuada aporta 200 mg POA. El fabricante debe indicar la base porcentual y el eventual paso de masa de éster a masa de ácido. Para 1 g POA al 35% se necesitan aproximadamente 2,86 g de aceite, no automáticamente 30–40 mL. Son ejemplos de cálculo, no recomendaciones de ingesta.
Dosis, combinaciones, seguridad y seguimiento
Los estudios no establecen una dosis terapéutica aceptada para MASLD/MASH, diabetes o dislipidemia. 400–1000 mg no constituye un protocolo con meseta probada; límites de palmitato en miligramos tampoco son umbrales de seguridad verificados. Diabetes descompensada o sospecha de enfermedad hepática requieren diagnóstico y tratamiento establecido, no aumentar suplementos.
Combinar con EPA/DHA, berberina, dihidroberberina, silibinina o fosfatidilcolina tiene razones bioquímicas separadas. Compartir AMPK, PPARα o vías de membrana no demuestra sinergia, reducción de TAG específica, antifibrosis ni superioridad frente a monoterapia. Se necesitan ensayos de la combinación y desenlaces apropiados.
Ensayos breves no establecen seguridad prolongada, durante embarazo, lactancia ni todas las comorbilidades. Importan alérgenos, composición, calidad y medicamentos. No debe atribuirse automáticamente estado FDA GRAS a cualquier preparado ni seguridad universal hasta 1500 mg. Evaluación regulatoria de un ingrediente y seguridad individual son asuntos diferentes.
ALT, AST y GGT reflejan lesión y metabolismo, pero su disminución no prueba desaparición de esteatosis o fibrosis. MRI-PDFF evalúa contenido graso y elastografía propiedades vinculadas a fibrosis; no son intercambiables. HOMA-IR utiliza insulina y glucosa en ayunas:
I₀ es insulina en μU/mL; G₀ glucosa en mmol/L. Con glucosa en mg/dL se usa 405 como denominador. Es una estimación indirecta con limitaciones, no un clamp directo ni un umbral universal de diagnóstico. Pruebas e intervalos dependen de la enfermedad; no existe un algoritmo POA establecido que exija mejoría hs-CRP > 30% y TAG > 15%.
Perspectiva
El palmitoleato muestra que un lípido puede ser sustrato y señal. Interpretarlo exige distinguir origen tisular, forma química, fracción y desenlace. Los mecanismos murinos justifican investigar; resultados hepáticos contradictorios y un ensayo humano sin beneficio metabólico limitan la aplicación clínica. El posible lugar de POA en tratamiento debe determinarse mediante estudios, no deducirse de la palabra lipocina.
Preguntas frecuentes
¿Omega-7 trata el hígado graso?
No se ha establecido un beneficio clínico convincente. Los modelos murinos discrepan; cambios en enzimas no prueban resolución de esteatosis o fibrosis.
¿Los datos trans se aplican a suplementos cis?
No: son isómeros diferentes. La asociación de un biomarcador alimentario no equivale al efecto de tomar ácido purificado.
¿Qué dosis está probada?
No hay dosis terapéutica aceptada. 500 y 1000 mg/día del ensayo de 12 semanas son dosis investigadas con resultado metabólico nulo.
¿Un concentrado purificado es necesariamente mejor?
La pureza cambia la composición, pero no prueba beneficio ni seguridad. Importan matriz, masa de POA, isómero, forma química y calidad.
Fuentes
- Cao H, Gerhold K, Mayers JR et al. Identification of a lipokine, a lipid hormone linking adipose tissue to systemic metabolism. 2008.
- Wang H, Klein MG, Zou H et al. Crystal structure of human stearoyl-coenzyme A desaturase in complex with substrate. 2015.
- Yang ZH, Miyahara H, Hatanaka A.. Chronic administration of palmitoleic acid reduces insulin resistance and hepatic lipid accumulation in KK-Ay Mice with genetic type 2 diabetes. 2011.
- de Souza CO, Teixeira AAS, Biondo LA et al. Palmitoleic Acid Improves Metabolic Functions in Fatty Liver by PPARα-Dependent AMPK Activation. 2017.
- Guo X, Li H, Xu H et al. Palmitoleate induces hepatic steatosis but suppresses liver inflammatory response in mice. 2012.
- Maedler K, Oberholzer J, Bucher P et al. Monounsaturated fatty acids prevent the deleterious effects of palmitate and high glucose on human pancreatic beta-cell turnover and function. 2003.
- Souza CO, Teixeira AA, Biondo LA et al. Palmitoleic acid reduces the inflammation in LPS-stimulated macrophages by inhibition of NFκB, independently of PPARs. 2017.
- Mozaffarian D, Cao H, King IB et al. Trans-palmitoleic acid, metabolic risk factors, and new-onset diabetes in U.S. adults: a cohort study. 2010.
- Mozaffarian D, de Oliveira Otto MC, Lemaitre RN et al. trans-Palmitoleic acid, other dairy fat biomarkers, and incident diabetes: the Multi-Ethnic Study of Atherosclerosis (MESA). 2013.
- Stefan N, Kantartzis K, Celebi N et al. Circulating palmitoleate strongly and independently predicts insulin sensitivity in humans. 2010.
- Fabbrini E, Magkos F, Su X et al. Insulin sensitivity is not associated with palmitoleate availability in obese humans. 2011.
- Bernstein AM, Roizen MF, Martinez L.. [WITHDRAWN] Purified palmitoleic acid for the reduction of high-sensitivity C-reactive protein and serum lipids: a double-blinded, randomized, placebo controlled study. 2014.
- Bridges MD, Vennam SS, Davis T et al. Effects of a palmitoleic acid concentrated oil on C-reactive protein levels in adults: A randomized, double-blind placebo-controlled clinical trial. 2025.
- Forouhi NG, Koulman A, Sharp SJ et al. Differences in the prospective association between individual plasma phospholipid saturated fatty acids and incident type 2 diabetes: the EPIC-InterAct case-cohort study. 2014.