
Силімарин і силібінін: мембрани, рРНК та клінічні докази
Склад, стереохімія, пероральна й внутрішньовенна експозиція, мембрани, OATP1B3, Pol I/рРНК щура, редокс і фіброз. Первинні печінкові випробування, негативні результати й взаємодії.
Склад, стереохімія, пероральна й внутрішньовенна експозиція, мембрани, OATP1B3, Pol I/рРНК щура, редокс і фіброз. Первинні печінкові випробування, негативні результати й взаємодії.
Силімарин — суміш, яку отримують із плодів розторопші; силібінін, також відомий як силібін, представлений переважно парою діастереомерів флавонолігнану. Ці назви не позначають взаємозамінних речовин. Звичайний пероральний екстракт, комплекс силібіну з фосфатидилхоліном та внутрішньовенний сукцинат силібініну відрізняються складом, всмоктуванням, метаболізмом та експозицією. Користь однієї препаративної форми в клітинному експерименті не встановлює ефективності всіх засобів із назвою розторопші.
Науковий інтерес пояснюють взаємодія з мембранними ліпідами й транспортерами захоплення, експериментальна стимуляція синтезу рибосомної РНК, редокс-регуляція та зміни запальних і фіброгенних відповідей. Сила доказів для цих механізмів різна. Опис стабілізації мембран чи регенерації має враховувати експерименти з протилежними мембранними ефектами та клінічні випробування з негативними первинними результатами. Стаття простежує шлях від хімії через клітинні компартменти до досліджень у людей, розмежовуючи лабораторну активність і підтверджену клінічну користь.
Плоди Silybum marianum (L.) Gaertn. родини Asteraceae ботанічно є сім’янками. Їхні екстракти містять флавонолігнани, утворені з флавоноїду та фенілпропаноїду. Окиснювальне сполучення таксифоліну з коніфериловим спиртом та подальша циклізація пояснюють комбінований каркас; у біосинтезі беруть участь рослинні пероксидази (Lv et al., 2017). Різна орієнтація сполучення утворює регіоізомери, стереохімія — діастереомери. Рослинне походження чи належність до хімічної родини не встановлюють однакової фармакології.
Силімарин зазвичай містить силібін A і B, ізосилібін A і B, силікристин і споріднені компоненти, силідіанін та флавоноїд таксифолін. Таксифолін не має лігнанового фрагмента, тому його не слід зараховувати до флавонолігнанів. Є також мінорні компоненти й продукти окиснення. Аналітичний профіль комерційних засобів залежить від рослинної сировини, екстракції, очищення, зберігання та методу аналізу. Напис «80 % силімарину» потребує визначення: частка екстракту, виміряні флавонолігнани й перерахунок через референтну сполуку не завжди є тією самою величиною.
Силібін нерідко становить значну частку визначених флавонолігнанів, часто близько половини, але співвідношення силікристину, силідіаніну та ізосилібінів не є універсальними сталими. Стандартизована загальна частка також не гарантує однакового співвідношення A:B, мінорного складу чи розчинення. Kroll et al. (2007) розглянули наслідки непослідовної номенклатури; Davis-Searles et al. (2005) розділили компоненти й показали відмінні ефекти в клітинних моделях раку простати. Ці досліди підтверджують важливість ідентифікації речовини, а не загальний рейтинг переваги для лікування печінки.
| Назва | Хімічне або фармацевтичне значення | Чого вона не встановлює |
|---|---|---|
| Силімарин | Екстракт із кількох флавонолігнанів та інших компонентів | Одну молекулу чи незмінний склад |
| Силібінін / силібін | Зазвичай пара силібіну A і B | Цілий екстракт чи фіксоване співвідношення в усіх засобах |
| Силібін A і B | Діастереомери з однаковою зв’язністю | Однаковий метаболізм і біологічні відповіді |
| Ізосилібін A і B | Регіоізомери щодо силібіну, також діастереомерна пара | Просто інші назви силібіну A і B |
| Комплекс силібін–фосфатидилхолін | Форма для зміни доставки | Доведений еквівалент внутрішньовенного засобу чи універсальну клінічну перевагу |
| Внутрішньовенний сукцинат силібініну | Водорозчинна похідна для інфузії | Пероральну добавку з тією самою експозицією |
Молекулярна формула силібіну C₂₅H₂₂O₁₀, молярна маса близько 482,44 г/моль. Структура містить дигідрофлавонольну частину, фенілпропаноїдну частину з бензодіоксаном, метоксигрупу й п’ять гідроксильних груп. Лише частина гідроксилів є фенольними; вторинному спирту й гідроксиметильному спирту не слід приписувати ту саму радикал-донорну хімію, що фенольному гідроксилу.
За поширеною схемою нумерації основній формі A відповідає (2R,3R,10R,11R), а B — (2R,3R,10S,11S). В інших схемах центри бензодіоксану мають інші номери. Позначення без схеми нумерації неоднозначне. Чотири незалежні стереоцентри допускають до 2⁴ = 16 теоретичних стереоізомерів; це не означає наявності всіх шістнадцяти у звичайному екстракті. Основна природна пара має спільну конфігурацію флавоноїдних центрів і відрізняється лігнановими центрами. Ізосилібіни мають іншу зв’язність, тому однакові літери R/S самі по собі не описують ту саму структуру між родинами.
ЯМР, електронний круговий дихроїзм і кристалографічні дослідження підтверджують стереохімічні визначення. Роботи з цис–транс-ізомеризації також показують утворення інших конфігурацій за певних хімічних умов (Novotná et al., 2014). Природні A і B — діастереомери, а не енантіомерна пара. Можливі відмінності розчинності, конформації, кон’югації й активності, але універсальне твердження, що A є водним антиоксидантом, а B — потужнішим лігандом транспортера чи ядерного рецептора, потребує вимірювань у конкретній системі. Точна незалежна від розчинника карта «напівкрісло проти аксіального положення» не потрібна для пояснення спостережуваних відмінностей.
Корисний аналітичний опис поєднує хроматографічну ідентичність і кількість із чистотою, продуктами деградації та даними партії. RP-HPLC чи LC–MS розрізняють компоненти, об’єднані загальною етикеткою. Потрібні також показники розчинення, маса препаративної форми й фактичного силібініну. Наприклад, 200 мг фосфоліпідного комплексу не є автоматично 200 мг силібіну. Те саме стосується флакона для інфузії, де зазначають масу похідної та еквівалент силібініну.
Силібін погано розчиняється у воді; всмоктування обмежують розчинення, проникність та інтенсивний пресистемний метаболізм. Розчинність і коефіцієнт розподілу октанол–вода залежать від температури, pH, кристалічної форми й методу. Точну розчинність нижче 0,04 мг/мл або певний діапазон log P не варто застосовувати як універсальну характеристику всього екстракту. Єдиний номер біофармацевтичної класифікації для багатокомпонентної рослинної суміші приховує відмінності компонентів і форм.
Після приймання всередину всмоктані речовини зазнають кишкового й печінкового метаболізму. Глюкуроніди та сульфати — важливі циркулюючі форми; вільні некон’юговані флавонолігнани є іншим показником експозиції, ніж «загальний» аналіт після гідролізу. Wen et al. (2007) вимірювали фракції окремо й повідомили короткі періоди напіввиведення: близько 1–3 годин для вільних і 3–8 годин для кон’югованих флавонолігнанів у цьому дослідженні. Це не універсальні величини для всіх засобів, хвороб чи інфузійних схем.
Дві загальні реакції фази II пояснюють відмінність:
UDP-GlcA — активований донор глюкуронільної групи; PAPS — активований донор сульфату, PAP — його десульфатований продукт. UGT і SULT позначають ферментні родини, а не доводять, що одна ізоформа утворює всі позиційні метаболіти. Кон’югація різних гідроксилів може бути стереоселективною. Основні кон’югати не можна просто оголосити неактивними: розподіл, декон’югація та дія потребують окремого дослідження.
Біліарне виведення кон’югатів, кишковий гідроліз і повторне всмоктування сприяють ентерогепатичній циркуляції. Каналікулярні системи ефлюксу, зокрема MRP2/ABCC2 і BCRP/ABCG2, важливі для фармакокінетики, але виявлення транспортера у моделі не встановлює точний баланс цілої дози в людини. Невсмоктаний матеріал, мікробний метаболізм, повернення з жовчю та сечове виведення — різні шляхи. Твердження, що фіксовані 80–85 % кожної проковтнутої дози надходять у жовч, змішує введену, всмоктану й відновлену кількість. Абсолютну біодоступність не визначають лише з низької плазмової концентрації без належного внутрішньовенного порівняння та визначення аналіту.
Schrieber et al. (2008, 2011) виявили відмінності експозиції між популяціями з хворобами печінки й здоровими порівняннями або між групами захворювань. Печінкова дисфункція змінює фармакокінетику рослинних компонентів; «спрямований на печінку» не означає нормальний кліренс у хворій печінці. Hawke et al. (2010) також спостерігали нелінійну фармакокінетику зі збільшенням пероральних доз при хронічному гепатиті C. Зростання дози чи біодоступності може змінювати ризик взаємодій поряд із потенційною терапевтичною експозицією.
Поєднання силібіну з фосфатидилхоліном змінює диспергування та всмоктування. Взаємодії полярних груп із амфіфільним ліпідним середовищем допомагають пояснити доставку, але статичний малюнок фосфоліпіду, що повністю обгортає молекулу, не встановлює структуру в шлунково-кишкових рідинах. Водневі зв’язки є полярними взаємодіями. Ліпосома — ліпідна везикула, водний компартмент і бішар якої переносять різні класи речовин; не кожний ліпосомальний препарат міститься лише у водному ядрі.
Barzaghi et al. (1990) порівняли комплекс силібін–фосфатидилхолін із силімарином у дев’яти здорових добровольців за доз, еквівалентних 360 мг силібіну. Робота підтверджує залежне від форми збільшення експозиції. Вона не доводить універсальне зростання AUC у 4,6–10 разів, сталий множник пікової концентрації чи необмежений прохід крізь слиз через піноцитоз і хіломікрони. AUC, Cmax і Tmax треба порівнювати для того самого аналіту, еквівалентної дози й умов відбору. Краще всмоктування саме по собі не є випробуванням клінічних результатів.
Мікронізація, аморфні дисперсії, самоемульгувальні системи, тверді ліпідні наночастинки, полімерні носії на кшталт PLGA й альбумінові наночастинки долають різні бар’єри доставки. Це фізико-хімічні роботи, досліди на тваринах і окремі людські фармакокінетичні дослідження. Не всі підходи є встановленими клінічними замінами. Проста модель розчинення пояснює користь збільшення площі:
M — розчинена маса, D — коефіцієнт дифузії, A — відкрита площа частинок, h — ефективна товщина дифузійного шару, Cs — концентрація насичення, C — концентрація в середовищі. Вираз типу Нойєса–Вітні є спрощенням. Менші частинки збільшують A, проте агрегація, змочування, кристалічний стан, кишкові умови й метаболізм визначають, чи краще розчинення підвищить системну експозицію. Розмір частинок не гарантує дворазової клінічної користі.
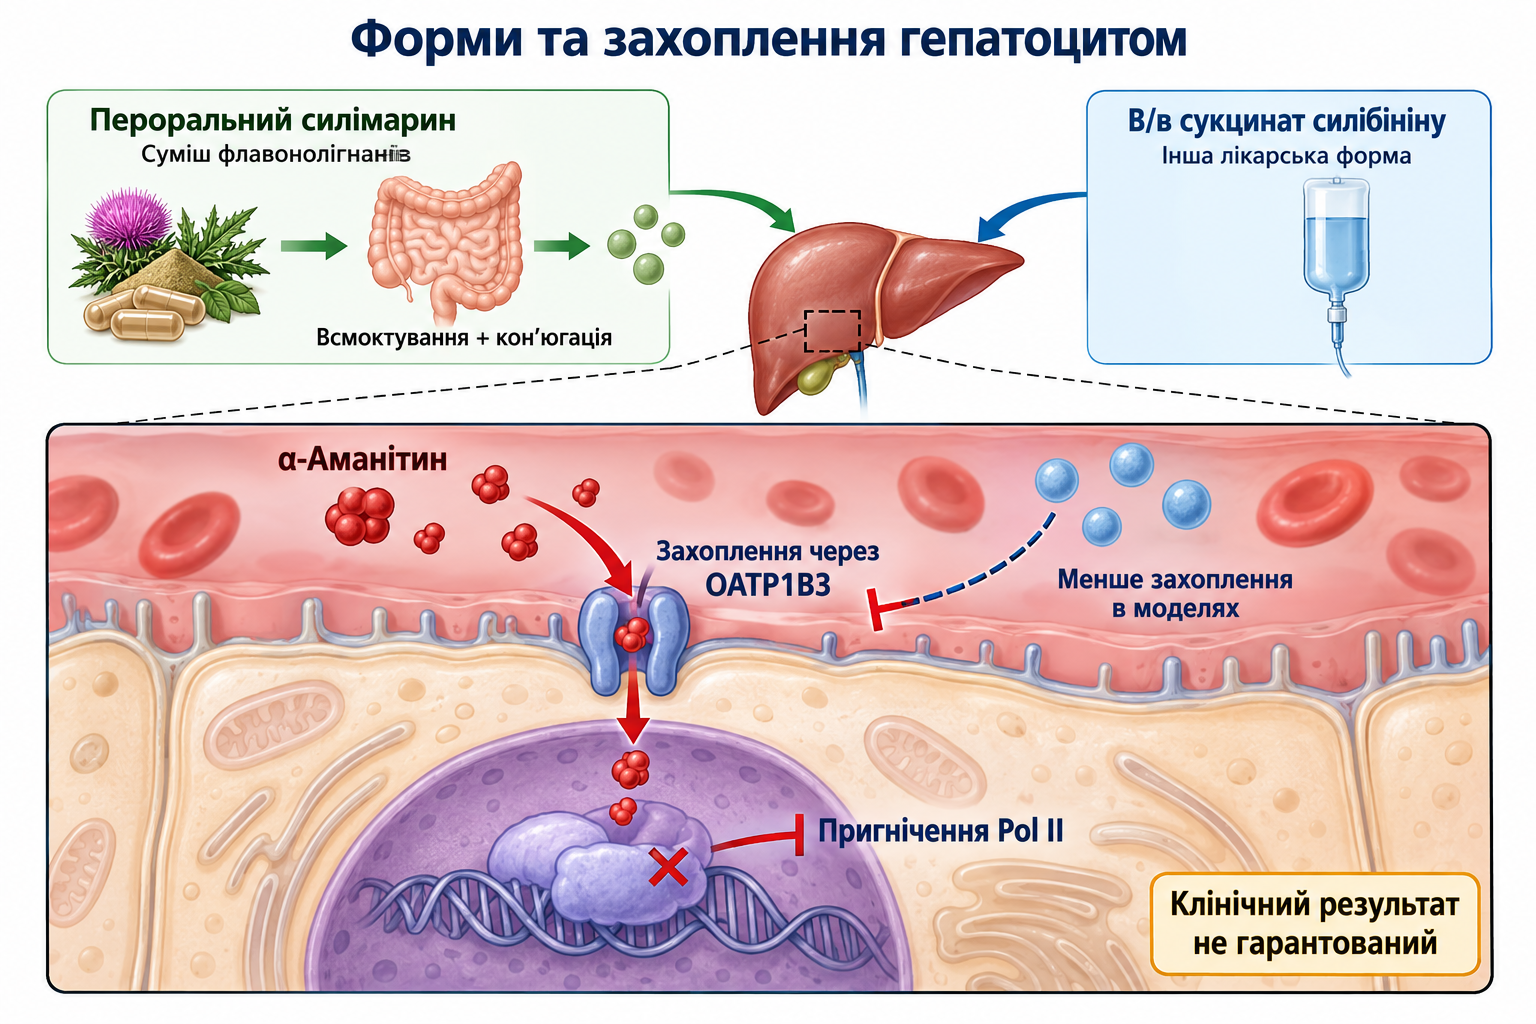
Гепатоцит має синусоїдальну поверхню, звернену до крові, та каналікулярну, що формує жовчні канальці. Їхні транспортні системи відрізняються. Ліпіди, кортикальний актин, адгезійні комплекси й щільні контакти підтримують цілісність; мембрана не є пасивним мішком. Окисники, жовчні кислоти, розчинники й токсини порушують організацію ліпідів, білків та іонні градієнти залежно від концентрації, компартмента й часу.
Флавонолігнани розподіляються на межі ліпід–вода й взаємодіють із полярними головками або середовищем ацильних ланцюгів. Флуоресцентні зонди на кшталт DPH відображають локальну поведінку, але анізотропія залежить від розподілу й обертання зонда, а не лише мембрани. Зміна флуоресценції не доводить зменшення проникності, впорядкованість чи стійкість усіх мембран до будь-якого токсину.
Parasassi et al. (1984) дослідили мікросомні мембрани печінки кроля й виявили помірні зміни зонда, сумісні з включенням поблизу гідрофобно-гідрофільної межі та зміною пакування ланцюгів. Це були внутрішньоклітинні мембранні препарати, а не функціональний синусоїдальний бар’єр людини. Точна глибина між певними атомами вуглецю, універсальне зменшення переходу ліпідів між шарами чи механічне виключення всіх кисневих радикалів — сильніші твердження, ніж спостереження дозволяють.
Цілий силімарин і очищений силібінін можуть діяти по-різному. Basiglio et al. (2009) тестували ізольовані мембрани й гепатоцити щура за детергентного та осмотичного стресу. При дослідженій високій концентрації екстракт захищав від руйнування, тоді як силібінін міг посилювати осмотичний чи пов’язаний із Triton лізис і був менш захисним щодо таурохенодезоксихолату. Це не встановлює шкоди звичайної пероральної експозиції, але безпосередньо спростовує припущення про незмінне відтворення мембранної стабілізації екстракту очищеним компонентом.
LDH чи ALT у культуральному середовищі корисні як показники ушкодження за конкретних умов. Менший витік підтримує цитопротекторне спостереження, не доводячи відновлення жовчовиділення, архітектури людської печінки чи виживання. Опис плинності теж має бути послідовним: в’язкість і плинність пов’язані, тому «зменшення надмірної в’язкості» та «запобігання надмірній плинності» не одна безумовна дія.
OATP1B1 та OATP1B3, закодовані SLCO1B1 і SLCO1B3, є важливими синусоїдальними переносниками людської печінки. Вони транспортують ендогенні сполуки й ліки. OATP2B1 має інший розподіл та субстратний профіль. Фізіологічна локалізація не означає відсутності OATP1B3 в усіх інших тканинах чи пухлинах. OATP відрізняються від каналікулярних ABC-транспортерів ефлюксу та не є насосами, які гідролізують АТФ.
Сила інгібування залежить від транспортера, тестового субстрату, часу й препарату. Köck et al. (2013) повідомили IC50 силімарину 1,3, 2,2 та 0,3 мкМ для OATP1B1, OATP1B3 і OATP2B1 відповідно. Значення силібіну A, силібіну B та силікристину були іншими. Це компонентна й методична специфічність, а не одна фіксована спорідненість слова «силібінін».
IC50 — концентрація половинного інгібування за умов аналізу, не автоматично константа дисоціації чи ефективна концентрація in vivo. Ki залежить від моделі інгібування. Експериментальний інгібітор не обов’язково повністю зупиняє транспорт за плазмової концентрації, особливо за іншої вільної частки, зв’язування з білками, метаболітів і конкуренції субстратів. Модельована взаємодія не встановлює структуру зв’язування з певними залишками OATP чи універсально заблоковану конформацію.
Аматоксини й фалотоксини — різні родини. Перші є біциклічними октапептидами, фалотоксини, зокрема фалоїдин, — біциклічними гептапептидами. Фалоїдин зв’язує філаментний актин і важливий у дослідженнях цитоскелетного ушкодження, проте слабке шлунково-кишкове всмоктування не дозволяє називати його головною причиною системного отруєння блідою поганкою. Аматоксини, зокрема α-аманітин, після ковтання спричиняють тяжке ураження печінки. Вміст токсинів у грибах варіює, тому числова оцінка летальної дози не є надійним способом оцінювання конкретного випадку.
Letschert et al. (2006) використали клітини з транспортерами й первинні гепатоцити людини. Серед перевірених OATP мічену похідну аманітину переносив OATP1B3; Km становив приблизно 3,7 ± 0,6 мкМ. Дигемісукцинат силібініну та інші сполуки пригнічували захоплення. Умови та мічений субстрат важливі: робота підтримує механізм печінкового захоплення, але не демонструє транспорту аманітину OATP1B1 у тій самій панелі й не пояснює отруєння одним переносником.
Коли α-аманітин досягає внутрішньоклітинної мішені, пригнічення РНК-полімерази II порушує транскрипцію мРНК і подальшу продукцію білків. Послідовність — захоплення, потім внутрішньоклітинна токсичність. Пригнічення захоплення не тотожне витісненню вже зв’язаного токсину з Pol II, хімічній нейтралізації чи поверненню некротичних клітин. Ниркове виведення та ентерогепатична рециркуляція впливають на токсин, а ниркова травма ускладнює отруєння. Блокування шляху входу не гарантує швидке й безпечне усунення всього циркулюючого токсину.
Вибір моделі важливий. Первинні гепатоцити й окремі модифіковані системи краще експресують потрібні переносники, ніж поширені лінії гепатоми. Порівняння форм у дослідженні 2020 року показало недостатню чутливість систем HepG2 за слабкої експресії потрібних транспортерів. І негативний результат у невідповідній моделі, і позитивний за високої експозиції потребують цього застереження.
Кортикальний актин та актоміозин підтримують каналікулярний полюс, контактні білки розмежовують жовч і кров’яне середовище. Окиснювальне чи токсичне ушкодження змінює актин, прикріплення мембрани та внутрішньоклітинний кальцій. Кальпаїни розщеплюють цитоскелетні чи адгезійні білки; зміни фосфорилювання й енергії порушують скоротливість. Мембранні випинання — не автоматично позаклітинні везикули. Вони виникають при апоптозі та оборотному стресі; сам вигляд не визначає механізм загибелі.
Зменшення експериментально спричиненого витоку чи випинань під дією силімарину сумісне із ширшою цитопротекцією. Але менша травма не доводить пряме зміцнення прикріплення езрин–радиксин–моезин, селективне інгібування PLC, запобігання всім IP3-залежним викидам кальцію чи специфічне відновлення фосфорилювання легкого ланцюга міозину. Це окремі молекулярні твердження. Зв’язок організації мембрани, кальцію, протеаз і контактів є корисним контекстом; клінічне запобігання холестазу потребує вимірювань, ширших за ілюстративний шлях.
Machicao і Sonnenbichler (1977) дослідили ізольовані ядра, ядерця й препарати РНК-полімерази печінки щура. Силібін збільшував синтез РНК, особливо рибосомної, та активність полімерази A, що відповідає Pol I; полімераза B/Pol II у тій системі не стимулювалася. Кінетичний аналіз описав зростання швидкісного параметра без зміни Km. Це важливе історичне спостереження, а не структурне визначення кишені зв’язування людської Pol I.
Загальне співвідношення Міхаеліса–Ментен пояснює кінетичний опис:
v — швидкість реакції, S — концентрація визначеного субстрату, Vmax — гранична швидкість моделі, Km — концентрація для половини Vmax. Збільшення Vmax без зміни Km підтримує зміну каталітичної роботи за виміряних умов. Воно саме не визначає алостеричний залишок, не розмежовує всі зміни доступності ферменту й не встановлює клінічну швидкість регенерації. Транскрипція є багатокомпонентною; рівняння допомагає інтерпретувати, але не є повною моделлю живого ядерця.
Sonnenbichler і Zetl (1984) дослідили печінку щура in vivo після внутрішньоочеревинного введення. Ядерний синтез РНК зростав, максимально приблизно на 60 % через вісім годин, і нова рибосомна РНК включалася до зрілих рибосом. Вид, шлях і час належать до цього результату. Він не доводить подвоєння людського рибосомоутворення звичайною пероральною добавкою чи прискорення відновлення маси печінки на фіксований відсоток.
У ссавців Pol I транскрибує попередник майбутніх 18S, 5.8S та 28S рРНК. Первинний людський транскрипт зазвичай позначають 47S; ранній процесинг утворює 45S та наступні проміжні форми. Старіша література може наголошувати на 45S. Pol II транскрибує білок-кодувальні мРНК та різні некодувальні РНК; Pol III постачає тРНК і 5S рРНК. Транскрипт 5S не вирізається з попередника Pol I.
UBF, комплекс промоторної селективності SL1/TIF-IB і RRN3/TIF-IA беруть участь у транскрипції Pol I. UBF змінює архітектуру рДНК; SL1 містить TBP і пов’язані з Pol I TAF; RRN3 допомагає залучати полімеразу, компетентну до ініціації. Регуляція залежить від виду й експериментального опису. Схема дає контекст класичному результату, не демонструючи прямого фосфорилювання UBF силібініном через CK2, залучення SL1 чи перетворення всіх неактивних повторів рДНК на еухроматин. Ці конкретні дії не встановлені класичними дослідами.
Загальна послідовність процесингу:
Малі ядерцеві РНП спрямовують метилювання й псевдоуридилювання; фібриларин і дискерин є відповідними ферментними прикладами. Розщеплення та підрізання усувають зовнішні й внутрішні транскрибовані спейсери. 18S входить у малу субодиницю 40S; 28S, 5.8S та окремо синтезована 5S разом із білками входять у велику 60S. Експорт і кінцеве дозрівання забезпечують трансляційну компетентність. Коефіцієнти седиментації не додаються арифметично: з’єднана еукаріотична рибосома є 80S, а не 100S.
Гепатоцитам потрібна трансляція для заміни пошкоджених білків і виробництва альбуміну, факторів згортання, метаболічних ферментів і переносників. Біогенез рибосом тому є правдоподібною частиною відновлення. Проте потрібні також життєздатні клітини, енергія, амінокислоти, належні сигнали росту, цілісність судин і жовчних шляхів та контроль подальшого ушкодження. Більше міченого уридину в РНК не встановлює відновлення BSEP, MDR3/ABCB4 чи MRP2, нормального портального тиску або виживання пацієнта.
Експерименти часткової гепатектомії перевіряли синтез ДНК й регенеративні відповіді. Sonnenbichler et al. (1986) повідомили стимуляцію частково резектованої печінки щура й відсутність відповіді в перевірених злоякісних клітинних моделях. Це не виправдовує універсальне скорочення часу людської регенерації на 25–40 %. Хірургічна регенерація тварини, токсична травма й хронічна фіброзна хвороба — різні біологічні ситуації.
Відсутність стимуляції окремих ліній гепатоми чи інших злоякісних клітин вужча за доказ неможливості стимуляції кожного наявного пухлинного клону. Біогенез рибосом, Myc, PI3K/Akt/mTOR і клітинний цикл важливі для регенерації та раку; всі пухлини не працюють на одному незмінному максимальному рівні Pol I. Максимум одного аналізу не є онкологічним механізмом безпеки для будь-якого генотипу й дози.
Інші роботи показують зупинку циклу, зміни циклінів чи інгібіторів CDK та сигналів EGFR, STAT3 або Wnt у ракових моделях. Вони підтримують вивчення антипроліферативної активності, не гарантуючи протиракової користі людині. Відсутність стимуляції Pol II в ізольованій системі також не встановлює відсутності мутагенності, тератогенності чи тривалого пухлинного ризику. Для них потрібні окремі токсикологічні й клінічні докази.
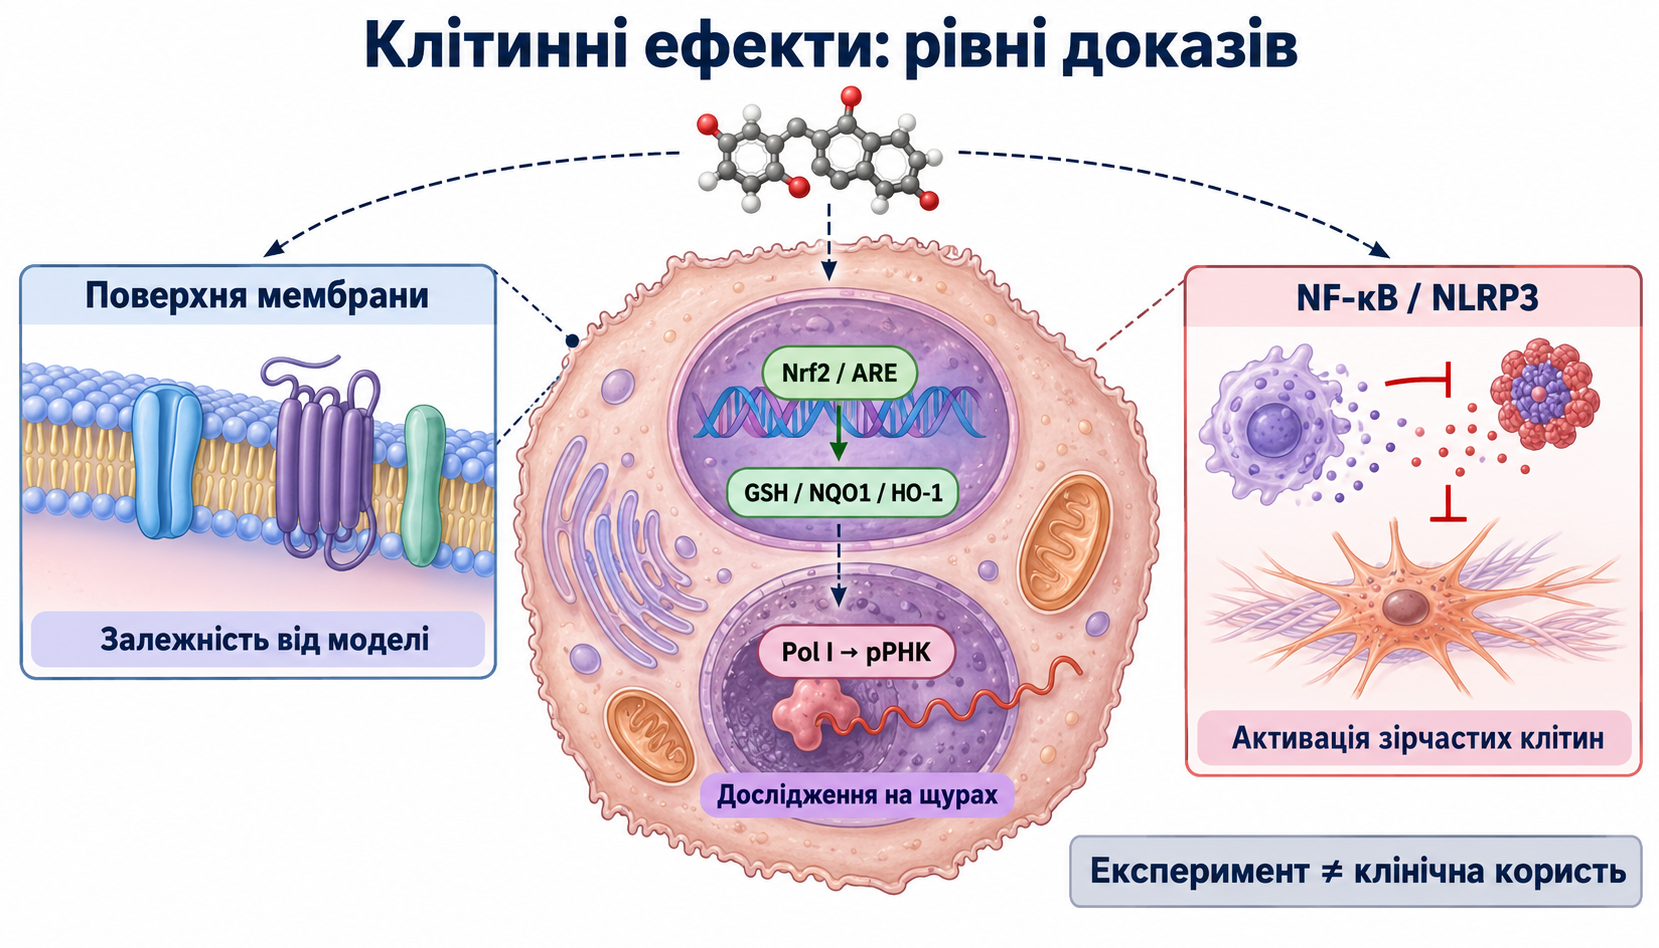
Ароматична структура силібіну з гідроксилами допускає радикал-поглинальні реакції в хімічних і біологічних системах. Фенольна група може віддавати атом водню з утворенням феноксильного радикала, стабільність якого залежить від структури та оточення:
Інший можливий шлях — перенесення електрона, потім протона:
Ar означає ароматичну групу, верхній знак крапки — неспарений електрон. Це концептуальні реакції, а не повний кількісний баланс усіх метаболітів і радикалів. Гідроксильні, супероксидні, ліпідні алкоксильні й пероксильні радикали та нерадикальні окисники, як-от пероксид водню чи хлорнуватиста кислота, мають різну кінетику. Пероксид водню — окисник, але не вільний радикал. IC50 одного тестового субстрату не є взаємозамінною константою швидкості іншої реакції.
Ліпідне переокиснення проходить ініціацію, поширення й завершення. Перехоплення ліпідних радикалів зменшує поширення ланцюга в належному середовищі. MDA, 4-HNE, кон’юговані дієни й сигнали активних форм кисню з барвниками надають інформацію різної специфічності. Менша одна сигналізація не визначає молекулярний крок і не доводить клінічно важливу регенерацію. Важливі вільна, білково-зв’язана й кон’югована концентрації біля мембрани: висока пробіркова концентрація не обов’язково відповідає звичайному прийманню всередину.
Keap1 є адаптером субстрату в системі убіквітин-лігази з Cul3, що сприяє обороту Nrf2. Окиснювальні чи електрофільні впливи змінюють регуляцію, дозволяючи Nrf2 накопичуватися й діяти в ядрі разом із малими Maf-білками на елементах антиоксидантної відповіді. Шлях поєднує виявлення стресу, транскрипцію й подальший синтез білків. Його назва на схемі не нейтралізує радикал безпосередньо.
Пов’язані з Nrf2 мішені включають GCLC/GCLM, NQO1 і HMOX1/HO-1, що впливають на доступність глутатіону та редокс-контроль. GPX4 відновлює фосфоліпідні гідропероксиди за участі глутатіону; ізоформи SOD і каталаза працюють на інших етапах. Вони не всі є еквівалентними кон’югувальними «ферментами фази II». Безпосередня модифікація Keap1 Cys151, Cys273 чи Cys288 препаратом є конкретнішим твердженням, ніж зміна білків шляху; потрібен доказ певного залишку, а не висновок із активації.
Доклінічні форми силібініну викликали Nrf2/ARE-пов’язані зміни, зокрема у роботі 2022 року з наночастинками силібінін–альбумін у моделях гострого ураження печінки. Це підтримує модель-специфічну відповідь, не доводячи універсальне зростання печінкового GSH на 30–60 % від перорального екстракту чи запобігання людському фероптозу. Форма, модель травми й експозиція мають супроводжувати результат (Ding et al., 2022).
Реакція GPX4 ілюструє встановлену біохімічну функцію:
PLOOH — фосфоліпідний гідропероксид, PLOH — відновлений спирт, GSH — відновлений глутатіон, GSSG — дисульфід. Відмінність цієї мембранно-ліпідної реакції від синтезу глутатіону та інших антиоксидантних процесів розглянута в GPX4, фероптозі та ліпідних пероксидах. Збереження маркерів GPX4 не є автоматичним доказом переважання фероптозу в конкретного пацієнта.
HO-1 утворює білівердин, монооксид вуглецю та залізо при розщепленні гему. Білівердин/білірубін і CO мають сигнальні чи захисні властивості, але вивільнене залізо потребує контрольованого поводження. Індукція HO-1 не завжди захисна в системі перевантаження залізом. Постійна активація Nrf2 може також підтримувати окремі злоякісні клітини; контекст важливий для відповіді, яку часто називають антиоксидантною.
Лабільні пули перехідних металів сприяють окиснювальній хімії. Феритин і трансферин підтримують контроль заліза, не усуваючи весь реактивний внутрішньоклітинний метал за патології. Дві реакції пояснюють можливий цикл:
Перша — реакція Фентона; друга за належних умов регенерує двовалентне залізо. Координація кисневмісними групами змінює доступність і редокс-поведінку. Вона залежить від pH, концентрації ліганду, конкурентів і ступеня окиснення. Малюнок комплексу 1:1 чи 1:2 не доводить необоротну інактивацію всього печінкового заліза чи заміну лікування, яке його виводить.
Hutchinson et al. (2010) дослідили десять повністю пролікованих пацієнтів, гомозиготних за HFE C282Y, у перехресному експерименті з їжею. Силібін під час їди зменшив постпрандіальну відповідь сироваткового заліза. Це вказує на можливий ефект всмоктування в невеликій вибірці, не встановлюючи виведення накопиченого заліза, запобігання фіброзу чи смертності. Дефіцит і перевантаження залізом різні; «сидеропенічне перевантаження» їх змішує. Дослідження допоміжного силімарину при трансфузійному перевантаженні також включають звичайну хелацію, яку не можна замінювати екстрактом на підставі цих робіт.
Клітини Купфера — резидентні печінкові макрофаги; інфільтруючі моноцити, нейтрофіли, гепатоцити й зірчасті клітини теж беруть участь у запальній травмі. LPS і сигнали пошкодження активують вроджені шляхи. У канонічному TLR-пов’язаному ланцюгу MyD88/IRAK/TRAF ведуть до IKK, фосфорилювання й деградації IκB та ядерної активності NF-κB, зокрема p50/p65. Це опис шляху, а не доказ єдиної гілки для всіх стимулів.
Manna et al. (1999) виявили зменшення TNF-індукованих відповідей NF-κB силімарином у клітинних моделях, включаючи IκB та репортерну транскрипцію. Це підтримує протизапальну гіпотезу, не встановлюючи універсальну IC50 IKK у клітинах Купфера, зайняття конкретної кишені кінази чи зменшення всіх TNF, IL-1β й IL-6 у людей. Менше фосфорилювання p65 або експресії кінцевого гена виникає через різні попередні механізми.
Пригнічення запального показника не тотожне корисному пригніченню всього вродженого імунітету печінки. Макрофаги прибирають рештки, захищають від патогенів і підтримують завершення запалення. Питання полягає в покращенні відповіді за досяжної експозиції без неприйнятних наслідків, а не зникненні всієї імунної активації.
Модель двох сигналів розмежовує підготовку зі збільшенням NLRP3 і pro-IL-1β та активацію/збирання з ASC і прокаспазою-1. Вихід калію, мітохондріальні порушення й інші стресові процеси сприяють залежно від стимулу. Активована каспаза-1 обробляє IL-1β й IL-18 та бере участь у газдермін-D-залежній проникності. Не кожна травма гепатоцита є піроптозом; зменшення цитокінів не доводить пряме пригнічення газдермінових пор.
Zhang et al. (2017) дослідили мишей на високожировій дієті й культивовані гепатоцити. Пригнічення збирання інфламасоми силібіном пов’язали з NAD⁺/SIRT2, ацетилюванням мікротрубочок і меншим стресом ендоплазматичного ретикулума. Це інформативна тваринна/клітинна робота, а не доказ прямого зв’язування силібініну з піриновим доменом NLRP3 для блокування ASC у людських клітинах Купфера. Зв’язки з активними формами кисню, мітохондріальною ДНК чи потенціалом теж не визначають єдину мішень зв’язування.
Арахідонова кислота, вивільнена з фосфоліпідів, живить циклооксигеназні й ліпоксигеназні шляхи. 5-LOX бере участь в утворенні лейкотрієнів, COX — простаноїдів. Експерименти із силімарином/силібіном повідомляють зміни цих шляхів, зокрема 5-LOX-пов’язаних відповідей і COX-2. Інгібування ферменту, пригнічення транскрипції та зміна доступності субстрату — різні механізми (Gupta et al., 2000).
Окрема модель не встановлює універсального зниження печінкового LTB4 більш ніж на 70 %. COX-1 не виключно захисна, COX-2 не виключно шкідлива; функція залежить від тканини й часу. Клітинний протизапальний профіль не доводить НПЗП-подібну клінічну ефективність із гарантованою відсутністю шлунково-кишкової кровотечі чи виразок.
Неактивні зірчасті клітини зберігають ретиноїди в ліпідних краплях. За постійного ушкодження набувають міофібробластного фенотипу, збільшують α-гладеньком’язовий актин і продукують матрикс, зокрема колагени I та III. TGF-β через Smad2/3 і Smad4 — важливий фіброгенний шлях; PDGF підтримує проліферацію й міграцію. Оборот матриксу залежить від MMP, TIMP, стану клітин і тривалості травми. Фіброз динамічний і може регресувати; не будь-яке ушкодження неминуче переходить у цироз.
Trappoliere et al. (2009) дослідили культивовані людські зірчасті клітини й показали зміни запальних і фіброгенних відповідей, включаючи PDGF-залежну проліферацію/міграцію й TGF-β-пов’язаний синтез колагену. Це біологічна правдоподібність. Менший Smad-сигнал не доводить пряме інгібування каталітичного сайту ALK5; змінена експресія TIMP/MMP не є розчиненням сформованого людського рубця. Клінічні кінцеві точки фіброзу потребують оцінювання, бажано передбачених гістологічних чи валідованих показників.
Гепатит C показує важливість шляху введення. Ahmed-Belkacem et al. (2010) повідомили пригнічення РНК-залежної РНК-полімерази NS5B сполуками силібініну в біохімічних та експериментальних системах. Інші роботи дослідили вхід вірусу, злиття мембран, поширення між клітинами й ліпідні етапи (Wagoner et al., 2010). Відмінні результати для форм, репліконів та інфекційних моделей не дозволяють стверджувати єдину просту універсально визначену алостеричну кишеню NS5B.
Вхід HCV потребує CD81, SR-BI та білків щільних контактів серед інших факторів. Пригнічення інфекції або мембранного злиття не доводить пряме конкурентне зв’язування з кожним рецептором. Ефективну щодо ізольованої NS5B концентрацію не перераховують прямо на пероральну дозу: втручаються розчинність, білкове зв’язування, кон’югація й клітинна доставка.
Ferenci et al. (2008) дослідили внутрішньовенний силібінін у пацієнтів, які не відповіли на пегінтерферон/рибавірин. Вірусна РНК зменшилася під час інфузії в цьому історичному контексті. Це не встановлює стійке вірусологічне вилікування, довготривалу виживаність чи успіх звичайного перорального екстракту. Випадки й невеликі серії трансплантації також не є рандомізованим доказом профілактики в усіх реципієнтів. Історичне спостереження важливе для механізму, не є універсальною заміною підтвердженому противірусному лікуванню.
Fried et al. (2012) рандомізували 154 пацієнтів із хронічним HCV після невдалого інтерферонового лікування на пероральний силімарин 420 мг чи 700 мг тричі на день або плацебо на 24 тижні. Не було суттєвої переваги первинної ALT-кінцевої точки чи переконливого зменшення HCV RNA. Дози наведені на приймання, а не на всю добу. Негативний пероральний дослід не скасовує всіх внутрішньовенних спостережень, проте чітко обмежує взаємозамінність противірусної ефективності.
Внутрішньовенний сукцинат силібініну має специфічну токсикологічну роль у певних клінічних умовах і фармакологічно відрізняється від капсул розторопші. Конкретна характеристика препарату описує добову кількість, еквівалентну 20 мг силібініну/кг, у чотирьох двогодинних інфузіях із контролем рідинного балансу. Інші спеціалізовані протоколи використовували навантажувальну дозу з безперервною інфузією. Це опис контрольованого застосування ліків, а не універсальна схема самолікування чи лікування будь-якої печінкової хвороби.
Enjalbert et al. (2002) ретроспективно проаналізували історичні повідомлення. Такі докази можуть підтримувати втручання в рідкісному небезпечному отруєнні, але залежать від часу, супутньої терапії, тяжкості й повідомлення випадків. Історичне порівняння смертності не ізолює дію препарату як рандомізація. Твердження про незмінне зниження смертності нижче 5 %, усунення потреби трансплантації чи порятунок кожної летальної дози перевищує докази.
Шлунково-кишкові симптоми можуть бути відстрочені, з оманливим покращенням перед печінковою недостатністю. Потрібні термінова токсикологічна оцінка та контроль печінки, нирок, коагуляції й стану. Рідина й електроліти, вибрані методи деконтамінації, інші допоміжні засоби та оцінювання трансплантації — окремі складові допомоги. «Форсований діурез» не є автоматично безпечним очищенням; баланс рідини й ниркова функція потребують індивідуальних рішень. N-ацетилцистеїн у цьому контексті — питання допоміжної клінічної терапії, не доказ взаємозамінності NAC і перорального силімарину як антидотів.
Метаболічно асоційована стеатотична хвороба та стеатогепатит включають накопичення ліпідів, метаболічний стрес, запалення й у частини хворих прогресивний фіброз. Старі випробування використовували NAFLD/NASH і відповідні критерії. Без повторної оцінки не можна вважати їхні популяції такими, що відповідають усім новим визначенням. ALT, стеатоз, інсулінорезистентність, стадія фіброзу та клінічні події вимірюють різні аспекти.
Loguercio et al. (2012) дослідили комбінацію силібін–фосфатидилхолін–вітамін E протягом 12 місяців. Із 179 пролікованих учасників із NAFLD 36 також мали HCV; 41 вибув, 138 проаналізували за протоколом. Повідомили покращення ферментів, HOMA й окремої гістології. Вибування й початковий гістологічний дисбаланс ускладнюють тлумачення. Комбіноване втручання не виділяє ефект силібіну й не встановлює загальний результат фази III для всіх MASH. Не варто переносити його на іншу форму лише через наявність компонента розторопші.
Відповідний індекс натще:
Знаменник відповідає зазначеним одиницям глюкози; інша схема використовує мг/дл та інший знаменник. Зміни HOMA-IR — зміни непрямої оцінки, залежні від відбору й аналізу, не доказ зворотного розвитку фіброзу. Деталі наведено в HOMA-IR, TyG і QUICKI.
Chan et al. (2017) рандомізували 99 людей із біопсійно підтвердженим NASH на силімарин 700 мг тричі на день чи плацебо на 48 тижнів. Первинне зменшення NAS щонайменше на 30 % відбулося у 32,7 % проти 26,0 %, без значущої різниці (P = 0,467). Вторинне гістологічне покращення фіброзу було частішим у активній групі: 22,4 % проти 6,0 % (P = 0,023). Сигнал вартий подальшого вивчення, проте не перетворює негативну первинну точку на встановлену хворобомодифікувальну дію.
Navarro et al. (2019) рандомізували 78 учасників на 420 мг чи 700 мг силімарину тричі на день або плацебо. Визначені гістологічні відповіді становили 19 %, 15 % та 12 % (P = 0,79), без первинної користі. Центральний перегляд виявив невідповідність багатьох учасників гістологічним критеріям включення. Випробування монотерапії й комбінації відрізняються формою та дизайном; загальна користь чи еквівалентність не доведені.
Метаболізм етанолу алкогольдегідрогеназою та альдегіддегідрогеназою утворює ацетальдегід і змінює NADH/NAD⁺; CYP2E1 підтримує окиснювальний стрес. Експериментальне збереження глутатіону чи зменшення переокиснення важливі для біології травми. Вони не доводять надійне переокиснення надлишкового NADH силібініном, нейтралізацію постійного алкоголю чи лікування тяжкого алкогольного гепатиту.
Ferenci et al. (1989) рандомізували 170 хворих на цироз на силімарин чи плацебо. Чотирирічна виживаність становила 58 ± 9 % проти 39 ± 9 %; ± означає стандартну похибку, P = 0,036. Історичні умови й підгрупи обмежують узагальнення для сучасних хворих усіх етіологій та стадій.
Parés et al. (1998) рандомізували 200 людей з алкогольним цирозом і не виявили переваги виживання чи перебігу. Цей результат потрібен поряд із раннім позитивним. Ферменти не є прямими показниками портального тиску, кліренсу чи тривалої синтетичної функції. Неоднорідні докази не гарантують зменшення трансплантацій чи смертності при цирозі.
Токсичність парацетамолу включає NAPQI, виснаження глутатіону та мітохондріальну травму за токсичної експозиції. Захист силімарином тварини чи клітини не встановлює ефективної заміни термінового лікування передозування. Шлях, час, токсинова доза й форма визначають успіх; попередньо оброблена тварина не відповідає пацієнту після передозування.
Протитуберкульозна лікарська травма — інший неоднорідний контекст. Luangchosiri et al. (2015) повідомили профілактичний сигнал у невеликому випробуванні 55 учасників. Інші профілактичні й лікувальні роботи не показали послідовної користі; запобігти травмі й лікувати наявну — різні питання. Визначення DILI, тривалість і супутня терапія відрізняються. Не можна гарантувати триразове зменшення ризику чи збереження протимікробної ефективності додаванням силімарину до кожної схеми (Marjani et al., 2016; лікувальне випробування, 2019).
Ladas et al. (2010) включили 50 дітей із гострою лімфобластною лейкемією та гепатотоксичністю в пілотне рандомізоване дослідження. На день 28 не було значущої різниці ALT, AST чи білірубіну. На день 56 AST була нижчою з розторопшею (P = 0,05), а ALT мала незначущу тенденцію (P = 0,07). Зменшення доз хіміотерапії були чисельно рідшими, але різниця незначуща. Це пошукові результати, не доказ кращих онкологічних наслідків чи причина змінювати хіміотерапію без спеціалізованої оцінки.
| Дослідження / ситуація | Форма й дизайн | Основне тлумачення |
|---|---|---|
| Enjalbert 2002, аматоксини | Історичний ретроспективний аналіз лікування | Підтримує вивчення/застосування при рідкісній ургентній ситуації; не рандомізований ефект смертності |
| Ferenci 1989, цироз | Пероральний рандомізований дослід, 170 учасників | Сигнал виживання в одному історичному випробуванні |
| Parés 1998, алкогольний цироз | Рандомізований дослід, 200 учасників | Без користі виживання чи перебігу |
| Loguercio 2012, NAFLD | Комбінація з фосфатидилхоліном і вітаміном E; 179 пролікованих, 138 за протоколом | Окремі покращення; комбінування й вибування обмежують висновок |
| Fried 2012, хронічний HCV | 420 чи 700 мг перорально тричі на день, 154 учасники | Негативна первинна ALT; непереконлива противірусна користь |
| Chan 2017, NASH | Пероральний силімарин, 99 учасників | Негативна первинна NAS, вторинний сигнал фіброзу |
| Navarro 2019, NASH | Пероральний силімарин, 78 учасників | Без первинної гістологічної користі; проблема критеріїв входу |
| Ladas 2010, дитяча лейкемія | Пероральна форма, пілот, 50 учасників | Вибрані відстрочені ферментні результати, не встановлена користь хіміотерапії |
Багато пероральних робіт описують прийнятну переносимість, зі шлунково-кишковими симптомами, свербежем та іншими незначними реакціями в частини людей. Можлива алергія, зокрема чутливість до Asteraceae. Ідентичність, забруднення й додаткові складники важливі. Висока тваринна LD50 чи мала робота з переносимості не встановлюють універсальної відсутності тератогенного або мутагенного потенціалу. Вагітність, лактація, дитячий вік і тяжка печінкова дисфункція потребують окремих даних, не екстраполяції від здорового дорослого.
Форми з високою експозицією й експериментальні високі дози не успадковують безпеку звичайного приймання без оцінювання. Вільна й кон’югована концентрації, незв’язана фракція та портальна експозиція різняться. Транзиторні зміни білірубіну чи ферментів при високих дозах показують, чому «гепатопротекторний» не означає нездатність змінювати печінкові аналізи.
Компоненти силібіну інгібують CYP2C9-залежний метаболізм варфарину in vitro (Brantley et al., 2010). Досліджували також CYP3A та UGT. Концентрація, субстрат і форма важливі; мікросомна IC50 не гарантує клінічної взаємодії. Низька середня експозиція однієї форми не виключає взаємодій усіх більш біодоступних засобів чи вразливих людей.
UGT1A1 бере участь у глюкуронідації білірубіну й SN-38. SN-38 — активний метаболіт іринотекану, тому зміну його фармакокінетики треба відділяти від вихідного препарату. Van Erp et al. (2005) перевірили конкретний пероральний режим у невеликій фармакокінетичній роботі онкологічних пацієнтів і не виявили суттєвого ефекту на іринотекан. Це уточнює висновок із ферментного інгібування, не сертифікує всі форми як вільні від взаємодій.
Спостереження P-глікопротеїну/ABCB1 теж залежать від системи й субстрату. Gurley et al. (2006) не виявили суттєвої зміни фармакокінетики дигоксину з перевіреною формою в здорових добровольців. Отже, збільшення біодоступності дигоксину не є універсально встановленим ефектом. Печінкове OATP-інгібування — інший можливий механізм, особливо при збільшенні експозиції. Повторне захоплення кон’югатів білірубіну через OATP та кон’югація через UGT різні й дають різні фракційні профілі.
Для засобів вузького терапевтичного діапазону, як варфарин, потенційна взаємодія важлива навіть за невизначеного масштабу. Оцінювання має встановити точний засіб, шлях, дозу, інші ліки й моніторинг. Це корисніше за твердження про інгібування всіх ферментів усіма засобами або неможливість взаємодій за звичайних доз.
Література містить кількасот міліграмів екстракту на добу, високі пероральні дози, фосфоліпідні комплекси й вагозалежні внутрішньовенні кількості. Вони описують конкретні втручання, не одну стандартну профілактичну схему й не перерахунок між формами універсальним коефіцієнтом. Загальна маса екстракту, визначені флавонолігнани, еквівалент силібініну й маса похідної — різні величини.
| Величина чи кінцева точка | Корисне значення | Важлива межа |
|---|---|---|
| Склад / профіль HPLC | Ідентичність і кількість складників | Стандартизовані суми не роблять усі екстракти однаковими |
| Вільний чи загальний плазмовий аналіт | Різні визначення експозиції | Загальний після гідролізу не є некон’югованою концентрацією |
| AUC / Cmax / Tmax | Формоспецифічна фармакокінетика | Більша експозиція не доводить клінічної користі |
| ALT / AST | Біохімічні ознаки ушкодження | Менше ферментів не автоматично краща синтетична функція чи виживання |
| Альбумін / INR і клінічний стан | Частини оцінки синтетичної функції й тяжкості | Залежать від хвороби й інших факторів; не взаємозамінні з ALT |
| NAS / фіброз / жорсткість | Різні активні чи структурні показники | Вторинна зміна чи жорсткість не автоматично ефект смертності |
| HCV RNA під час інфузії | Противірусна активність цього шляху й експозиції | Короткий спад не є стійким вилікуванням чи доказом перорального екстракту |
| Смертність / трансплантація | Важливі для пацієнта результати | Історичні порівняння та рідкісні серії потребують обережності причинного висновку |
Хімічну ідентичність, форму, експериментальний контекст і кінцеву точку слід розглядати разом. Мембранні взаємодії, синтез РНК та редокс-сигнали є перспективними механізмами досліджень. Вони не усувають негативні рандомізовані результати й не утворюють універсальне призначення гепатопротекції.
Цей наративний науковий огляд підготовлено 8 жовтня 2026 року. Адресні перевірки первинних публікацій охопили ідентичність сполук, мембранні досліди, OATP, класичні щурячі РНК-дослідження, фармакокінетику, людські печінкові випробування й взаємодії. Доступні анотації журналів або PubMed використано для конкретних популяцій, втручань і головних результатів; окремі доступні повні тексти чи характеристики препаратів додали контекст. Доступ різнився; перевірка анотації не є аудитом усіх аналізів, додатків і специфікацій партій.
Це не систематичний пошук чи оцінювання GRADE. Незалежного зовнішнього рецензування й клінічної валідації статті не проводили. Загальний біохімічний контекст відокремлено від прямо перевірених дій, позначено тваринні, клітинні, спостережні й рандомізовані докази. Дози описують дослід або спеціалізований лікарський контекст, не універсальний протокол. Молекулярні мотиви ілюстрацій концептуальні й не зображають експериментально визначені структури зв’язування.
Ні. Екстракт містить кілька речовин; силібінін зазвичай є парою A/B. Похідні й доставка також відрізняються.
Ні. Це фармакокінетичний результат і можливе зростання взаємодій. Клінічні наслідки потребують власних випробувань.
Класичні дані експериментальні й щурячі. Більше рРНК саме не встановлює функцію органа або виживання.
Ні. Внутрішньовенна похідна — окремий спеціалізований засіб. Потрібна термінова токсикологічна оцінка; капсули не рівноцінний антидот.