Ресвератрол та імунна сигналізація: STAT3, NF-κB і суперечності SIRT1
Механізми STAT3, NF-κB та NAD⁺-залежного деацетилювання; суперечливі дані Th17/Treg, фармакокінетика та позитивні й негативні клінічні випробування.
Ресвератрол цікавий імунології тому, що в експериментальних системах змінює кілька процесів: передачу цитокінових сигналів, ацетилювання білків, енергетичний обмін і утворення запальних медіаторів. Однак вислів «пригнічує запалення» приховує суттєву невизначеність. Один фермент може зменшувати транскрипцію прозапальних генів у макрофазі та водночас підтримувати програму Th17 у Т-лімфоциті. Зміна маркера в клітинній культурі також не доводить, що приймання капсул зменшить активність автоімунної хвороби.
Тому ресвератрол варто розглядати як дослідницьку молекулу з контекстно залежними ефектами, а не як селективний інгібітор STAT3 або універсальний активатор протизапальної програми. Для розуміння його можливостей потрібні три окремі лінії доказів: яка реакція справді змінюється, чи досягається відповідна експозиція в організмі та чи поліпшується важливий для пацієнта результат. Ці лінії поки що сходяться далеко не в усіх захворюваннях.
Від рослинного стильбену до клітинного експерименту
Ресвератрол — 3,5,4′-тригідроксистильбен із формулою C₁₄H₁₂O₃ і молекулярною масою приблизно 228,24 г/моль. Два ароматичні кільця сполучені етиленовим містком; геометрія подвійного зв’язку визначає trans- і cis-форми. У більшості біомедичних досліджень використовують trans-ресвератрол. Світло може змінювати ізомерний склад, тому склад препарату, розчинник та умови зберігання мають значення для відтворюваності. Сама назва речовини не гарантує ідентичності експериментального матеріалу.
У рослині це компонент захисної відповіді, а не спеціально створений регулятор людського імунітету. Стильбенсинтаза, полікетидсинтаза III типу, використовує p-кумароїл-CoA і три молекули малоніл-CoA. Послідовні декарбоксилювальні конденсації подовжують вуглецевий ланцюг; подальша циклізація та додаткова втрата карбоксильної групи формують стильбеновий скелет. CoA переносить активовані ацильні залишки, а малонільні групи постачають вуглецеві фрагменти. Споріднена халконсинтаза використовує подібні початкові субстрати, але спрямовує циклізацію до іншого класу продуктів. Це приклад того, як завершення ферментативної реакції визначає біологічно різні молекули.
Фенольні гідроксильні групи беруть участь у перенесенні водню та впливають на взаємодії з білками, але здатність поглинати радикали в пробірці не доводить системного антиоксидантного ефекту. У живій клітині результат залежить від концентрації, середовища, метаболізму та тривалості впливу. За високих концентрацій зниження запального сигналу може супроводжувати енергетичний стрес, зупинку клітинного циклу або зниження життєздатності. Без контролю цих процесів не можна впевнено відрізнити корисну регуляцію від загальної токсичності.
STAT3: передача сигналу, а не ферментативна мішень за замовчуванням
STAT3 — транскрипційний фактор. Він не переносить фосфат з ATP на інші білки й не є кіназою. У класичній схемі цитокін, наприклад IL-6, зв’язується з рецепторним комплексом, що містить gp130. Асоційовані JAK-кінази використовують ATP як донор фосфатної групи, фосфорилюють ділянки рецептора та створюють місця приєднання сигнальних білків. SH2-домен STAT3 розпізнає фосфотирозинові ділянки; далі фосфорилювання Tyr705 сприяє утворенню димерів і накопиченню активного фактора в ядрі.
Димер взаємодіє з регуляторними ділянками ДНК і разом з іншими білками змінює транскрипцію. Тому однаковий ступінь фосфорилювання STAT3 може мати різні наслідки в епітеліальній клітині, пухлинній клітині та Т-лімфоциті. Фосфорилювання Ser727 також впливає на функцію STAT3, але його внесок залежить від сигналу й клітинного компартмента. Деякі функції STAT3 пов’язані з мітохондріями й не зводяться до описаної ядерної послідовності. Один імуноблот на phospho-STAT3 не відтворює всіх цих процесів.
Сигнал обмежують рецепторна динаміка, білки SOCS і фосфатази. Тирозинові фосфатази справді каталізують гідроліз фосфотирозину; називати їх «некаталітичними гальмами» неправильно. Водночас SHP2 бере участь і в передачі сигналів, зокрема через MAPK, тому її наявність не завжди означає просте вимкнення шляху. Навіть функція негативного зворотного зв’язку залежить від часу та конкретного рецепторного комплексу.
Ресвератрол у низці клітинних моделей зменшує фосфорилювання STAT3 або експресію залежних від нього генів. Це допускає кілька пояснень: зміну рецепторного сигналу, роботи кіназ і фосфатаз, енергетичного стану чи ацетилювання білків. Воно не підтверджує автоматично пряме зайняття SH2-кишені ресвератролом. Для такого твердження потрібні незалежні дослідження зв’язування, кількісна біофізика, перевірка конкуренції та функціональна валідація. Точні константи спорідненості й переліки контактних амінокислот не можна переносити з обчислювального docking до опису встановленого механізму.
Ацетилювання: чому один SIRT1 не визначає напрям імунної відповіді
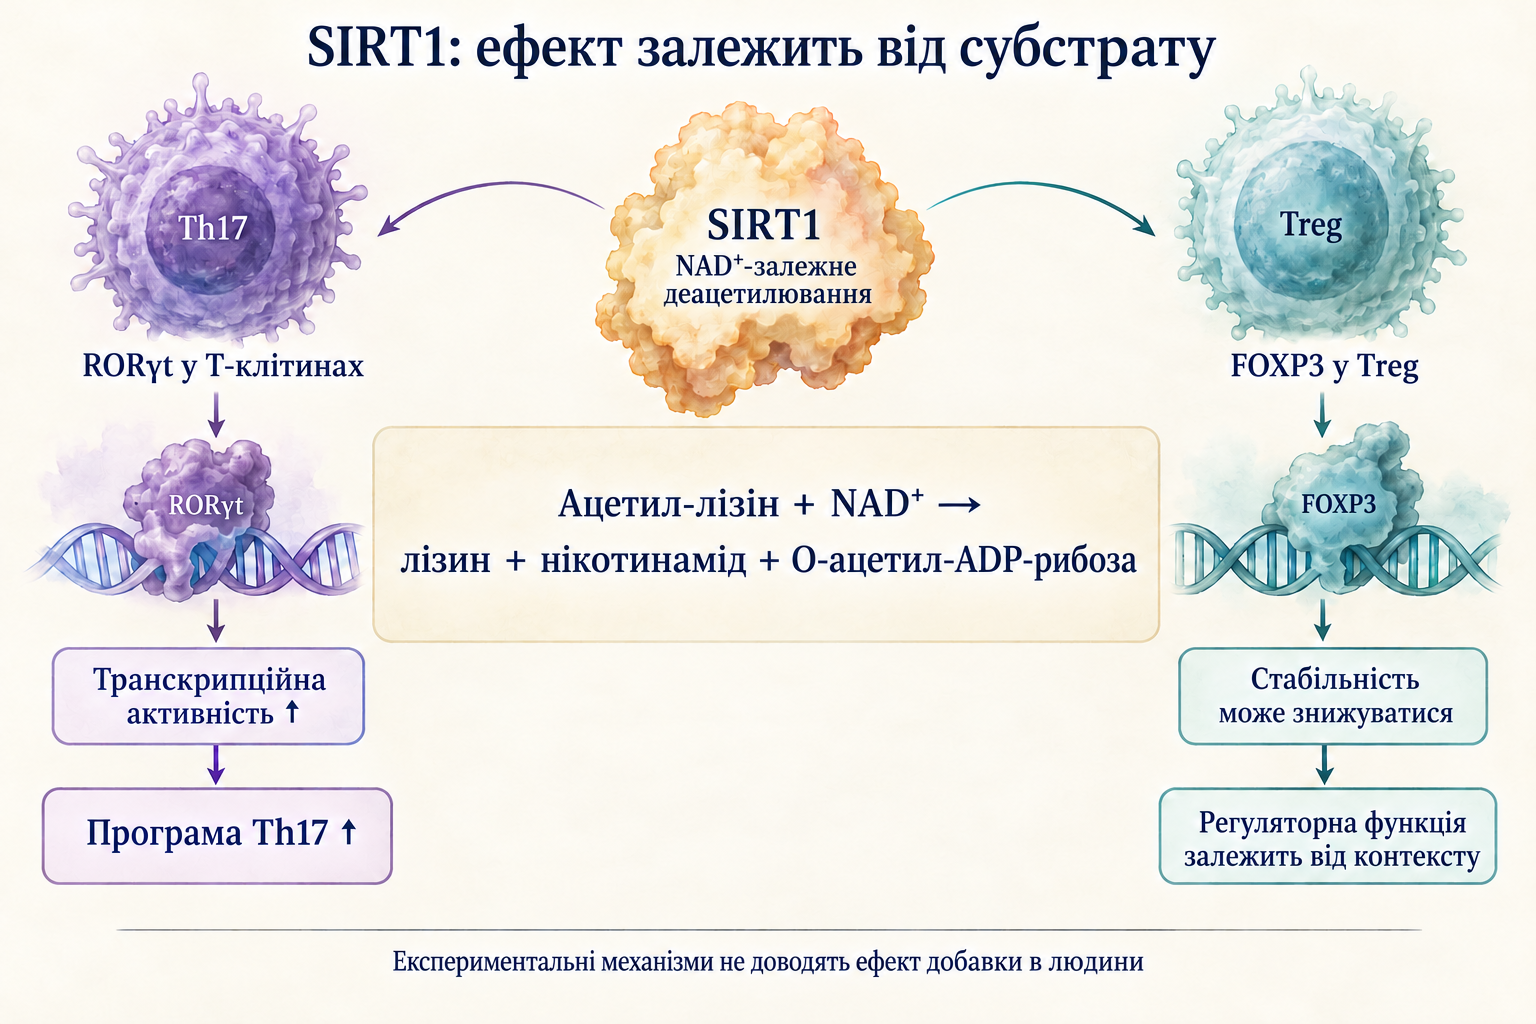
Ацетилтрансферази, включно з p300, переносять ацетильну групу з ацетил-CoA на лізинові залишки білків. Це змінює заряд, взаємодії та іноді стабільність білка. SIRT1 — NAD⁺-залежна деацетилаза: у її реакції ацетильований лізин і NAD⁺ перетворюються на деацетильований лізин, нікотинамід та O-ацетил-ADP-рибозу. NAD⁺ тут витрачається як косубстрат, а не є лише абстрактним «коферментом довголіття». Активність залежить від доступності субстратів, продуктів реакції та клітинного стану.
SIRT1 діє переважно в ядерних і цитоплазматичних регуляторних процесах. Його не слід змішувати з мітохондріальним SIRT3 або вважати, що зміна одного сиртуїну описує все деацетилювання в клітині. Можливе деацетилювання STAT3, NF-κB, FOXO та інших білків також не можна підсумувати як незмінно корисний ефект: у кожного субстрату свої партнери й функції.
Історія ресвератролу як «прямого активатора SIRT1» показує значення методу вимірювання. Ранні ферментні досліди використовували мічені пептиди. У подальших дослідженнях стимуляція зникала, коли деякі штучні субстрати замінювали неміченими, що поставило під сумнів універсальну пряму активацію. Потім біохімічні й структурні роботи показали можливість алостеричної, субстрат-залежної стимуляції: певні гідрофобні елементи субстрату допомагають сформувати відповідну взаємодію. Ці результати не скасовують один одного повністю, але обмежують узагальнення. Ресвератрол не підвищує однаково швидкість деацетилювання всіх фізіологічних білків, а ефект на одному тестовому пептиді не характеризує весь організм.
У дослідженні Lakshminarasimhan і співавторів тестували 6802 фізіологічні ділянки ацетилювання на пептидних мікроматрицях. Використовували 200 мкМ ресвератролу та 1 мМ NAD⁺ за двогодинної інкубації; частина реакцій посилювалася, частина пригнічувалася, більшість змінювалася мало. Перевірка окремих немічених пептидів у розчині підтримала залежність від послідовності. Ці умови корисні для ферментології, але не описують звичайну концентрацію вільного ресвератролу після приймання добавки.
Особливо важливий приклад RORγt, транскрипційного регулятора Th17. У первинній роботі Lim і співавторів SIRT1 деацетилював RORγt та посилював його транскрипційну активність і утворення Th17. Видалення Sirt1 у Т-клітинах або його фармакологічне інгібування зменшувало відповідну програму й захищало мишей у моделі експериментального автоімунного енцефаломієліту. Тому схема «ресвератрол активує SIRT1, отже пригнічує Th17» суперечить установленому механізму в цій системі.
Робота Limagne і співавторів 2017 року показала інший результат в іншій експериментальній постановці: фармакологічні агоністи SIRT1, включно з ресвератролом, зменшували диференціювання мишачих і людських Th17. Ефект пов’язували з деацетилюванням STAT3, зменшенням його перенесення в ядро та зв’язування з промотором Rorc. У мишачих пухлинних моделях це супроводжувало обмеження росту пухлини. Клінічна частина стосувалася метформіну в онкологічних пацієнтів, тому її не можна подавати як випробування ресвератролу. Разом із роботою про RORγt цей результат показує різницю між базальною активністю SIRT1, фармакологічним впливом і конкретним субстратом. Вибирати лише одну роботу та оголошувати її універсальним правилом неправильно.
Інший приклад — FOXP3. Ацетилювання може стабілізувати цей білок і зменшувати його убіквітинування та протеасомну деградацію. У відповідних моделях SIRT1-залежне деацетилювання може послаблювати стабільність FOXP3 і регуляторну функцію Т-клітин. Стверджувати, що деацетилювання FOXP3 завжди посилює Treg, не можна. Ці дані не означають, що ресвератрол незмінно погіршує імунну регуляцію; вони означають, що напрям ефекту треба вимірювати в конкретній системі.
Th17 і Treg: мережа взаємодій замість двопозиційного перемикача
Диференціювання CD4⁺-лімфоцитів залежить від поєднання сигналів, антигенної стимуляції та тканинного середовища. IL-6 і STAT3 беруть участь у програмі Th17 разом із RORγt; IL-23 підтримує певні стани цих клітин. Сигнали TGF-β мають різні наслідки залежно від супутніх цитокінів. Для Treg важливі FOXP3 і підтримка через IL-2/STAT5. Описувати кожну молекулу як винятково прозапальну чи захисну — означає спрощувати систему до втрати змісту.
Th17 беруть участь у захисті слизових та відповіді на певні позаклітинні мікроорганізми. Їх зменшення саме собою не є універсальною терапевтичною перевагою. Treg обмежують надмірні реакції, але надмірне пригнічення відповіді також може мати небажані наслідки. До того ж клітинні стани пластичні: експресія одного маркера не завжди означає стійку функціональну лінію.
В експерименті з ресвератролом треба розрізняти частку клітин, абсолютне число, утворення цитокінів і справжню супресорну функцію. Зменшення відсотка IL-17⁺-клітин через загибель активованих лімфоцитів не дорівнює відновленню імунної толерантності. Зміна співвідношення Treg/Th17 у крові також не обов’язково відображає ситуацію в кишківнику, суглобі чи центральній нервовій системі. Для клінічного висновку потрібні дані про відповідну тканину та результати хвороби.
NF-κB, енергетичний обмін і паралельні шляхи
У канонічній передачі сигналу NF-κB утримується білками IκB. За активації комплексу IKK фосфорильований IκB спрямовується до убіквітинування та протеасомного руйнування, після чого компоненти NF-κB можуть накопичуватися в ядрі. Там транскрипція залежить не лише від кількості фактора, а й від його модифікацій та коактиваторів. Деацетилювання p65/RelA, зокрема Lys310, може зменшувати певні транскрипційні відповіді. Це один можливий вузол дії SIRT1, а не доказ, що будь-який ефект ресвератролу проходить лише через нього.
У моделях стимуляції LPS або амілоїдом досліджували зміни TLR4/NF-κB/STAT-сигналізації в мікроглії. Такі досліди допомагають зрозуміти запальну реакцію клітин, але не дорівнюють лікуванню нейродегенерації чи системного автоімунітету. Концентрація сполуки, тривалість впливу, стан культури й оцінка життєздатності визначають, наскільки результат стосується саме регуляції сигналу.
Інша гілка пов’язана з cAMP та AMPK. Фосфодіестерази гідролізують cAMP до 5′-AMP; зниження їхньої активності може змінювати передачу сигналу через PKA і Epac. Робота Park і співавторів пов’язала деякі метаболічні ефекти ресвератролу з інгібуванням cAMP-фосфодіестераз і подальшими сигнальними змінами. AMPK — комплекс, чутливий до енергетичного стану, а фосфорилювання її каталітичної субодиниці за Thr172 регулюють вищі кінази, включно з LKB1 і CaMKK. Це багатоступенева мережа, а не доказ прямої та селективної активації AMPK капсулою ресвератролу.
Мітохондріальні зміни та співвідношення ATP, ADP і AMP можуть впливати на цю мережу незалежно від прямого зв’язування із SIRT1. Тому збіг активації AMPK і зниження запальних маркерів ще не встановлює причинної послідовності. Корисні генетичне вимкнення передбачуваного вузла, незалежні інгібітори, вимірювання енергетичних метаболітів і перевірка часового порядку подій. Кожен метод має обмеження, тому найпереконливіше узгодження кількох підходів.
Утворення зрілого IL-1β також потребує розрізнення підготовчої транскрипційної стадії та подальшої активації інфламасоми. NF-κB може збільшувати доступність попередника цитокіну та компонентів NLRP3, але зниження їхньої експресії не дорівнює прямому блокуванню складання інфламасоми чи активності каспази-1. Змішування цих етапів приписує молекулі точніший механізм, ніж демонструє дослід.
Всмоктування та біодоступність: різні питання
У дослідженні Walle і співавторів шість добровольців отримали 25 мг міченого ресвератролу; порівняння шляхів введення показало високе всмоктування, але дуже низьку доступність незміненої молекули. Всмоктування становило щонайменше 70%, тоді як концентрація незміненого ресвератролу була нижчою за 5 нг/мл. Більша частина виміряного матеріалу представляла метаболіти. Це пояснює сумісність тверджень «добре всмоктується» і «в крові мало вільної сполуки».
Глюкуронування виконують UDP-глюкуронозилтрансферази, пов’язані з ендоплазматичним ретикулумом. Донором глюкуронової групи є UDP-глюкуронова кислота, а продуктом перенесення поряд із кон’югатом — UDP. Цитозольні сульфотрансферази використовують PAPS як донор сульфатної групи з утворенням PAP. Ці реакції в кишківнику та печінці змінюють розподіл, розчинність і виведення ресвератролу. Концентрацію вільної молекули не можна додавати до концентрацій усіх кон’югатів, а потім порівнювати з дозою, доданою до клітинного середовища.
Кишкова мікробіота також змінює молекулу, зокрема відновлює подвійний зв’язок з утворенням дигідроресвератролу. Це не те саме, що утворення димерів, наприклад вініферинів, і не підстава вважати всі метаболіти взаємозамінними. Можливе зворотне вивільнення ресвератролу з окремих кон’югатів досліджують у певних тканинних і клітинних моделях. Звідси поки не випливає доведена адресна доставка діючої молекули до запаленого суглоба чи мозку людини.
Нова лікарська форма може підвищити експозицію, але це лише фармакокінетичний результат. Для висновку про лікування потрібно окремо показати клінічний ефект і переносимість саме цієї форми. Перенесення даних про наночастинки, поєднання з піперином або парентеральне введення у тварин на звичайну пероральну добавку некоректне. Між кількістю речовини в капсулі, концентрацією в крові та концентрацією біля внутрішньоклітинної мішені залишаються додаткові етапи.
Тваринні моделі: важливий і протилежний результат
В окремих моделях коліту й артриту ресвератрол зменшував запальні зміни та пов’язані сигнальні маркери. Однак хімічно спричинене ушкодження кишківника, колаген-індукований артрит і людські хронічні хвороби мають різні причини та структуру імунної відповіді. Профілактичне введення перед експериментальним ушкодженням особливо погано відповідає на питання про лікування вже наявної хвороби. Початок, спосіб введення та критерій результату треба зберігати при інтерпретації кожного досліду.
Принципово важлива робота Sato і співавторів: ресвератрол погіршував як автоімунну, так і вірусну мишачу модель захворювання, що нагадує окремі аспекти розсіяного склерозу. В експериментальному автоімунному енцефаломієліті введення в різні фази не забезпечило очікуваного захисту; погіршення було особливо помітним за впливу у фазу індукції. Цей результат не можна приховувати за добіркою позитивних моделей. Він також не доводить шкоди кожної дози для кожної людини, але спростовує універсальну формулу «імуномодуляція завжди зменшує автоімунітет».
Зіставлення цих даних із механізмами RORγt і FOXP3 показує, чому один сигнал не прогнозує весь організм. Молекула може змінювати кілька імунних і метаболічних процесів одночасно. Корисний ефект в одній тканині не виключає несприятливого в іншій. Перехід до клініки потребує підтвердження в конкретному захворюванні, а не об’єднання всіх моделей словом «запалення».
Клінічні дослідження: ранні сигнали та негативні випробування
У дослідженні Khojah і співавторів брали участь 100 пацієнтів із ревматоїдним артритом, зокрема 68 жінок і 32 чоловіки. Їх розподілили на дві групи по 50: одна отримувала 1 г ресвератролу в капсулах щодня додатково до звичайного лікування протягом трьох місяців, інша продовжувала звичайне лікування. Автори повідомили зменшення DAS28, числа болючих і припухлих суглобів та низки запальних маркерів у групі добавки. Однак опис контролю не містить зіставного плацебо, а опублікований реферат не дає числової міжгрупової оцінки ефекту з довірчим інтервалом. Це обмежує оцінку величини користі та ризику систематичного зміщення.
Результат є клінічним сигналом, але не доводить впливу на структурне ушкодження суглобів, стійкість після припинення приймання чи безпеки тривалого поєднання з різними протиревматичними схемами. Він також не показує, що поліпшення спричинило саме деацетилювання STAT3 або зміна Treg/Th17. Для підтвердження потрібні незалежні контрольовані дослідження та клінічно важливі результати.
У подвійно сліпому плацебо-контрольованому пілотному дослідженні Samsami-Kor і співавторів 50 пацієнтів з активним виразковим колітом легкої або помірної тяжкості отримували 500 мг ресвератролу щодня чи плацебо шість тижнів. Оцінювали запальні показники, активність NF-κB у мононуклеарних клітинах крові та якість життя; автори повідомили сприятливі зміни. Короткий термін і пілотний масштаб не дозволяють прирівняти це до доведеного тривалого контролю хвороби або ендоскопічного загоєння. Різниця між зміною всередині групи та порівнянням груп також важлива.
У багатоцентровому дослідженні Erol Doğan і співавторів 2024 року порівнювали середземноморську дієту, таку саму дієту з куркуміном і з ресвератролом 500 мг на добу протягом восьми тижнів у дорослих із виразковим колітом легкої чи помірної активності на тлі медикаментозного лікування. Методи й таблиці описують 48 учасників і по 16 на групу, тоді як початок розділу результатів вказує 46; є й розбіжність щодо числа жінок. Ці неузгодженості не можна виправляти припущенням. Головний результат для цього питання — переконливої додаткової переваги ресвератролу понад дієту за дослідженими показниками не виявили. Одночасне поліпшення кількох груп не доводить специфічного ефекту добавки.
Негативне випробування ARTHROL особливо корисне як перевірка переходу від механізму до симптомів. У трьох французьких центрах 142 дорослих із болісним остеоартритом коліна рандомізували по 71 у групу нової запатентованої форми ресвератролу та зіставного плацебо. Подвійно сліпе дослідження тривало шість місяців: 40 мг двічі на добу перший тиждень, далі 20 мг двічі на добу. Первинним результатом була зміна болю за шкалою 0–100 через три місяці. Міжгрупова різниця становила −0,6 пункту з 95%-м довірчим інтервалом від −8,0 до 6,9; p = 0,88. Переваги щодо болю не показано.
Автори ARTHROL вказали недостатню статистичну потужність і надто оптимістичну очікувану величину ефекту при плануванні. Тому дослідження не виключає будь-якого малого ефекту за будь-яких умов. Але воно не підтримує обіцянки помітного знеболення цією схемою попри експериментальну протизапальну правдоподібність. Остеоартрит також не є прямим тестом ефективності при ревматоїдному артриті: це різні хвороби. Його значення тут — показати, що поліпшена форма й переконливий лабораторний механізм не гарантують клінічної переваги.
Як оцінювати обіцянки та безпеку
Дози досліджень описують експериментальні схеми, а не встановлюють універсальну рекомендацію. Наявні дані не дозволяють обрати одну дозу для «пригнічення STAT3», «підвищення Treg» або профілактики всіх автоімунних хвороб. Для цього потрібні відомості про цільову експозицію, конкретне захворювання, форму, взаємодії та клінічні результати. Самостійно замінювати призначене лікування добавкою на підставі клітинних механізмів необґрунтовано.
У дослідженні повторних доз Brown і співавторів 40 здорових добровольців приймали 0,5, 1, 2,5 або 5 г щодня 29 днів. За 2,5 і 5 г спостерігали легкі чи помірні шлунково-кишкові симптоми; коротке спостереження здорових людей не визначає безпеки тривалого лікування хронічної хвороби. У роботі Chow і співавторів 42 добровольці приймали 1 г на добу чотири тижні. Після втручання змінювалися фенотипові показники активності CYP3A4, CYP2D6, CYP2C9 і CYP1A2, виміряні за метаболізмом пробних препаратів. Це людські дані щодо можливих взаємодій, хоча вони не дозволяють обчислити ризик кожного лікарського поєднання.
Для переносимості важливі шлунково-кишкові симптоми, супутні ліки та стан печінки й нирок. Можливі взаємодії з ферментами метаболізму й функцією тромбоцитів потребують обережної інтерпретації: лабораторне спостереження не визначає автоматично величини ризику в людини, але брак інформації теж не підтверджує безпеки поєднання. Особливо важливо обговорювати добавку з лікарем за приймання антикоагулянтів, імуномодуляторів та інших препаратів із вимогливим контролем експозиції. Дані однієї короткої роботи не поширюються на вагітність, дитячий вік і тривале приймання високих доз.
Виноград та інші харчові джерела містять ресвератрол у складній харчовій матриці. Їхня дія не еквівалентна капсулі з дослідницькою дозою. Алкоголь не є раціональним способом відтворити експериментальну експозицію. Для питань про кишкове середовище та харчування корисний окремий розбір харчових волокон, пребіотиків і безпеки для кишківника: вплив харчування не зводиться до однієї молекули та одного цитокіну.
Ресвератрол залишається корисним інструментом дослідження імунної сигналізації. Найнадійніше пояснення зберігає відмінності між кіназою та транскрипційним фактором, вільною сполукою й метаболітами, клітинним маркером і результатом хвороби. Воно також враховує, що SIRT1 здатний підтримувати різні, іноді протилежні імунні програми. Ці відмінності дозволяють бачити перспективні гіпотези, не перетворюючи їх на передчасні обіцянки лікування.
Часті питання
Чи є ресвератрол доведеним селективним інгібітором STAT3?
Ні. Зниження фосфорилювання в клітинних моделях допускає кілька механізмів і саме собою не доводить прямого зв’язування із SH2-доменом.
Чи завжди активація SIRT1 пригнічує Th17?
Ні. Роботи про RORγt і STAT3 показують різні напрями в різних системах; результат залежить від субстрату, стану клітини та втручання.
Чи доводить добре всмоктування достатню концентрацію вільного ресвератролу?
Ні. Швидке утворення кон’югатів означає, що всмоктування та доступність незміненої молекули — різні показники.
Чи є універсальна лікувальна доза?
Ні. Описані дози стосуються конкретних експериментальних схем; дані не встановлюють дозу для всіх автоімунних хвороб і не обґрунтовують заміну призначеного лікування.
Джерела
- Schöppner A, Kindl H.. Purification and properties of a stilbene synthase from induced cell suspension cultures of peanut. J Biol Chem. 1984.
- Austin MB, Bowman ME, Ferrer JL et al. An aldol switch discovered in stilbene synthases mediates cyclization specificity of type III polyketide synthases. Chem Biol. 2004.
- Pacholec M, Bleasdale JE, Chrunyk B et al. SRT1720, SRT2183, SRT1460, and resveratrol are not direct activators of SIRT1. J Biol Chem. 2010.
- Hubbard BP, Gomes AP, Dai H et al. Evidence for a common mechanism of SIRT1 regulation by allosteric activators. Science. 2013.
- Lakshminarasimhan M, Rauh D, Rauh D et al. Sirt1 activation by resveratrol is substrate sequence-selective. Aging (Albany NY). 2013.
- Lim HW, Kang SG, Ryu JK et al. SIRT1 deacetylates RORγt and enhances Th17 cell generation. J Exp Med. 2015.
- van Loosdregt J, Vercoulen Y, Guichelaar T et al. Regulation of Treg functionality by acetylation-mediated Foxp3 protein stabilization. Blood. 2010.
- Limagne E, Thibaudin M, Euvrard R et al. Sirtuin-1 Activation Controls Tumor Growth by Impeding Th17 Differentiation via STAT3 Deacetylation. Cell Rep. 2017.
- Capiralla H, Vingtdeux V, Zhao H et al. Resveratrol mitigates lipopolysaccharide- and Aβ-mediated microglial inflammation by inhibiting the TLR4/NF-κB/STAT signaling cascade. J Neurochem. 2012.
- Park SJ, Ahmad F, Philp A et al. Resveratrol ameliorates aging-related metabolic phenotypes by inhibiting cAMP phosphodiesterases. Cell. 2012.
- Walle T, Hsieh F, DeLegge MH et al. High absorption but very low bioavailability of oral resveratrol in humans. Drug Metab Dispos. 2004.
- Sato F, Martinez NE, Shahid M et al. Resveratrol exacerbates both autoimmune and viral models of multiple sclerosis. Am J Pathol. 2013.
- Khojah HM, Ahmed S, Abdel-Rahman MS et al. Resveratrol as an effective adjuvant therapy in the management of rheumatoid arthritis: a clinical study. Clin Rheumatol. 2018.
- Samsami-Kor M, Daryani NE, Asl PR et al. Anti-Inflammatory Effects of Resveratrol in Patients with Ulcerative Colitis: A Randomized, Double-Blind, Placebo-controlled Pilot Study. Arch Med Res. 2015.
- Erol Doğan Ö, Karaca Çelik KE, Baş M et al. Effects of Mediterranean Diet, Curcumin, and Resveratrol on Mild-to-Moderate Active Ulcerative Colitis: A Multicenter Randomized Clinical Trial. Nutrients. 2024.
- Nguyen C, Coudeyre E, Boutron I et al. Oral resveratrol in adults with knee osteoarthritis: A randomized placebo-controlled trial (ARTHROL). PLoS Med. 2024.
- Brown VA, Patel KR, Viskaduraki M et al. Repeat dose study of the cancer chemopreventive agent resveratrol in healthy volunteers: safety, pharmacokinetics, and effect on the insulin-like growth factor axis. Cancer Res. 2010.
- Chow HH, Garland LL, Hsu CH et al. Resveratrol modulates drug- and carcinogen-metabolizing enzymes in a healthy volunteer study. Cancer Prev Res (Phila). 2010.