Відтік холестерину: ЛПВЩ, ABCA1 та межі біомаркера CEC
Біогенез і субфракції ЛПВЩ, ABCA1/ABCG1/SR-BI, клітинні методи, запальні зміни та печінково-кишковий транспорт. Когорти й випробування відділяють функцію від доказаної клінічної користі.
Біогенез і субфракції ЛПВЩ, ABCA1/ABCG1/SR-BI, клітинні методи, запальні зміни та печінково-кишковий транспорт. Когорти й випробування відділяють функцію від доказаної клінічної користі.
Здатність до відтоку холестерину, cholesterol efflux capacity — CEC, показує, наскільки визначений препарат позаклітинних акцепторів виводить мічений холестерин із заданої клітинної системи. Це важлива складова біології ліпопротеїнів високої щільності, яку концентрація холестерину не відображає сама по собі. Холестерин ЛПВЩ вимірює вантаж; концентрація частинок — їхню кількість; ApoA-I — основний білковий компонент. Ці величини не взаємозамінні. Сама CEC також не вимірює всіх захисних функцій, які приписують ЛПВЩ.
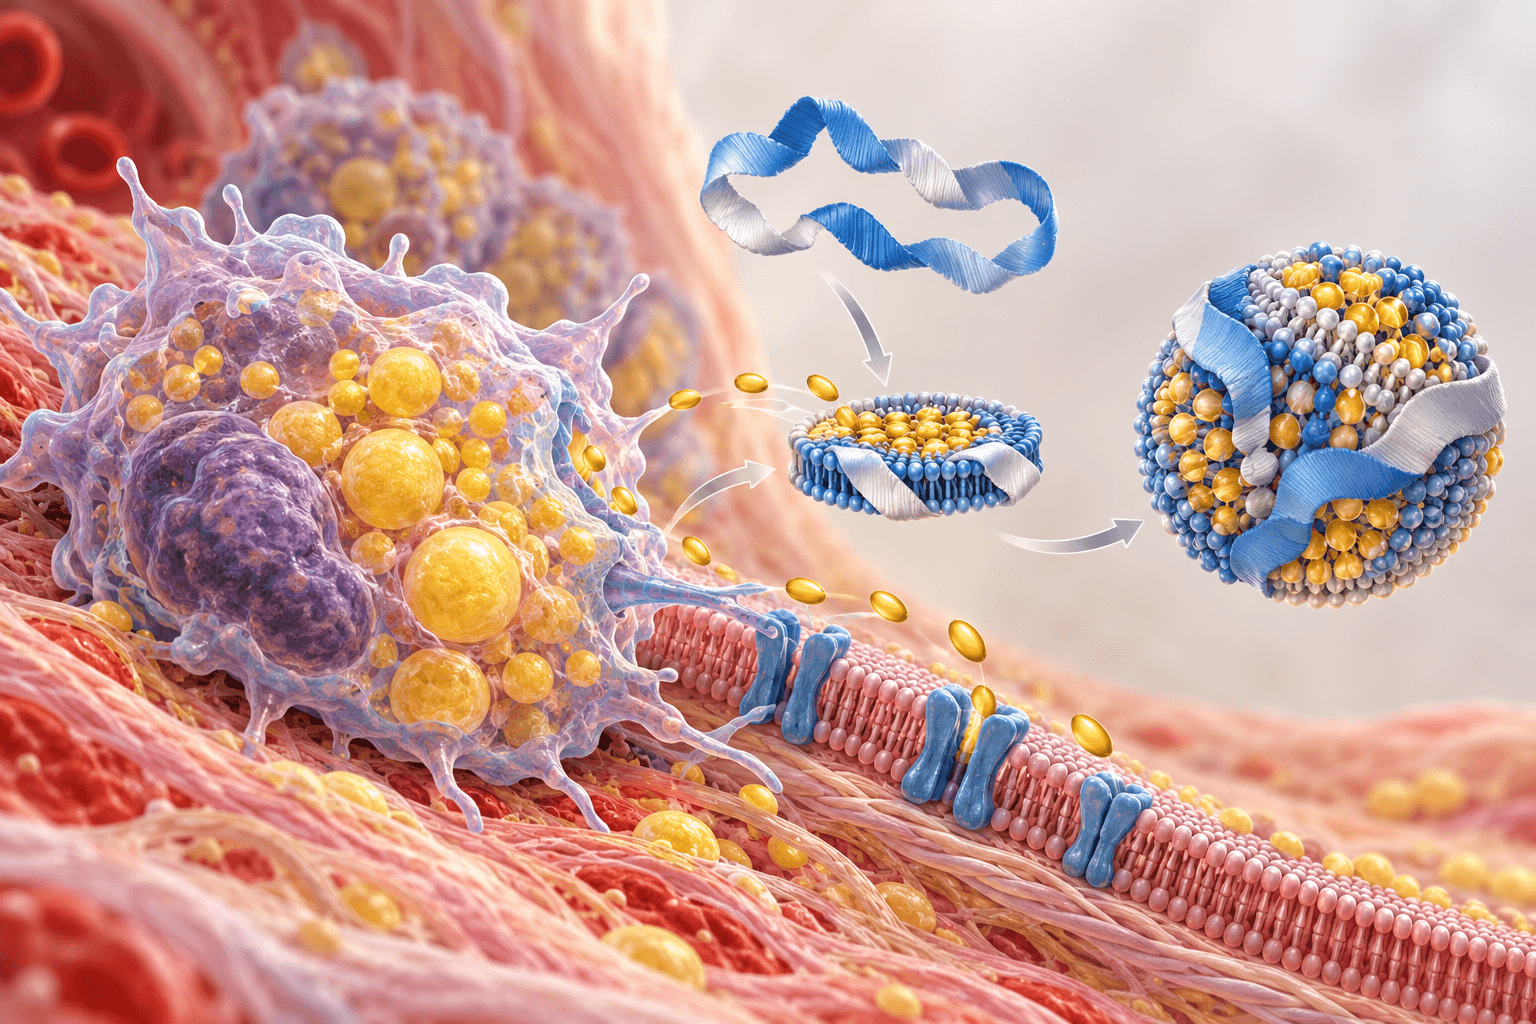
Макрофаги артеріального ураження постійно отримують холестерин із затриманих ApoB-вмісних ліпопротеїнів. Його необхідно запасати, мобілізувати або експортувати. ЛПВЩ і бідні на ліпіди аполіпопротеїни приймають вільний холестерин, потенційно обмежуючи утворення пінистих клітин. Проте лабораторний відтік — лише крок мережі: перенесення між ліпопротеїнами, захоплення печінкою, жовчна секреція, кишкове всмоктування та виведення з калом визначають, чи холестерин зрештою залишає організм. Висока CEC ex vivo не доводить очищення артерій конкретної людини з визначеною швидкістю.
Спостережні дослідження пов'язували вищу CEC із нижчим коронарним або серцево-судинним ризиком після поправки на холестерин ЛПВЩ. Це підтримує вивчення функції, але не підтверджує універсальний діагностичний поріг і не доводить профілактику подій після підвищення CEC препаратом чи добавкою. Деякі подальші когорти не виявили незалежного зв'язку. Негативний первинний результат великого випробування інфузій ApoA-I AEGIS-II особливо важливий для перетворення привабливих механізмів на клінічні твердження.
Зрілий людський ApoA-I має 243 амінокислотні залишки та масу приблизно 28 кДа; його кодує APOA1 у кластері генів аполіпопротеїнів хромосоми 11. Він становить значну частину білкового каркаса ЛПВЩ. Повторювані амфіпатичні альфа-спіралі спрямовують гідрофобні бічні ланцюги до ліпідів, а полярні й заряджені — до води. N-кінцевий спіральний пучок і гнучка C-кінцева ділянка перебудовуються при зв'язуванні з фосфоліпідною поверхнею. Частка спіральної структури залежить від ліпідування й середовища; фіксований відсоток не описує всі форми.
Безліпідний і бідний на ліпіди ApoA-I — пов'язані, але різні стани. C-кінцева ділянка допомагає початковому контакту з мембраною, а відкриття пучка дозволяє ширше зв'язування. У реконструйованих дископодібних ЛПВЩ дві або більше молекул ApoA-I можуть оточувати фрагмент фосфоліпідного бішару як пояс. Сферичні плазмові частинки потребують іншої тривимірної організації довкола моношару й нейтрального ядра. Зшивання та мас-спектрометрія підтримують адаптивні каркасні структури, а не єдину жорстку форму всіх ЛПВЩ (Huang та співавт., 2011).
Печінка та кишечник секретують ApoA-I. ABCA1-залежне ліпідування утворює початкові частинки з фосфоліпідами та вільним холестерином. Спершу дископодібні частинки можуть набувати нейтрального ядра й ставати сферичними. Бідний на ліпіди ApoA-I також відновлюється при ремоделюванні наявних ЛПВЩ, тому біогенез є циклом, а не односпрямованим конвеєром.
Пре-бета й альфа означають електрофоретичну рухливість, тоді як ЛПВЩ2 і ЛПВЩ3 традиційно позначають фракції щільності. Категорії за розміром, щільністю, електрофорезом і ЯМР перетинаються, але не тотожні. Неправильно призначати один діаметр усім пре-бета-частинкам або прирівнювати кожну ЛПВЩ3 до певної альфа-смуги. Незрілий диск — не просто мала зріла сфера.
| Препарат або категорія | Типова організація | Функціональне тлумачення |
|---|---|---|
| Безліпідний або бідний на ліпіди ApoA-I, включно зі значною частиною пре-бета-1 | Білок без ліпідів або з невеликою кількістю | Ефективний акцептор ABCA1-залежного ліпідування; кількість не гарантує збереження функції |
| Незрілі дископодібні ЛПВЩ | Фрагмент фосфоліпідного бішару з ApoA-I | Ранній біогенез; склад і розмір залежать від донорної клітини та ліпідів |
| Фракція ЛПВЩ3 | Відносно малі, щільні, багаті на білок частинки | Часто ефективні для ABCG1-пов'язаного та пасивного відтоку; важливе нормування |
| Фракція ЛПВЩ2 | Більші, багатші на ліпіди частинки | Ремоделювання й вибіркове захоплення печінкою; великий розмір не дорівнює захисту |
Традиційне ультрацентрифугування виділяє ЛПВЩ2 приблизно при 1,063–1,125 г/мл, ЛПВЩ3 — 1,125–1,210 г/мл. Типові діаметри становлять приблизно 8,8–12 та 7,2–8,8 нм, але межі залежать від методу. Кількість молекул ApoA-I змінюється. Активність на міліграм білка, частинку, молекулу ApoA-I або об'єм плазми може давати різне ранжування однакових фракцій. Малі щільні ЛПВЩ3 можуть мати сприятливі фосфоліпіди й високу експериментальну активність; це не робить їхню концентрацію універсальною лікувальною метою (Camont та співавт., 2013).
Лецитин-холестеринацилтрансфераза LCAT — циркулюючий фермент, який утворюється переважно в печінці. ApoA-I та ліпідна поверхня підтримують активність. LCAT переносить ацильну групу з фосфатидилхоліну на гідроксильну групу вільного холестерину, утворюючи лізофосфатидилхолін та естер холестерину:
Фермент формує проміжний ацил-ферментний комплекс; це не просте вивільнення жирної кислоти, що дифундує та спонтанно естерифікує холестерин. Естер гідрофобніший і переходить у ядро, підтримуючи перехід диска у сферу. Це допомагає підтримувати активність холестерину поверхні, але не обнуляє її вільний холестерин і не гарантує необмеженого відтоку. Взаємодіють LCAT, акцептори й подальший кліренс. Тяжкий дефіцит спричиняє виражені порушення, зокрема ліпопротеїн X, зміни рогівки та хворобу нирок; вони не встановлюють простої лінійної коронарної користі від активності LCAT.
CETP, білок перенесення естерів холестерину, переносить нейтральні ліпіди між ЛПВЩ і ApoB-частинками, зокрема ЛПДНЩ, ремнантами й ЛПНЩ. Обмін естерів на тригліцериди — корисна спрощена схема, але він не обов'язково строго еквімолярний. Запропоновані човниковий і містковий механізми не слід зводити до обов'язкового димерного тунелю. Перенесення на ApoB-частинки може доставляти холестерин ЛПВЩ до печінки через рецепторне захоплення цих частинок.
Збагачені тригліцеридами ЛПВЩ стають субстратом печінкової ліпази, яка гідролізує тригліцериди й фосфоліпіди, часто формуючи менші частинки та вивільняючи бідний на ліпіди ApoA-I. Ендотеліальна ліпаза переважно гідролізує фосфоліпіди. PLTP переносить поверхневі ліпіди, які вивільняються при ліполізі багатих на тригліцериди ліпопротеїнів, і бере участь у злитті, збільшенні та вивільненні ApoA-I. Змінюється пул акцепторів наступного ABCA1-ліпідування. Ремоделювання полегшує транспорт або спричиняє несприятливі зміни у певному метаболічному контексті; CETP і PLTP не є незмінно шкідливими чи корисними.
ЛПВЩ переносять неоднорідний протеом і ліпідом. Перелік білків залежить від виділення, чутливості й контролю забруднення; це не означає одночасного перенесення десятків білків кожною частинкою. ApoA-II, ApoE, ApoM, PON1 і білки гострої фази характеризують підмножини або стани.
Параоксоназа-1 PON1 — кальцій-залежний фермент ЛПВЩ із лактоназною, арилестеразною й параоксоназною активністю. Назва відображає лабораторний субстрат, а не повну фізіологічну функцію. ApoA-I й ліпідне середовище підтримують активність. Експерименти підтверджують антиоксидантні ефекти, але недостатньо підстав вважати PON1 універсальною гідролазою всіх ліпідних гідропероксидів або одним штучним субстратом вимірювати всю антиоксидантну функцію (Mackness і Mackness, 2015).
ApoM — ліпокалін, що зв'язує сфінгозин-1-фосфат S1P, сигнальний сфінголіпід. S1P у складі ЛПВЩ активує ендотеліальні рецептори, підтримує адгезійні контакти й впливає на Akt/eNOS. Значну частину плазмового S1P переносять ЛПВЩ, іншу — альбумін. Залежні від носія переміщення рецепторів і сигнали пояснюють різні ефекти двох пулів. ApoE бере участь у рецепторних взаємодіях і кліренсі, ApoA-II змінює структуру й ремоделювання. Ці важливі функції не повністю відображає аналіз відтоку (Christoffersen та співавт., 2011).
Пінисті клітини містять вільний холестерин і естери у ліпідних краплях. Гідроліз естерів має зробити вільний холестерин доступним перед виходом. Експорт залежить від лізосомної обробки, внутрішнього транспорту, доступності мембрани й акцепторів. Перший крок зворотного транспорту важливий, але універсально лімітуючим для всього організму його називати надмірно: мережа має кілька можливих обмежень.
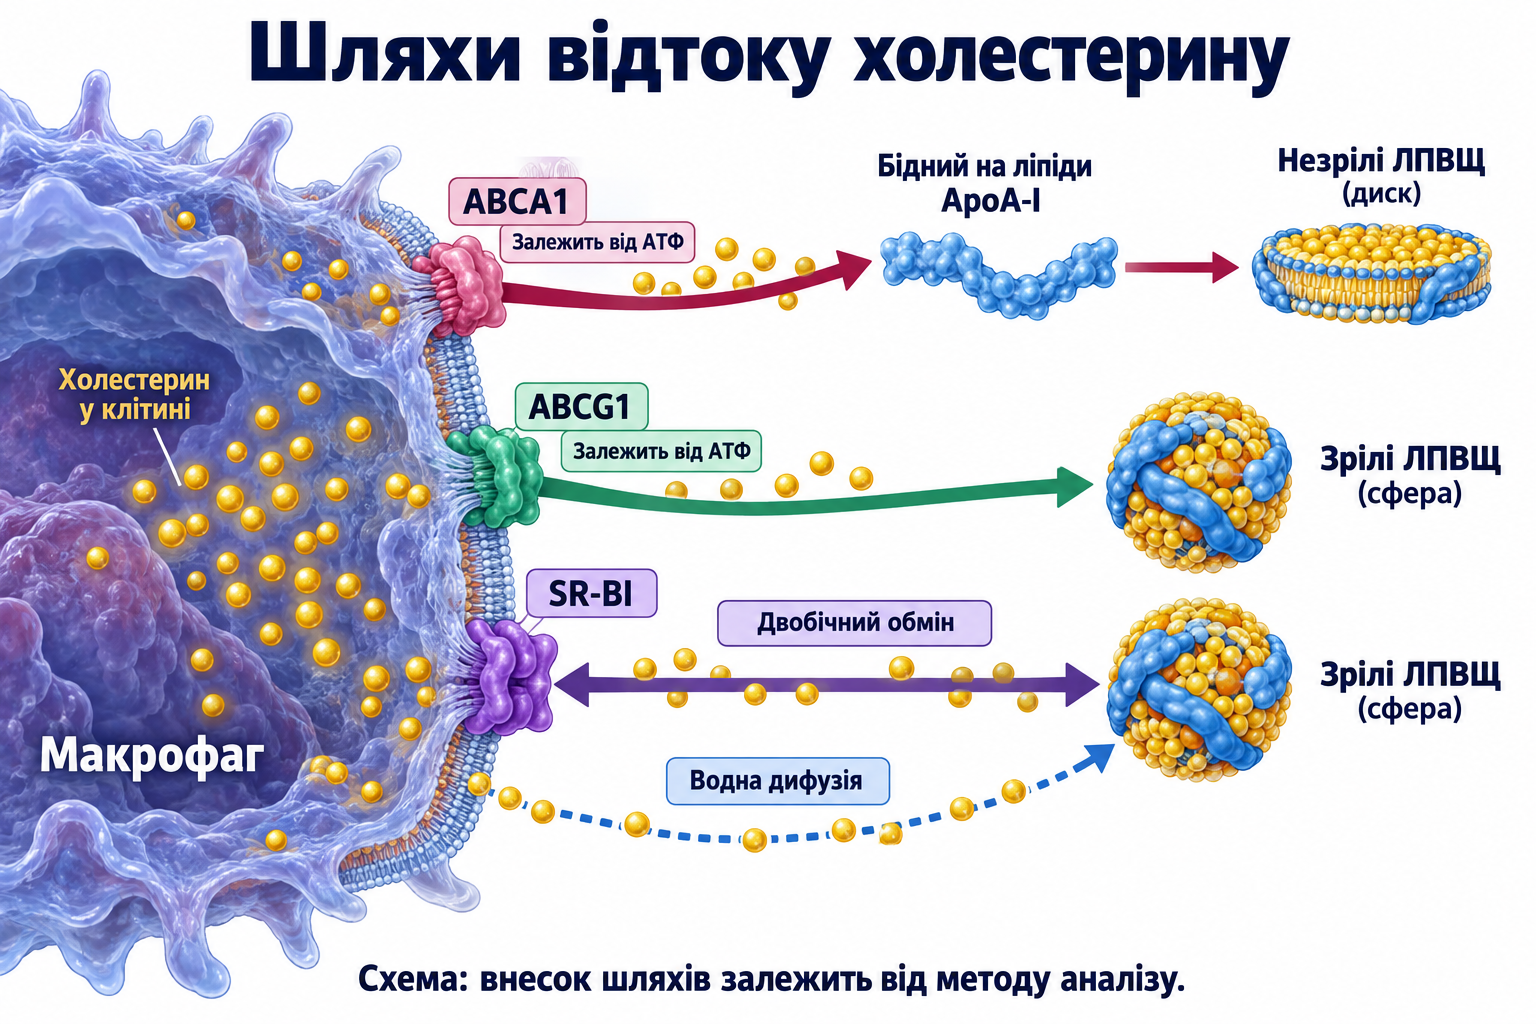
ABCA1 — великий повний ABC-транспортер із двома трансмембранними ділянками, двома нуклеотид-зв'язувальними та розвиненими позаклітинними доменами. Він поєднує АТФ-залежні зміни конформації з експортом фосфоліпідів і біогенезом ЛПВЩ. Особливо ефективний партнер — безліпідний або бідний на ліпіди ApoA-I. У відповідних системах беруть участь інші аполіпопротеїни, включно з ApoE. Зрілі ЛПВЩ зазвичай менш ефективні, але «виключно» надто категорично: частинки ремоделюються або мають обмінний ApoA-I.
ABCA1-залежна перебудова створює доступне мембранне середовище та/або експортований ліпід, який ApoA-I солюбілізує у незрілі частинки. Його зв'язування також стабілізує ABCA1 проти деградації. Класична модель кривизни мембрани й мікросолюбілізації описує контакт амфіпатичних спіралей із дефектами упаковки. Це механістична модель, не буквальне доведення зіскрібання повністю визначеного випинання у кожній клітині (Phillips, 2014).
Біалельні варіанти ABCA1 із втратою функції спричиняють хворобу Танжера: дуже низькі ЛПВЩ, тканинне накопичення холестерину, характерні помаранчеві мигдалики й іноді периферичну нейропатію. Серцево-судинні прояви різні; тяжкий ранній атеросклероз не неминучий у кожного. Хвороба демонструє значення ABCA1, не зводячи весь фенотип до холестерину ЛПВЩ.
Кріо-ЕМ-структура Qian та співавт. 2017 року, включно з PDB 5XJY, показала незвично розвинену позаклітинну архітектуру. Робота опублікована у Cell, DOI 10.1016/j.cell.2017.05.020. Структурні знімки обмежують гіпотези, але не фільмують усіх кроків експорту та вивільнення ApoA-I.
Типова схема ABC-транспортера передбачає внутрішній доступ до субстрату, АТФ-залежне змикання нуклеотидних доменів і зовнішню доставку. Некритичне перенесення всього циклу на ABCA1 проблематичне. Segrest та співавт. (2022) поєднали моделювання й мутагенез і запропонували вилучення фосфоліпіду із зовнішнього листка через вхід і кільцеву ділянку в позаклітинний гідрофобний тунель. Це відрізняється від простої флопази з внутрішнього листка назовні. Залишаються питання поєднання експорту фосфоліпідів, перенесення холестерину та складання незрілих частинок. АТФ-залежність і значення позаклітинних доменів підтверджені; точний вхід і всі переходи потребують збереження експериментального масштабу. Мутації змінюють транспорт, переміщення чи стабільність, але не кожна точкова мутація цілком усуває функцію.
ABCG1 — половинний ABC-транспортер із димерною організацією. Він перерозподіляє стерольні пули й робить холестерин доступнішим для ліпідних акцепторів, включно зі зрілими ЛПВЩ. Він не створює частинки із безліпідного ApoA-I як ABCA1. Задіяні плазматична мембрана й внутрішні компартменти. Експериментальна протидія окремим оксистеролам не означає однакової обробки всіх стеролів у кожній тканині.
ABCA1 і ABCG1 співпрацюють: перший створює незрілі акцептори, другий сприяє дальшому експорту до ліпідованих частинок. Це не обов'язковий конвеєр ABCA1→LCAT→ABCG1 для кожної частинки. Внесок залежить від виду, диференціювання, холестеринової навантаження та концентрації акцептора.
SR-BI, кодований SCARB1, зв'язує ЛПВЩ і забезпечує вибіркове захоплення ліпідів та двобічний обмін вільного холестерину. Він не гідролізує АТФ. Чистий рух визначають хімічна активність стеролу, організація мембрани й склад частинок, а не лише загальна концентрація. Неполярні маршрути — моделі; точно 10-нм універсальний відкритий тунель не є встановленою анатомією людського SR-BI.
Особливо важлива печінкова функція: вибірковий захват доставляє естери в гепатоцит без обов'язкової деградації всієї частинки. Макрофагальний SR-BI сприяє відтоку за відповідних умов, але тваринні експерименти не роблять його взаємозамінним з ABCA1 чи ABCG1 у транспорті від макрофага до калу.
Водна дифузія дозволяє окремим молекулам десорбуватися, перетнути водну межу та перейти до акцептора. Низька розчинність робить десорбцію важливою; упаковка фосфоліпідів і активність стеролу змінюють швидкість. Корисний концептуальний баланс:
Праворуч — вихідний і вхідний масові потоки за заданих умов. Мітка виходить навіть при одночасному вході, через який чисте видалення маси мале. Водна дифузія може мати значний внесок; універсальна межа 10–15% або одна стала напівдесорбції для всіх систем не виправдані.
LXR-альфа й LXR-бета, кодовані NR1H3 і NR1H2, реагують на окремі оксистероли та споріднені метаболіти. Разом із RXR регулюють елементи відповіді генів ABCA1, ABCG1, APOE та інших. CYP27A1-залежне окиснення стеролів може бути частиною чутливості. Активація ядерних рецепторів змінює транскрипцію, а обіг і переміщення білків додають рівні контролю.
Ця відповідь зменшує накопичення й змінює запальні сигнали макрофагів. Проте миттєве перетворення всього надлишку на один оксистерол чи фіксована п'яти-десятикратна індукція не універсальні. LXR впливає і на печінковий ліпогенез: сприятлива для артеріального макрофага програма може бути небажаною, коли підвищує тригліцериди у печінці.
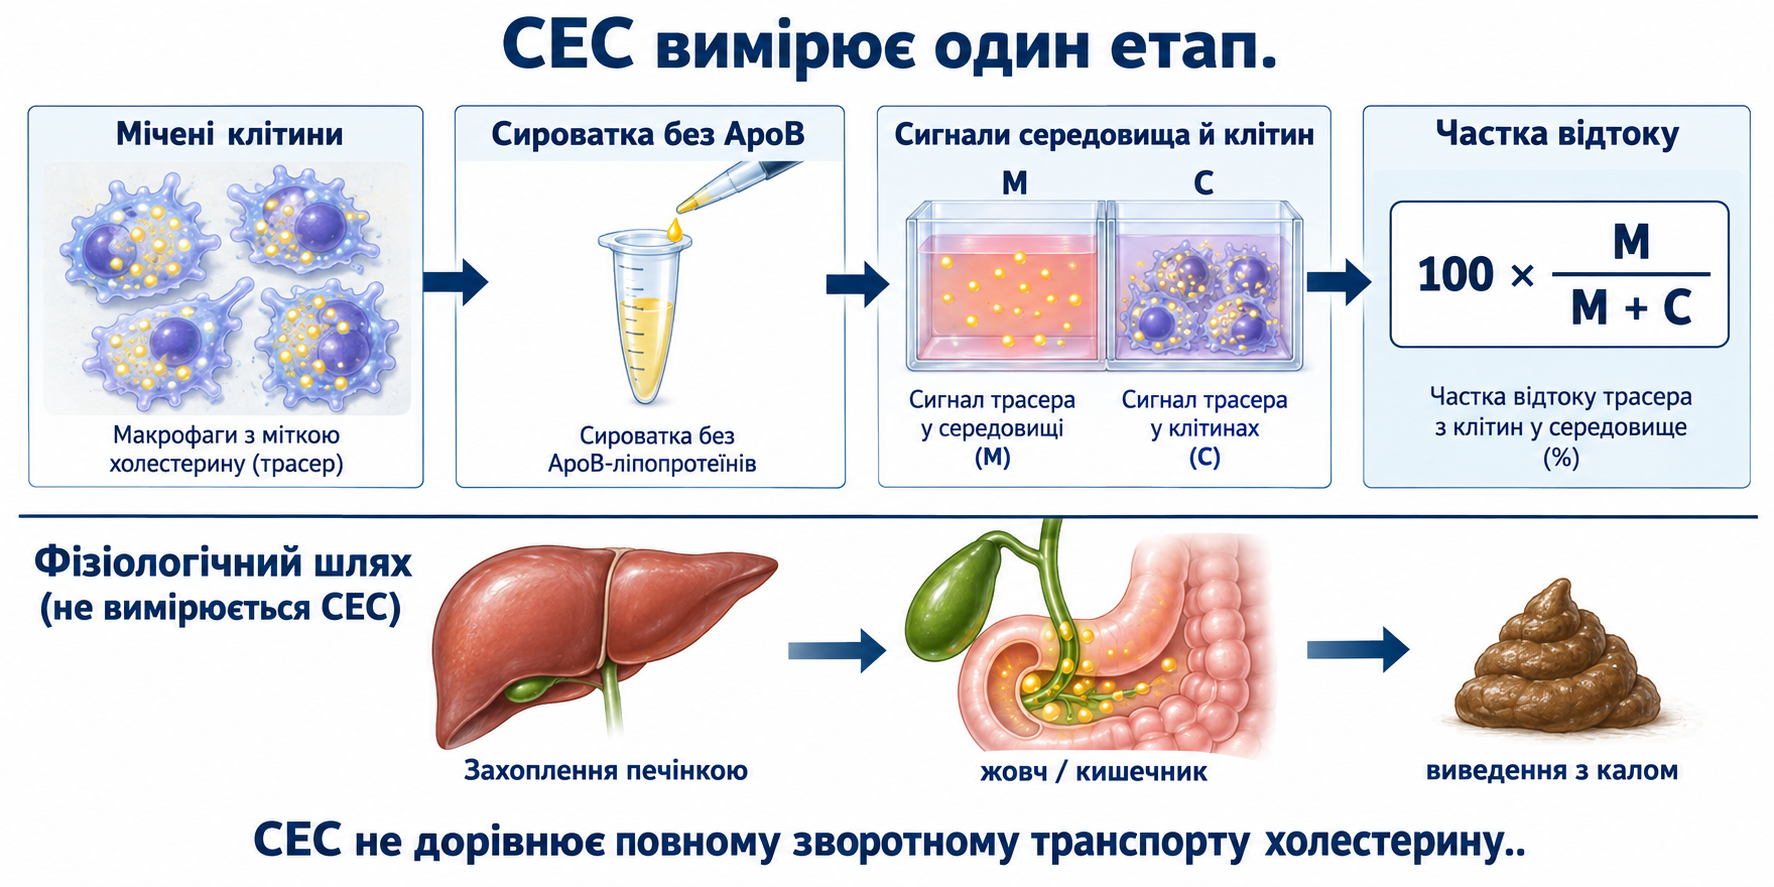
Поширені дослідницькі методи навантажують J774, диференційовані THP-1 або інші донорні системи радіоміченим холестерином чи флуоресцентним стерольним зондом. Частина протоколів інгібує клітинну естерифікацію ACAT/SOAT, щоб виділити вільний пул, і стимулює cAMP чи іншим способом підвищує ABCA1. Це вибір методу, а не єдина універсально стандартизована процедура. Нестимульовані J774 зберігають активність і не обов'язково є ABCA1-нуль-контролями.
Акцептором часто є сироватка після вилучення ApoB-ліпопротеїнів. Видалення ЛПНЩ, ЛПДНЩ і споріднених частинок допомагає зосередитися на препараті з ЛПВЩ, але залишає альбумін, обмінні аполіпопротеїни та інші чинники. Результат не є виключно внутрішньою якістю ЛПВЩ. CEC із фіксованим об'ємом сироватки поєднує кількість, склад і функцію акцепторів. Аналіз виділених ЛПВЩ при однаковому білку відповідає на інше питання; ультрацентрифугування чи осадження можуть змінити препарат.
Клітини відмивають та інкубують із визначеною концентрацією акцептора певний час. Часто це кілька відсотків сироватки без ApoB і кілька годин, але концентрацію, тривалість, урівноваження мітки й температуру потрібно повідомляти, а не запозичувати як загальні умови. Важливі життєздатність і витік: високий вихід мітки із клітин, що гинуть, не означає бажаного експорту.
Проста формула часткового відтоку мітки:
де M — відновлений сигнал у середовищі, C — клітинно-асоційований сигнал із належним урахуванням приладового фону й відновлення. E — відсоток за зазначену інкубацію, не автоматично відсоток на годину. Часто віднімають вихід без акцептора:
Індекси означають скоригований результат, умову з акцептором і без нього. Нормований на контроль планшета індекс:
Скоригований відтік зразка ділять на результат визначеного об'єднаного контролю. Індекс 1 означає рівність цьому контролю за цього аналізу, а не 100% експорту, популяційну медіану чи універсальну норму. Відтік зразка 8% і контролю 10% дає 0,8; арифметика не діагностує дисфункціональних ЛПВЩ.
BODIPY-холестерин дозволяє чутливі масштабовані флуоресцентні вимірювання й може сильніше відображати ABCA1. Sankaranarayanan та співавт. (2011) порівняли його з тритієвим холестерином і показали корисні характеристики. Проте флуорофор змінює властивості стеролу й вагу шляхів. Значуща кореляція не означає числової взаємозамінності чи кореляцій понад 0,85–0,90 для всіх препаратів. Радіометричні та флуоресцентні аналізи потребують власної перевірки, діапазону, контролів і референсних матеріалів.
Різницю між стимульованими й нестимульованими донорами використовують для оцінки ABCA1-залежного компонента:
Це операційна оцінка через порівняння двох умов. Індукція змінює кілька процесів, а без стимуляції може залишатися ABCA1. Трансфіковані системи, генетична втрата функції та інгібітори доповнюють інформацію, кожен зі своїми межами. Загальна CEC не обов'язково дорівнює сумі чотирьох незалежних компонентів: клітини мало експресують певний шлях, а шляхи ділять доступні ліпідні пули.
ABCA1-відтік залежить від бідних на ліпіди акцепторів і цілісності ApoA-I. ABCG1-аналізи залежать від складу ліпідованих акцепторів; SR-BI — від двобічного обміну. Для порівняння хвороб та втручань потрібні відповідні біологічні системи й нормування. Висновок одного шляху не поширюється на всі функції.
Джерела відмінностей — пасаж і диференціація, сила індукції, питома активність мітки, підготовка акцепторів, залишкові ApoB-частинки, сироватка чи плазма, інкубація, зберігання та заморожування–відтавання. Осадження поліетиленгліколем зберігає поза-ЛПВЩ компоненти або змінює препарат; неповне вилучення — не єдина аналітична проблема. Типовий J774-аналіз не потребує обов'язкової трансфекції людським рецептором.
Контрольні пули, технічні повтори, засліплене розташування, контроль відновлення та внутрішньо- й міжсерійні CV підвищують надійність. Низький CV лабораторії не стає міжнародною універсальною вимогою. Узгодженість потребує спільних матеріалів і зіставних протоколів, а не слова «нормований». Міжнародно валідованого клінічного порога для всіх CEC-методів не встановлено.
Перерозподіл мітки не тотожний чистому видаленню маси. Ex vivo аналіз акцепторів не вимірює транспортери власних макрофагів пацієнта, мобілізацію артеріальних естерів або печінковий кліренс. Межі є частиною результату, не причиною відмови. CEC цінна для механістичних і трансляційних досліджень із точним визначенням величини.
Khera та співавт. (2011) дослідили CEC у 203 здорових добровольців із вимірюванням товщини інтима–медіа сонної артерії, 442 пацієнтів із підтвердженою ангіографією коронарною хворобою та 351 без такого підтвердження. Обернений зв'язок підтримав вивчення функції, але це не проспективний Dallas і не спостереження за цими групами 9,4 року для нових подій.
Rohatgi та співавт. (2014) виміряли вихідну CEC у 2 924 учасників Dallas Heart Study без серцево-судинної хвороби. За медіану 9,4 року вища CEC відповідала нижчому ризику нових подій. Повністю скориговане HR верхнього до нижнього квартиля — 0,33, 95% ДІ 0,19–0,55. Це на 67% нижча відносна інтенсивність подій, не гарантоване зниження індивідуального ризику на 67% після підвищення біомаркера. Холестерин ЛПВЩ не мав такої ж скоригованої асоціації.
Saleheen та співавт. (2015), The Lancet Diabetes & Endocrinology, охопили 1 745 нових коронарних випадків і 1 749 контролів EPIC-Norfolk. Скориговане OR верхнього до нижнього терциля — 0,64, 95% ДІ 0,51–0,80. CEC корелювала з холестерином ЛПВЩ r=0,40 та ApoA-I r=0,22. Результат сумісний з окремим функціональним виміром, але поправка не гарантує повної біологічної незалежності й не усуває всіх змішувальних чинників.
Kuusisto та співавт. (2022) надали противагу: шість когорт, 14 438 людей і 1 570 нових коронарних подій не показали незалежного зв'язку після поправки з холестерином ЛПВЩ. Популяції, методи та спільні визначальні чинники ускладнюють зіставлення. Докази підтримують контекстний дослідницький біомаркер, а не одностайну клінічну сурогатну валідацію.
| Дослідження | Дизайн і питання | Головне тлумачення |
|---|---|---|
| Khera 2011 | Поперечна оцінка коронарної хвороби й сонних артерій | Асоціація з наявною хворобою, не причинність майбутніх наслідків |
| Rohatgi 2014, Dallas | Вихідна акцепторна CEC та нові серцево-судинні події | HR 0,33 крайніх квартилів; спостережна асоціація |
| Saleheen 2015, EPIC-Norfolk | Вкладений випадок–контроль нової хвороби | OR 0,64 крайніх терцилів; метод і популяція важливі |
| Kuusisto 2022 | Когорти й генетичні аналізи | Незалежний зв'язок відтворювався непослідовно |
| Gibson 2024, AEGIS-II | Рандомізована інфузія ApoA-I після інфаркту | Первинну комбіновану точку за 90 днів значуще не знижено |
Для користі біомаркера недостатньо асоціації. Рутинне застосування потребує відтворюваності, додаткової клінічної інформації, каліброваних рішень і доказу користі дій за результатом. CEC не замінює загальну оцінку ризику. Різниця кількості атерогенних ApoB-частинок і холестерину ЛПНЩ як вантажу показує, чому величини мають власний сенс: добра функція ЛПВЩ не скасовує атерогенного впливу.
Історична обернена асоціація мотивувала лікування, що підвищує ЛПВЩ, але не доводила причинної мети. Voight та співавт. (2012) генетичними підходами, включно з HDL-підвищувальним LIPG-варіантом, поставили просту модель під сумнів. Менделівська рандомізація має інструментальні й плейотропні обмеження; вона не доводить непотрібності кожної функції.
ILLUMINATE: торцетрапіб значно підвищив холестерин ЛПВЩ, але збільшив події й смертність. Ефекти тиску, альдостерону й електролітів відповідали істотній позацільовій токсичності (Barter та співавт., 2007). Дальцетрапіб dal-OUTCOMES не знизив подій значуще (Schwartz та співавт., 2012). Евацетрапіб ACCELERATE змінив ліпіди без користі первинної точки (Lincoff та співавт., 2017). Додавання ніацину до сучасних статинів у AIM-HIGH і HPS2-THRIVE не підтвердило очікуваних наслідків і мало побічні ефекти.
Це не доказ неминучого перетворення всіх ЛПВЩ при CETP-інгібуванні на інертні переповнені частинки. Інгібітори здатні підвищувати вимірюваний відтік і знижувати ApoB-пов'язану ліпідну експозицію. REVEAL: анацетрапіб дав 10,8% проти 11,8% великих коронарних подій за медіану 4,1 року, відношення частот 0,91, 95% ДІ 0,85–0,97. Знижувався і холестерин поза ЛПВЩ, тож користь не приписується лише HDL-підвищенню. Випробування відділяють концентрацію від доказаної користі конкретного механізму, не підтримуючи універсальний «параліч» частинок.
Мієлопероксидаза MPO використовує перекис водню й хлорид для гіпохлоритної кислоти та інших окисників залежно від субстрату. ApoA-I — мішень у бляшці й моделях окиснення (Zheng та співавт., 2004). Хлортирозин маркує хлорувальну хімію, але не повністю пояснює втрату функції.
Tyr192 — помітний ділянка хлорування. Окиснення метіоніну й триптофану теж змінює активність. Наслідок залежить від залишку, ступеня, ліпідування й точки. Універсальне падіння відтоку на 75–85% тільки через Tyr192 не виправдане. Окиснення Met148 особливо важливе для активації LCAT: Shao та співавт. (2008) відновлювали активність при зворотному перетворенні окисненого метіоніну у своїй системі. Не слід змішувати це зі зв'язуванням ABCA1 чи вважати доказом ремонту ApoA-I у людській бляшці пероральним антиоксидантом.
Ціанат/ізоціанова кислота з хімії сечовини або MPO-пов'язаних реакцій модифікують аміногрупи лізину до карбаміллізину, гомоцитруліну. Висока сечовина й тіоціанатна експозиція при курінні правдоподібно посилюють реакцію. Змінюються заряд та взаємодії, але немає потреби вигадувати універсальні чотири лізини з повним вимкненням ABCA1.
Holzer та співавт. (2011) знайшли карбамілювання у ЛПВЩ з уражень і показали накопичення холестерину макрофагами через SR-BI-залежний шлях. Це не тотожне обов'язковому переключенню на SR-A1 чи LOX-1. Механізм дисфункції підтримується, а клінічне тлумачення залежить від тканини або плазми та аналізу.
Запалення підвищує сироватковий амілоїд A, SAA, який асоціюється з ЛПВЩ і змінює білковий склад. Змінюються також ApoA-I, ліпіди, ремоделювання й кліренс. Витіснення ApoA-I — одна гіпотеза, але можливе збагачення без простого повного витіснення.
Деякі експерименти показують гірше приймання холестерину чи протизапальну функцію багатих на SAA частинок. Інші — збережений або більший відтік для певних шляхів, клітин чи нормування. Безліпідний SAA сам приймає ліпіди у моделях. Концентрація не визначає частинки як однаково токсичні й не обґрунтовує універсальне падіння CEC на 60–80%. Гострий ендотоксиновий стан, хронічна хвороба й виділені частинки з SAA in vitro різні (Vaisar та співавт., 2015; de Beer та співавт., 2013).
Гіперглікемія й реактивні карбоніли, наприклад метилгліоксаль, модифікують ApoA-I та інші складові ЛПВЩ. Глікування експериментально порушує білкові взаємодії, LCAT-пов'язану активність або PON1. Діабет також змінює тригліцериди, склад частинок, запалення й ниркову функцію, ускладнюючи приписування одному хімічному процесу. Фіксовані відсотки інактивації PON1 не застосовні до всіх людей із діабетом.
Звичайні ЛПВЩ підтримують ендотеліальні NO-сигнали через SR-BI-пов'язані шляхи й S1P-рецептори. При коронарній хворобі можлива гірша активація eNOS та змінене запалення; Besler та співавт. (2011) пов'язали це зі зниженою PON1 і LOX-1-сигналізацією. Фосфорилювання eNOS, окисний стрес і роз'єднання ферменту мають механістичне значення, але не кожний препарат модифікованих частинок запускає однаковий каскад чи перетворює NO-продукцію на супероксид. Це доповнює, а не дублює CEC. Глюкозну експозицію й судинне ушкодження окремо розглянуто в матеріалі про глікемічну варіабельність і постпрандіальні ендотеліальні ефекти.
ApoM-зв'язаний S1P підтримує контакти ендотелію, впливає на Akt/eNOS і обмежує запальні відповіді. Вміст і носій можуть змінюватися при хворобі. Кількаразове зниження в одній популяції не стає порогом усіх дисфункціональних ЛПВЩ.
Частинки переносять регуляторні мікроРНК. Tabet та співавт. (2014) показали перенесення miR-223 і регуляцію ендотеліального ICAM-1. IKK-бета — внутрішньоклітинна кіназа, не рецептор. Конкретний ICAM-1-результат не встановлює універсального макрофагального шляху; доставку й мішені слід доводити безпосередньо. Кількість та фізіологічна ефективність доставки РНК залишаються питаннями. Наявність мікроРНК у виділених ЛПВЩ не підтверджує клінічно валідований РНК-ремонт або однакове переключення захисних мікроРНК на шкідливі у кожному запальному зразку.
Печінковий SR-BI захоплює естери вибірково, без обов'язкового поглинання всієї білкової частинки. Видалення ліпідів ремоделює решту, яка може повернутися в кров, але не завжди стає фіксованим диском або ЛПВЩ3. Перенесення CETP на ApoB дає непрямий печінковий шлях. У людини вони співіснують; поширені мишачі моделі відрізняються відсутністю звичайної людської CETP-активності.
Естери гідролізуються до вільного холестерину. Нейтральні естерази діють поза лізосомами, лізосомна кисла ліпаза LIPA обробляє субстрати, що до них потрапили. Приписувати весь гідроліз вибірково захоплених естерів гормончутливій ліпазі й LIPA як взаємозамінним ферментам — ігнорувати компартменти. Вільний холестерин печінки може повторно секретуватися, запасатися, йти у мембрани, перетворюватися на жовчні кислоти або секретуватися у жовч.
CYP7A1 починає класичний синтез жовчних кислот. Перетворення змінює молекулу, але не руйнує стероїдне ядро. Інші ферменти забезпечують гідроксилювання та скорочення бічного ланцюга. Регуляція охоплює жовчну зворотну відповідь через печінкові й кишкові FXR-сигнали, зокрема людський кишковий FGF19. Пряма LXR-індукція CYP7A1 гризунів не переноситься автоматично на інший людський промотор (Goodwin та співавт., 2003).
ABCG5/ABCG8 — обов'язковий гетеродимер, який експортує нейтральні стероли через каналікулярну мембрану в жовч та обмежує всмоктування на апікальній мембрані ентероцита. BSEP/ABCB11 експортує жовчні солі, ABCB4 постачає фосфатидилхолін для змішаних міцел. Це різні субстрати; основна описана функція ABCG5/8 — не експорт жовчних кислот.
Кишковий NPC1L1 допомагає поглинати харчовий та жовчний холестерин. Він повертається через хіломікрони. Жовчні кислоти мають власну ефективну ентерогепатичну циркуляцію, тож всмоктування холестерину не тотожне їхньому рециклінгу. Мікроби перетворюють холестерин на копростанол, але не кожна невсмоктана молекула мусить пройти це перед виведенням. Трансінтестинальна екскреція є додатковою дорогою. Калове виділення інтегрує різні джерела, не автоматично ідентифікуючи холестерин артеріальних макрофагів.
Генетика SCARB1 показує співіснування високого холестерину ЛПВЩ із порушеним транспортом. Zanoni та співавт. (2016) описали рідкісний P376L із втратою функції, включно з гомозиготною жінкою з дуже високим показником, та вищі коронарні шанси у носіїв. OR 1,79 не стосувалося тільки гомозигот. Інші варіанти мали інші ризикові асоціації. Ні цей приклад, ні дефіцит LCAT не дозволяють діагностувати проатерогенні частинки у кожного з високим холестерином ЛПВЩ. Рідкісні фенотипи відділяють накопичення вантажу від потоку, зберігаючи генотипову невизначеність.
ApoA-I Milano має Arg173Cys, що дозволяє дисульфідно-зв'язані форми, на відміну від звичайного зрілого ApoA-I. У малому пілоті Nissen та співавт. (2003) п'ять щотижневих ETC-216-інфузій оцінювали внутрішньосудинним УЗД. Рандомізовано 57, завершили 47. Об'єднана група лікування мала зниження від вихідного на 1,06 відсоткового пункта процентного об'єму атероми; окремі 4,2% описували зменшення загального об'єму від вихідного. Це різні величини; внутрішньогрупова зміна не доводить перевагу клінічних подій. Подальші форми й дослідження розглядають окремо: MILANO-PILOT не підтвердив додаткового ефекту на атерому понад сучасне лікування (Nicholls та співавт., 2018).
CSL112 містить людський плазмовий ApoA-I з фосфоліпідами, а не просто рекомбінантний Milano. AEGIS-I показав великі тимчасові підвищення загальної та ABCA1-пов'язаної CEC і безпеку після інфаркту (Gibson та співавт., 2016). Це фармакодинамічні ефекти, не безпосереднє вимірювання швидкого спорожнення бляшок.
AEGIS-II рандомізував 18 219 високоризикових пацієнтів після гострого інфаркту на чотири щотижневі CSL112-інфузії чи плацебо. Первинний композит серцево-судинної смерті, інфаркту та інсульту за 90 днів — 4,8% проти 5,2%; HR 0,93, 95% ДІ 0,81–1,05, P=0,24 (Gibson та співавт., 2024). Пошукові чи пізніші аналізи не роблять первинний результат доказаним загальним показанням. Це не спростування всіх ролей відтоку, але сильне обмеження автоматичної профілактики через підвищення біомаркера.
Короткі амфіпатичні ApoA-I-мімічні пептиди 4F/D-4F досліджували щодо ліпідних взаємодій і протизапальності. Сильне зв'язування окремих окиснених ліпідів in vitro не доводить універсальної мільйонної переваги, регресії людських бляшок чи ефективності подій. Робота про ApoJ-мімік не є взаємозамінним доказом для ApoA-I-пептиду. Важливі форма, експозиція й клінічні точки.
LXR-агоністи підвищують ABCA1/ABCG1 експериментальних макрофагів, але системна активація стимулює SREBP-1c-ліпогенез і гіпертригліцеридемію. Тканинно спрямована доставка й селективність рецепторів — дослідницькі підходи, не рутинне лікування CEC.
PPAR-альфа впливає на ApoA-I, ApoC-III й тригліцериди та пов'язаний із програмами LXR макрофагів. Не можна призначити кожному на фібратах фіксоване підвищення CEC на 15–25%. Клінічні ефекти оцінюють у відповідній популяції. PROMINENT не знизив первинної серцево-судинної точки пемафібратом у 10 497 людей із діабетом і дисліпідемією, хоча тригліцериди покращилися: HR 1,03, 95% ДІ 0,91–1,15 (Das Pradhan та співавт., 2022). Інші ліпідні показання не переназначають через невалідований CEC-поріг.
Функціональне піддослідження PREDIMED охопило 296 високоризикових учасників через рік втручання. Обидві середземноморські дієти підвищили CEC від вихідного, а збагачена оливковою олією покращила окремі інші функції проти низькожирового контролю (Hernáez та співавт., 2017). Цілий харчовий патерн, лабораторний ефект і профілактика подій — різні точки. Піддослідження не доводить користь одного фенолу чи опосередкування клінічного ефекту CEC.
REDUCE-IT тестував рецептурний ікозапент етил у вибраній популяції й показав серцево-судинну користь (Bhatt та співавт., 2019). Не доведено, що вона спричинена ABCG1-відтоком, меншим субстратом CETP чи текучістю ЛПВЩ. Не можна автоматично переносити на довільні EPA/DHA-добавки. Ліпідне включення, тригліцеридні ефекти й склад частинок — правдоподібні механізми, які потребують власних вимірювань.
Фізична активність і контроль ваги змінюють ліполіз, поверхневий перенос, інсулінову чутливість та запалення. Можливий вплив на склад або CEC, але відповідь залежить від тренувань, популяції й аналізу. Обов'язковий високоїнтенсивний режим чи гарантована регенерація пре-бета не встановлені. Ширша користь не потребує досягнення одного дослідницького індексу.
Zhu та співавт. (2014) дослідили очищені антоціани у 122 людей із гіперхолестеринемією: 320 мг/добу протягом 24 тижнів; повідомили PON1-пов'язані та відтокові зміни. Робота опублікована в The Journal of Clinical Endocrinology & Metabolism. Доза досліду, лабораторна точка й вибрана популяція не означають загальної серцево-судинної схеми. У цьому дослідженні зміна CEC становила 20,0% у групі антоціанів проти 0,2% із плацебо; це відносні зміни лабораторного показника, а не зменшення серцево-судинних подій.
Кверцетин, куркумін, лікопен, коензим Q10, гранатові сполуки, ресвератрол і N-ацетилцистеїн досліджували у різних клітинних, тваринних і людських умовах. AhR/PON1 чи PPAR/LXR/ABCA1-ефекти потребують конкретних сполуки, експозиції, форми та моделі. Не доведено, що поєднання відновлює артеріальні ЛПВЩ, запобігає Tyr192/Met148-модифікаціям in vivo чи знижує події через CEC. Біодоступність і взаємодії обмежують екстраполяцію; підвищення експозиції піперином не доводить безпечного цільового впливу.
Універсальна суміш куркумін/піперин, гранат, високодозові омега-3, NAC і ресвератрол не підтверджена для CEC-ремонту. HOMA-IR нижче 2 також не є універсальним критерієм відновлення. Інсулінорезистентність, куріння, ниркова хвороба та запалення потребують клінічного ведення за власними доказами; CEC відповідає лише на питання, яке здатний вирішити валідований місцевий метод.
| Вимірювання | Внесок | Істотне обмеження |
|---|---|---|
| Загальна CEC чи нормований індекс | Акцепторна функція у заданому клітинно-трасерному тесті | Немає універсальної норми чи порога втручання; не весь зворотний транспорт |
| ABCA1-компонент | Операційна оцінка за визначених контролів | Потрібні одиниці й контраст; не автоматично годинна швидкість |
| ApoA-I та холестерин ЛПВЩ | Білкова кількість і холестериновий вантаж | Не діагностують повної функції; межі залежать від лабораторії й популяції |
| PON1 | Гідроліз заданого субстрату | Важливі субстрат, температура, генотип, одиниці; антиоксидантна функція ширша |
| SAA | Гостра фаза чи хронічне запалення | Не доводить сама порушення CEC або однаково шкідливі частинки |
| Хлортирозин/карбаміллізин ApoA-I | Спеціальні маркери модифікації | Плазма й бляшка різні; немає універсальної лікувальної межі |
| S1P ЛПВЩ | Окремий сигнальний вантаж | Важливі виділення й нормування; не рутинна підтверджена мета |
Показник понад умовні 2,3 ммоль/л холестерину ЛПВЩ сам не діагностує дисфункції. CEC нижче 0,8 описує відносну роботу одного аналізу, але не міжнародний поріг хвороби. PON1, SAA, хлортирозин і S1P також потребують методично й популяційно специфічного тлумачення. Відповідальний висновок спершу зазначає метод, одиниці, контроль, відтворюваність і контекст.
CEC збагачує біологію ЛПВЩ, переносячи увагу з вантажу на експериментально вимірювану функцію. Найсильніше застосування — чітке механістичне чи дослідницьке питання. Клінічний захист залежить від усього атерогенного впливу й транспортної мережі. Доказів для універсального CEC-лікування чи добавок із обіцянкою очищення артерій поки недостатньо.
Цей наративний науковий синтез підготовлено 8 жовтня 2026 року. Адресно перевірено первинні публікації про структури транспортера, тлумачення аналізу, клінічні когорти й рандомізовані втручання, зокрема AEGIS-II. Доступні журнальні та PubMed-анотації використовувалися для популяцій і первинних точок, доступні повні тексти — для окремих механізмів та методологічних відмінностей. Доступність різнилася; перевірка анотації не означає аудит усіх аналізів і додатків. Огляди надавали доречний біохімічний контекст.
Це не систематичний пошук і не GRADE-оцінка. Незалежне зовнішнє рецензування та клінічна валідація статті не проводилися. Клітинні, тваринні, спостережні й рандомізовані дані розрізняються. Експериментальні ефекти й дози подано у їхньому контексті; вони не визначають універсального протоколу чи валідованої лікувальної мети CEC.
Ні. Це акцепторна робота ex vivo; печінка, кишечник і чистий масовий потік оцінюються окремо.
Універсального валідованого порога немає; значення залежить від методу й контролю.
Холестерин показує вантаж, не всі функції та потік. Генетичні й лікувальні результати різняться.
Універсальна комбінація та лікувальна мета не підтверджені. Дози й лабораторні зміни не замінюють клінічних подій.