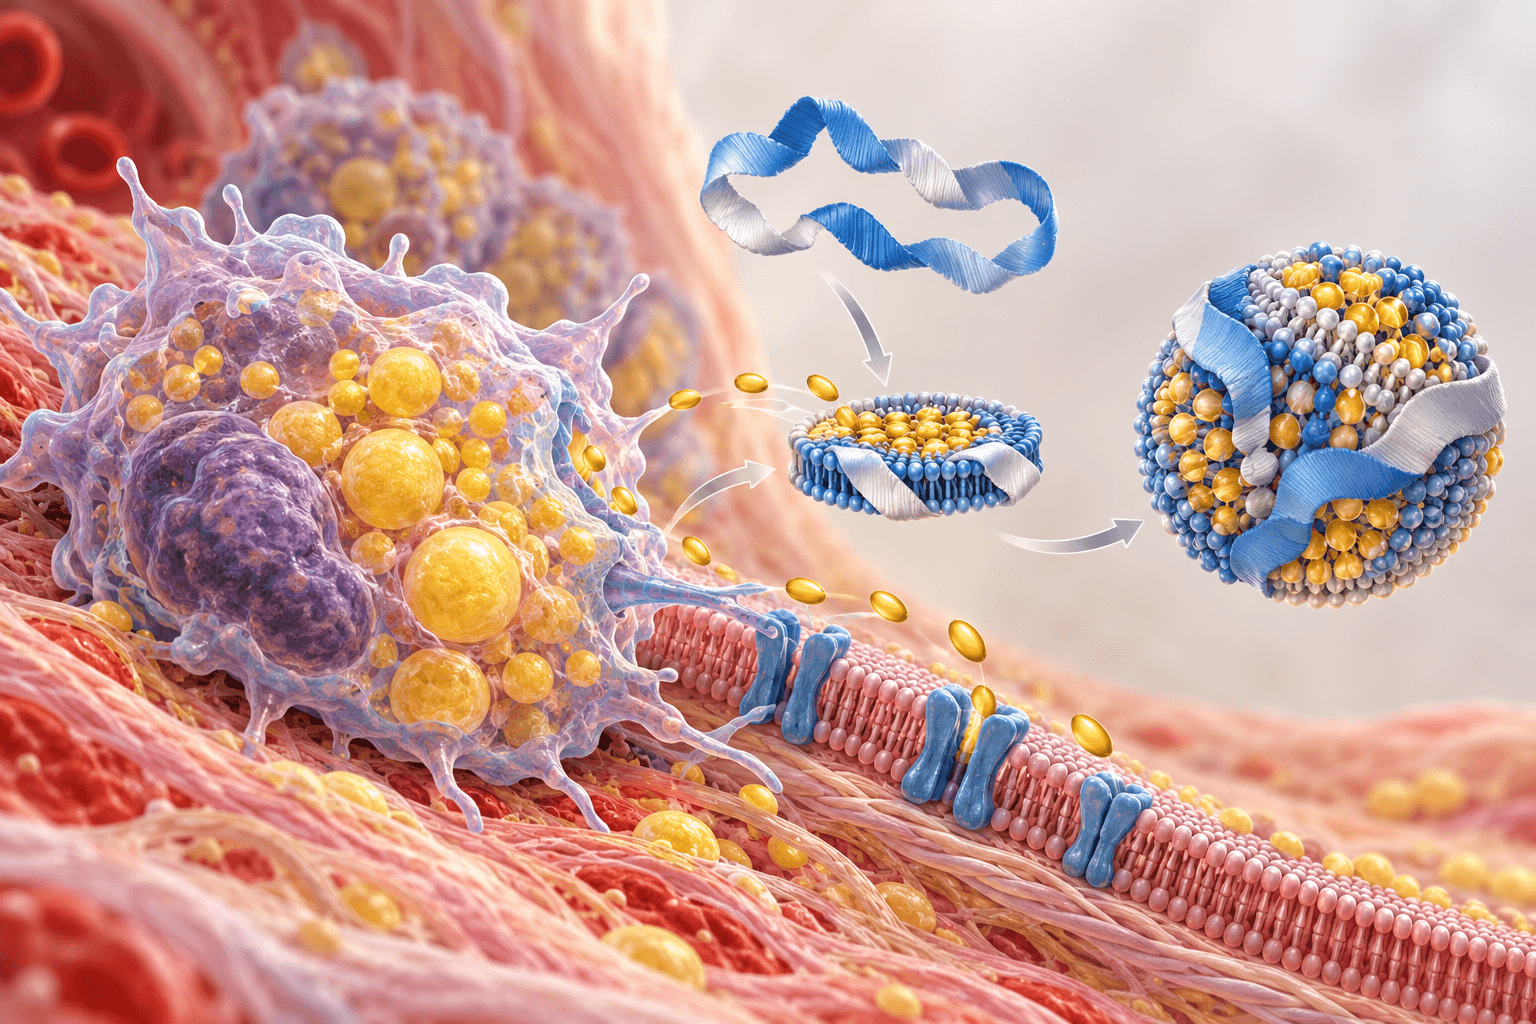
Холестерин шығуы: HDL, ABCA1 және CEC биомаркерінің шегі
HDL биогенезі мен субфракциялары, ABCA1/ABCG1/SR-BI, жасушалық әдістер, қабыну және бауыр-ішек тасымалы. Когорталар мен сынақтар функцияны дәлелденген клиникалық пайдадан ажыратады.
HDL биогенезі мен субфракциялары, ABCA1/ABCG1/SR-BI, жасушалық әдістер, қабыну және бауыр-ішек тасымалы. Когорталар мен сынақтар функцияны дәлелденген клиникалық пайдадан ажыратады.
Холестериннің шығу қабілеті, cholesterol efflux capacity — CEC, жасушадан тыс акцепторлардың нақты дайындалған қоспасы белгіленген жасушалық жүйеден таңбаланған холестеринді қаншалықты қабылдайтынын өлшейді. Ол жоғары тығыздықты липопротеиндердің, HDL-дің, холестерин концентрациясымен ғана сипатталмайтын маңызды қырын көрсетеді. HDL холестерині, HDL-C, тасымалданатын жүктің мөлшерін; бөлшек концентрациясы олардың санын; ApoA-I концентрациясы негізгі ақуызды көрсетеді. Бұл шамалар бірін-бірі алмастырмайды. CEC өзі де HDL-ге телінетін барлық қорғаныс функцияларын өлшемейді.
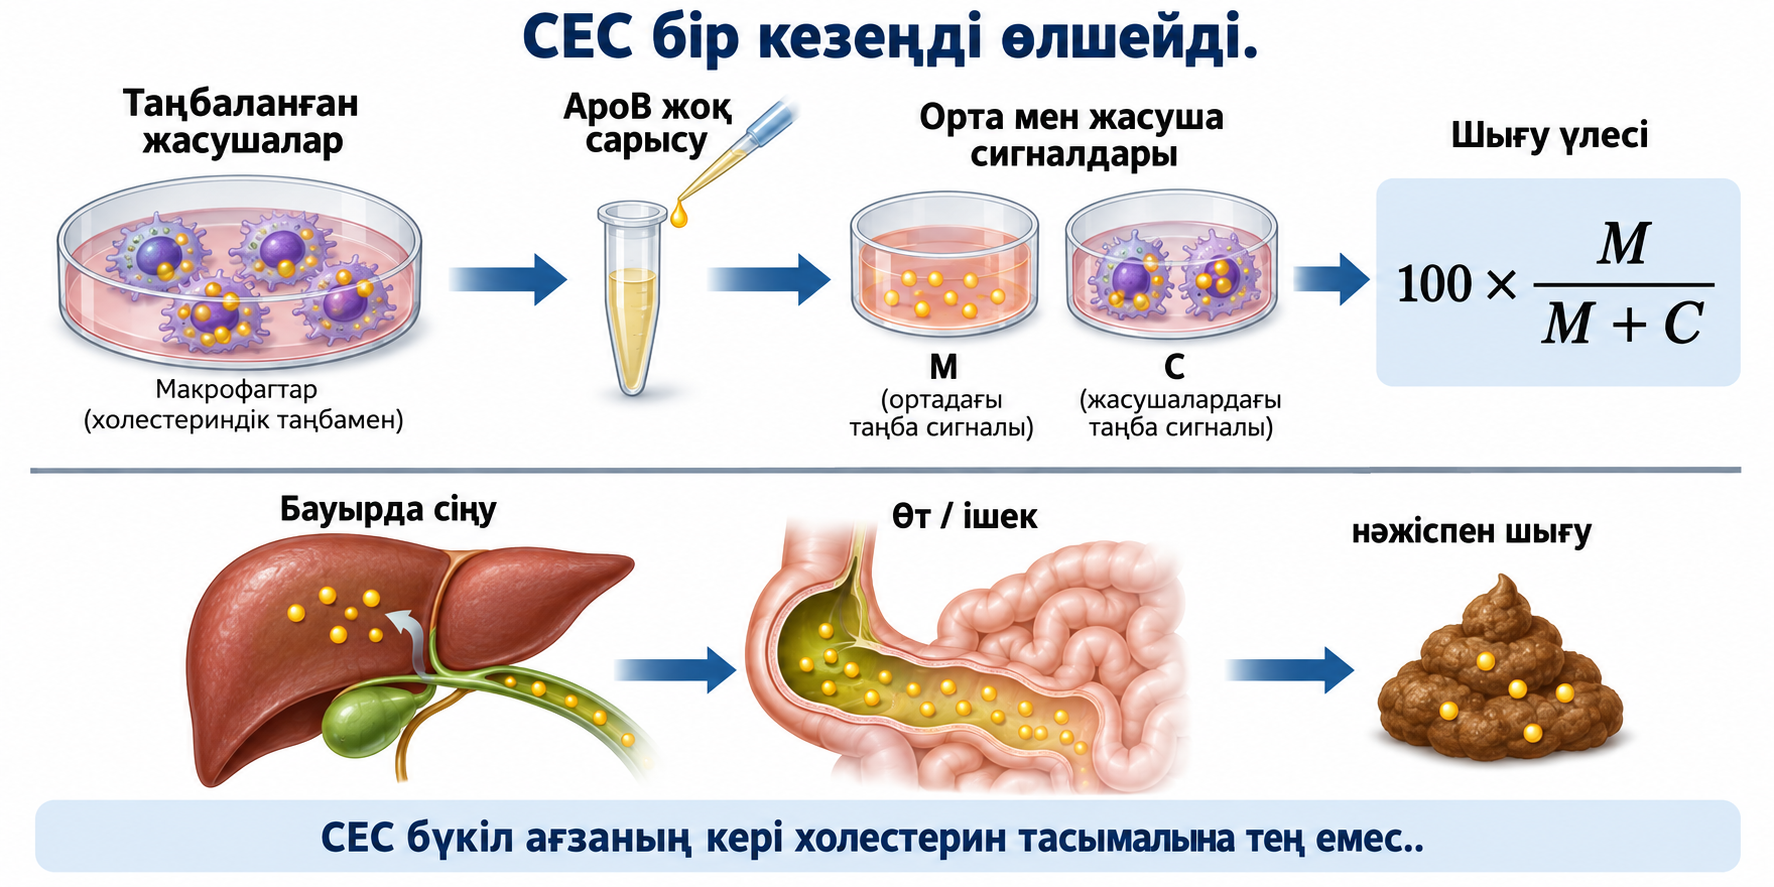
Артериялық зақымдағы макрофагтар ұсталып қалған ApoB-липопротеиндерден үздіксіз холестерин алады. Оны сақтау, жұмылдыру немесе сыртқа шығару керек. HDL және липиді аз аполипопротеиндер бос холестеринді қабылдап, көбік жасушаларының түзілуін ықтимал шектейді. Бірақ зертханалық шығу үлкен желінің бір кезеңі ғана: липопротеиндер арасындағы алмасу, бауырға сіңу, өт секрециясы, ішекте сіңу және нәжіспен шығу холестериннің ағзадан кетуін анықтайды. Ex vivo жоғары CEC нақты адамның артериялары белгілі жылдамдықпен тазарып жатқанын дәлелдемейді.
Бақылаулық зерттеулер HDL-C бойынша түзетуден кейін жоғары CEC-ті төмен коронарлық немесе жүрек-қантамыр қаупімен байланыстырған. Бұл HDL функциясын зерттеуге негіз береді, бірақ әмбебап диагностикалық шекті немесе дәрі не қоспамен CEC көтерудің оқиғаларды болдырмайтынын растамайды. Кейінгі кейбір когорталар тәуелсіз байланыс таппады. ApoA-I инфузияларының үлкен AEGIS-II сынағындағы бастапқы нәтижесінің теріс болуы тартымды механизмді емдік уәдеге айналдырғанда ерекше маңызды.
Жетілген адамның ApoA-I ақуызы 243 аминқышқыл қалдығынан тұрады, массасы шамамен 28 кДа; оны 11-хромосоманың аполипопротеиндер гендері тобындағы APOA1 кодтайды. HDL ақуыздық қаңқасының үлкен бөлігін құрайды. Қайталанатын амфипатиялық альфа-спиральдар гидрофобты бүйір тізбектерді липидке, полярлы және зарядталғандарын суға қаратады. N-ұшындағы спираль шоғы мен икемді C-ұшындағы липидпен байланысатын аймақ фосфолипид бетіне қосылғанда қайта құрылады. Спиральдық үлес липидтенуге және ортаға тәуелді; бір тұрақты пайыз барлық түрін сипаттамайды.
Липидсіз және липиді аз ApoA-I — ұқсас, бірақ әртүрлі күйлер. C-ұшы мембранамен алғашқы жанасуға көмектеседі, спираль шоғының ашылуы кең липидтік байланысты қамтамасыз етеді. Қайта құрастырылған дискілі HDL-де екі немесе одан көп ApoA-I фосфолипид қосқабатының бөлігін белдік тәрізді қоршайды. Плазмадағы сфералық HDL моноқабат пен бейтарап липид өзегінің айналасында басқа кеңістіктік ұйымдасуды қажет етеді. Айқас байланыстыру және масс-спектрометрия әр бөлшекке ортақ қатты құрылымнан гөрі бейімделетін торлы қаңқаларды қолдайды (Huang және әріптестері, 2011).
Бауыр мен ішек ApoA-I бөледі. ABCA1-ге тәуелді липидтену фосфолипид пен бос холестерині бар жаңа бөлшектер түзеді. Бастапқы дискілер кейін бейтарап өзек жинап, сфераға айналады. Қолданыстағы HDL қайта құрылғанда липиді аз ApoA-I қайта пайда болады, сондықтан биогенез бір бағытты құрастыру желісі емес, цикл.
Пре-бета және альфа атаулары электрофорездік қозғалысқа, HDL2 мен HDL3 дәстүрлі түрде тығыздыққа қатысты. Өлшем, тығыздық, электрофорез және ядролық магниттік резонанс санаттары қабаттасқанымен бірдей емес. Барлық пре-бета бөлшекке бір диаметр немесе әр HDL3-ке бір альфа жолағын телу дұрыс емес. Жаңа диск — жетілген кішкентай сфераның өзі емес.
| HDL препараты немесе санаты | Әдеттегі құрылым | Функционалдық мағына |
|---|---|---|
| Липидсіз немесе липиді аз ApoA-I, пре-бета-1 материалының көп бөлігі | Липиді жоқ немесе аз ақуыз | ABCA1-липидтенуінің тиімді акцепторы; саны ақуыз қызметінің бүтіндігін дәлелдемейді |
| Жаңа дискілі HDL | ApoA-I бекіткен фосфолипид қосқабатының бөлігі | Ерте биогенез; құрамы мен өлшемі донор жасушаға және липид көзіне тәуелді |
| HDL3 тығыздық фракциясы | Кішілеу, тығыз, ақуызға бай бөлшектер | ABCG1-мен байланысты және пассивті шығуды жиі тиімді қабылдайды; талдауды нормалау маңызды |
| HDL2 тығыздық фракциясы | Ірілеу, липидке бай бөлшектер | Қайта құрылуға және бауырдың таңдамалы сіңіруіне қатысады; үлкен өлшем қорғанысқа тең емес |
Дәстүрлі ультрацентрифугалау HDL2-ні шамамен 1,063–1,125 г/мл, HDL3-ті 1,125–1,210 г/мл аралығында бөледі. Әдеттегі диаметрлер тиісінше шамамен 8,8–12 және 7,2–8,8 нм, бірақ шекара әдіске тәуелді. ApoA-I молекулаларының саны өзгермелі. HDL ақуызының миллиграмына, бөлшекке, ApoA-I молекуласына немесе плазма көлеміне есептеген белсенділік бір фракцияларды әртүрлі реттейді. Кіші тығыз HDL3 қолайлы фосфолипид құрамымен экспериментте белсенді болуы мүмкін, бірақ оның концентрациясы әмбебап емдік нысана болмайды (Camont және әріптестері, 2013).
Лецитин-холестерин ацилтрансферазасы, LCAT, негізінен бауыр өндіретін айналымдағы фермент. ApoA-I мен липид беті белсенділігін қолдайды. Ол фосфатидилхолиннен ацил тобын бос холестериннің гидроксил тобына тасымалдап, лизофосфатидилхолин мен холестерин эфирін түзеді:
Аралық ацил-фермент кешені пайда болады; реакция бос май қышқылын шығарып, оның өздігінен эфир түзуі емес. Эфир бос холестериннен гидрофобтырақ және өзекке орналасып, дисктің сфераға өтуін қолдайды. Акцептор бетінің холестериндік белсенділігіне әсер етеді, бірақ беттегі бос холестеринді нөлге түсірмейді және шексіз шығуды қамтамасыз етпейді. LCAT, акцепторлар мен кейінгі тазарту өзара тәуелді. Ауыр тапшылық липопротеин X, қасаң қабық өзгерістері және бүйрек ауруын қамтитын бұзылыстарға әкеледі; бұл LCAT белсенділігі мен коронарлық қорғаныс арасындағы қарапайым сызықты байланысты дәлелдемейді.
Холестерин эфирлерін тасымалдаушы CETP бейтарап липидтерді HDL және ApoB-бөлшектер, соның ішінде VLDL, қалдықтар мен LDL арасында ауыстырады. HDL эфирлерінің триглицеридтерге алмасуы пайдалы қарапайым сипаттама, бірақ қатаң эквимолярлық міндетті емес. Ұсынылған тасымалдаушы және көпір механизмдерін міндетті туннель түзетін димерге теңеуге болмайды. ApoB-ге беру осы бөлшектердің рецепторлық сіңуі арқылы HDL холестеринін бауырға жеткізуге үлес қосады.
Триглицеридке байыған HDL бауыр липазасының субстраты болады: ол триглицеридтер мен фосфолипидтерді гидролиздеп, кіші бөлшектер және липиді аз ApoA-I шығарады. Эндотелий липазасы фосфолипидтерді басым гидролиздейді. PLTP триглицеридке бай липопротеиндер липолизінде бөлінген беткі липидтерді тасымалдайды, HDL бірігуіне, ұлғаюына және ApoA-I бөлінуіне қатысады. Бұлар келесі ABCA1-липидтенуіне арналған акцепторлар пулын өзгертеді. Қайта құрылу тасымалды жеңілдетеді немесе белгілі метаболикалық жағдайда қолайсыз өзгеріс береді. CETP те, PLTP де контексттен тыс үнемі пайдалы не зиянды емес.
HDL әртекті протеом мен липидом тасымалдайды. Ақуыз тізімдері бөлу әдісіне, сезімталдыққа және ластануды бақылауға тәуелді; әр бөлшекте ондаған ақуыз қатар жүреді деген сөз емес. ApoA-II, ApoE, ApoM, PON1 және жедел фаза ақуыздары бөлшектердің топтарын немесе күйлерін сипаттайды.
Параоксоназа-1 PON1 — кальцийге тәуелді HDL ферменті, лактоназалық, арилэстеразалық және параоксоназалық белсенділігі бар. Атауы зертханалық субстраттан шыққан, физиологиялық функцияның толық сипаттамасы емес. ApoA-I және липид ортасы белсенділікті сақтайды. Антиоксиданттық әсерлер экспериментте қолдау табады, бірақ PON1 барлық липид гидропероксидтерінің әмбебап гидролазасы немесе бір жасанды субстрат талдауы HDL-дің тұтас антиоксиданттық қабілеті деп айту артық (Mackness және Mackness, 2015).
ApoM — сфингозин-1-фосфат S1P-ді байланыстыратын липокалин; S1P сигналдық сфинголипид. HDL-S1P эндотелий рецепторларын белсендіріп, жасушааралық адгезиялық түйісулерді сақтайды және Akt/eNOS-қа ықпал етеді. Плазмадағы елеулі бөлікті HDL, басқа пулды альбумин тасымалдайды. Тасымалдаушыға тәуелді рецептор қозғалысы мен сигналдар екі пулдың бірдей болмауын түсіндіреді. ApoE рецепторлар мен клиренске қатысады, ApoA-II құрылым және қайта құруды өзгертеді. Бұл қызметтер маңызды, бірақ холестерин шығу талдауымен түгел өлшенбейді (Christoffersen және әріптестері, 2011).
Көбік жасушаларында бос холестерин және липид тамшыларындағы эфирлер болады. Сыртқа шықпас бұрын эфир гидролизі бос холестеринді қолжетімді етуі керек. Лизосомалық өңдеу, жасушаішілік қозғалыс, мембрана мен акцептор қолжетімділігі экспортқа ықпал етеді. Макрофагтың кері тасымалының алғашқы қадамы маңызды, бірақ бүкіл ағза үшін жалғыз әмбебап шектеуші қадам деу бірнеше тар орны бар желіні тым жеңілдетеді.
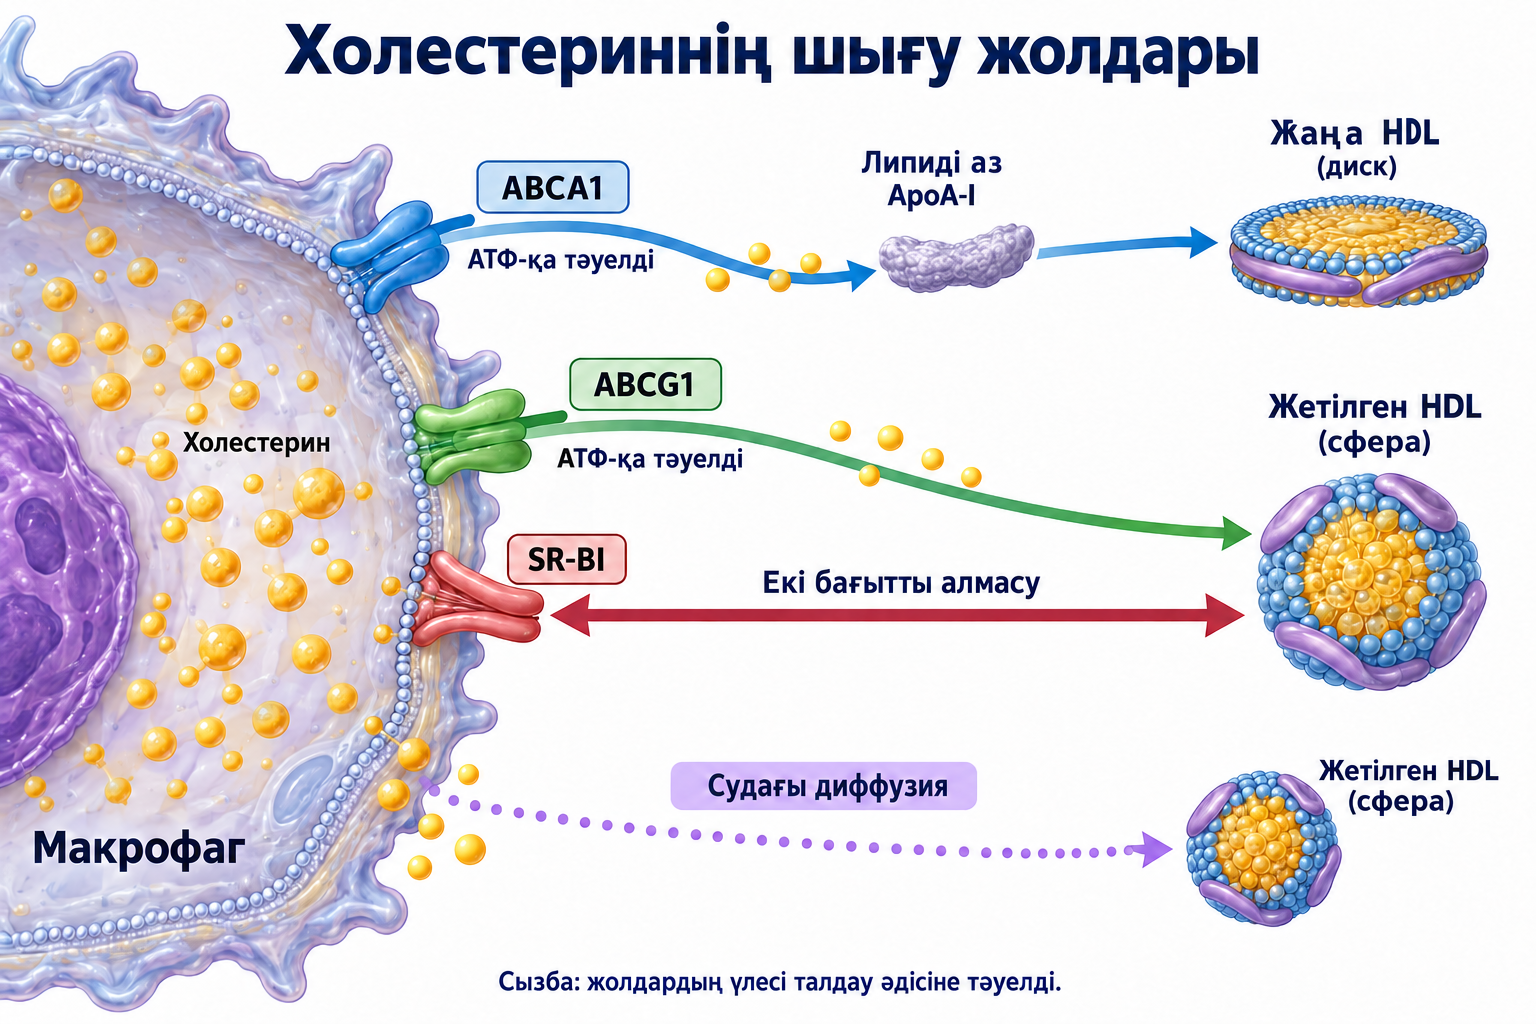
ABCA1 — екі трансмембраналық аймағы, екі нуклеотид байланыстырушы домені және үлкен жасушадан тыс домендері бар толық ABC-тасымалдаушы. АТФ-тәуелді конформация өзгерісін фосфолипид экспорты және HDL биогенезімен байланыстырады. Липидсіз не липиді аз ApoA-I — ерекше тиімді серіктес. Тиісті жүйелерде ApoE сияқты басқа аполипопротеиндер қатысады. Жетілген HDL бұл жолда әдетте тиімділігі төмен, бірақ «тек қана» деу қатаң: бөлшектер қайта құрылып, алмасатын ApoA-I ұстайды.
ABCA1 липидтерді қайта ұйымдастырып, қолжетімді мембраналық орта және/немесе экспортталған липид жасайды; ApoA-I оны жаңа HDL-ге ерітеді. ApoA-I байланысы ABCA1-ді ыдыраудан тұрақтандыруы мүмкін. Мембрана қисықтығы мен микросолюбилизация моделі амфипатиялық спиральдардың липид қапталуының ақауларымен жанасуын түсіндіреді. Бұл әр жасушада ApoA-I дәл анықталған мембраналық томпаюды қырып алады деген тікелей дәлел емес, механизм моделі (Phillips, 2014).
ABCA1 функциясын жоғалтатын екі аллель Танжер ауруын туғызады: HDL өте төмен, тінге холестерин жиналады, бадамша бездер қызғылт сары, кейде шеткері нейропатия болады. Жүрек-қантамыр көріністері әртүрлі; ауыр ерте атеросклероз бәрінде міндетті емес. Ауру ABCA1 маңызын көрсетеді, бірақ бүкіл фенотипті HDL-C-ке қысқартпайды.
Qian және әріптестері 2017 жылы жариялаған крио-ЭМ құрылымы, PDB 5XJY, ABCA1-дің ерекше кең жасушадан тыс архитектурасын ашты. Зерттеу Cell-де жарияланды, DOI 10.1016/j.cell.2017.05.020. Құрылымдық сәттер гипотезаны шектейді, бірақ липид экспорты мен ApoA-I босауындағы барлық қадамды тікелей түсірмейді.
ABC-дің әдеттегі схемасы субстратқа ішкі қолжетімділікті, АТФ арқылы нуклеотид домендерінің жабылуын және сыртқа жеткізуді ұсынады. Бүкіл тізбекті ABCA1-ге сынсыз қолдану қиын. Segrest және әріптестері (2022) модельдеу мен мутагенез арқылы фосфолипидтің мембрананың сыртқы жапырақшасынан кіреберіс пен сақина арқылы жасушадан тыс гидрофобты туннельге алынуын ұсынды. Ол қарапайым ішкіден сыртқыға ауыстыратын флоппазадан өзгеше. Фосфолипид экспортын холестерин тасымалымен және жаңа HDL құрастырумен байланыстыру сұрақтары ашық. АТФ-тәуелділік пен сыртқы домендер жақсы дәлелденген; нақты липид кіретін жол және барлық конформациялар эксперимент шегінде қалуы керек. Мутация тасымал, орналасу не тұрақтылықты өзгертеді, бірақ әр нүктелік өзгеріс функцияны түгел жоймайды.
ABCG1 — димерлі ұйымдасумен істейтін жарты ABC-тасымалдаушы. Стерол пулдарын қайта бөліп, холестеринді жетілген HDL сияқты липидті акцепторларға қолжетімді етеді. Ол ABCA1 сияқты липидсіз ApoA-I-ден HDL жасамайды. Плазмалық мембрана мен жасушаішілік бөліктер қатысады. Таңдалған оксистеролдарға қарсы қорғаныс экспериментте көрсетілгенімен, барлық стерол әр тінде бірдей өңделеді дегенді білдірмейді.
Екі тасымалдаушы бірге жұмыс істейді: ABCA1 жаңа акцептор жасайды, ABCG1 липидтенген бөлшекке кейінгі экспортты қолдайды. Бұл әр HDL міндетті ABCA1→LCAT→ABCG1 тәртібімен өтетін конвейер емес. Үлес түрге, жасуша жіктелуіне, холестерин жүктемесіне және акцептор концентрациясына тәуелді.
SCARB1 кодтайтын SR-BI HDL-ді байланыстырып, таңдамалы липид сіңуін және бос холестериннің екі бағытты алмасуын қамтамасыз етеді. АТФ гидролиздемейді. Таза қозғалыс жалпы концентрациядан гөрі стеролдың химиялық белсенділігіне, мембранаға және бөлшек құрамына тәуелді. Полярсыз тасымал жолдары — модельдер; әмбебап дәл 10-нм ашық туннель адамның SR-BI анатомиясының дәлелденген белгісі емес.
Бауырлық қызметі ерекше маңызды: эфирлер толық HDL бұзылмай гепатоцитке таңдамалы өтеді. Макрофаг SR-BI тиісті жағдайда шығуды жеңілдетеді, бірақ жануар тәжірибелері оны макрофагтан нәжіске тасымалда ABCA1/ABCG1-мен алмастырмайды.
Судағы диффузия жеке холестериннің донор бетінен десорбцияланып, сулы шекараны өтіп, акцепторға қосылуына мүмкіндік береді. Суда нашар еруі десорбцияны маңызды етеді; жылдамдық фосфолипид қапталуы мен стерол белсенділігіне тәуелді. Тұжырымдамалық теңгерім:
Оң жақтағы шамалар — берілген жағдайда сыртқа және ішке бағытталған холестерин массасының ағындары. Таңба сыртқа шығуы мүмкін, ал қатар ішке ағын таза масса шығаруды аз етеді. Кейбір талдауда диффузия үлесі үлкен; әмбебап 10–15% шек немесе барлық мембрана үшін бір десорбция жартылай уақыты негізсіз.
NR1H3 және NR1H2 кодтайтын LXR-альфа мен LXR-бета таңдалған оксистеролдар мен туыс метаболиттерге жауап береді. RXR-мен бірге ABCA1, ABCG1, APOE және басқа гендердің жауап элементтерін реттейді. CYP27A1-тәуелді стерол тотығуы сезгіш жүйеге үлес қосады. Ядролық рецептор белсенуі транскрипцияны өзгертеді; ақуыз айналымы және орналасуы қосымша бақылау береді.
Жауап макрофагта холестерин жиналуын азайтып, қабыну сигналын өзгертеді. Бірақ барлық артық холестерин бірден бір оксистеролға айналмайды және тасымалдаушылардың тұрақты бес–он есе индукциясы әмбебап емес. LXR бауыр липогенезіне де әсер етеді. Артериялық макрофагқа пайдалы бағдарлама бауыр триглицеридін көтерсе қолайсыз болуы мүмкін.
Зерттеулер J774 макрофагтарын, жіктелген THP-1 немесе басқа донорларды радиотаңбаланған холестерин не флуоресцентті стерол зондымен жүктейді. Кей протокол ACAT/SOAT эфирленуін тежеп, бос пулды басым етеді, одан кейін cAMP немесе басқа индукциямен ABCA1 белсенділігін көтереді. Бұлар бір әмбебап стандарт емес, әдістің таңдаулары. Стимулсыз J774 биологиялық белсенді және міндетті ABCA1-нөл бақылау емес.
ApoB бөлшектері алынған сарысу жиі акцептор болады. LDL, VLDL және туыс бөлшектерді алу HDL бар препаратқа назар аудартады, бірақ альбумин, алмасатын аполипопротеиндер мен басқа факторлар қалады. Нәтиже тек HDL-дің ішкі сапасын көрсетпейді. Тұрақты сарысу көлеміндегі CEC акцептор саны, құрамы мен қызметін біріктіреді; бірдей ақуыз концентрациясындағы оқшауланған HDL басқа сұраққа жауап береді. Ультрацентрифугалау немесе тұндыру препараттың өзін өзгерте алады.
Жасушаларды жуып, нақты концентрациядағы акцептормен белгілі уақыт инкубациялайды. Көп жұмыста ApoB алынған сарысудың бірнеше пайызы және бірнеше сағат қолданылған, бірақ концентрация, ұзақтық, таңба тепе-теңдігі мен температура көрсетілуі керек. Жасуша тіршілігі мен ағып шығу маңызды: өліп жатқан жасушадан көп таңба шығуы пайдалы холестерин экспорты емес.
Таңба шығуының қарапайым үлесі:
мұндағы M — ортада қалпына келтірілген таңба сигналы, C — жасушамен байланысты сигнал; аспап фоны мен қалпына келтіру дұрыс ескеріледі. E нақты инкубациядағы пайыз, автоматты түрде сағатына пайыз емес. Кей әдістер акцепторсыз шығуды шегереді:
Индекстер түзетілген нәтиже, акцептор бар және жоқ жағдайды білдіреді. Планшет бақылауымен нормаланған индекс:
Алымда үлгінің түзетілген шығуы, бөлімде нақты біріктірілген бақылау препараты тұр. 1 индексі сол талдауда бақылауға теңдікті білдіреді, 100% экспортты, популяция медианасын немесе әмбебап қалыпты емес. Мысалы, үлгі 8%, бақылау 10% болса индекс 0,8. Бұл арифметика HDL дисфункциясын диагностикаламайды.
BODIPY-холестерин сезімтал, көлемді флуоресцентті өлшеулер береді және ABCA1 үлесін басым көрсетуі мүмкін. Sankaranarayanan және әріптестері (2011) тритийлі холестеринмен салыстырып, пайдалы талдау сипаттарын көрсетті. Бірақ флуорофор стерол қасиеттері мен жолдардың салмағын өзгертеді. Маңызды корреляция сандық алмастырылуды немесе барлық препаратта 0,85–0,90-нан жоғары байланысты білдірмейді. Радиометрия мен флуоресценция жеке тексеру, динамикалық аралық, бақылаулар мен референстік материалдарды қажет етеді.
Стимулданған және стимулсыз донорлар айырмасы ABCA1-тәуелді компонентті бағалауға қолданылады:
Бұл екі жағдайдың операциялық айырмасы. Индукция бірнеше процесті өзгертеді, стимулсыз жасушада ABCA1 қалуы мүмкін. Трансфекцияланған жүйелер, функциясы жоғалған генетикалық бақылау және тежегіштер қосымша мәлімет береді, әрқайсының шегі бар. Жалпы CEC төрт тәуелсіз тең компоненттің қосындысы міндетті емес: кей жол аз экспрессияланады, жолдар ортақ липид пулын пайдаланады.
ABCA1 шығуы липиді аз акцепторлардың саны мен ApoA-I бүтіндігіне тәуелді. ABCG1 талдауы липидтенген акцептор құрамына, SR-BI екі бағытты алмасуға тәуелді. Аурулар мен араласуларды салыстыруда жүйе мен нормалау сәйкестенуі керек. Бір жолдың нәтижесі барлық HDL функциясына жалпыланбайды.
Жасуша пассажы мен жіктелуі, индукция күші, таңбаның меншікті белсенділігі, акцептор даярлау, қалдық ApoB, сарысу не плазма, инкубация, сақтау және мұздату–еріту айырма береді. Полиэтиленгликольмен тұндыру HDL-ден басқа құрамдарды қалдырады немесе препаратты өзгертеді; толық алынбау жалғыз мәселе емес. Стандарт J774 талдауына адамның рецепторын міндетті трансфекциялау қажет емес.
Бақылау пулдары, техникалық қайталау, үлгілерді жасырын орналастыру, қалпына келтіру бақылауы және серия ішіндегі/арасындағы вариация коэффициенттері сенімділікті арттырады. Бір зертхананың төмен CV-сі әмбебап халықаралық талап болмайды. Зертханалар келісімі ортақ материал мен мұқият бірдей протоколды қажет етеді, тек «нормаланған» атауды емес. Барлық CEC әдістеріне қолданылатын халықаралық расталған клиникалық шешім шегі жоқ.
Таңбаның қайта таралуы таза масса шығаруға тең емес. Ex vivo акцептор талдауы науқастың өз макрофаг тасымалдаушыларын, артериядағы эфир жұмылуын немесе бауыр тазартуын өлшемейді. Бұл шектер нәтижені анықтайды, әдісті тастауға себеп емес. Өлшенетін шама дәл болса, CEC механизмдік және трансляциялық зерттеуге құнды.
Khera және әріптестері (2011) ұйқы артериясының интима–медиа қалыңдығы бағаланған 203 сау ерікті, ангиографиямен расталған коронарлық ауруы бар 442 және ондай растауы жоқ 351 адамда CEC зерттеді. Аурумен кері байланыс HDL функциясын зерттеуді қолдады, бірақ бұл Dallas проспективті когорты немесе сол топтарды 9,4 жыл бақылайтын жұмыс емес.
Rohatgi және әріптестері (2014) жүрек-қантамыр ауруы жоқ 2 924 Dallas Heart Study қатысушысында бастапқы CEC өлшеді. Медиана 9,4 жылда жоғары CEC төмен жаңа оқиғалар қаупімен байланысты болды. Толық түзетілген жоғарғы/төменгі квартиль HR 0,33, 95% сенімділік аралығы 0,19–0,55. Бұл салыстырмалы оқиға қарқынының 67% төмендігі, CEC көтерген адамның қаупі міндетті 67% азаяды деген сөз емес. HDL-C сол талдауда сондай түзетілген байланыс көрсетпеді.
Saleheen және әріптестері (2015), The Lancet Diabetes & Endocrinology, EPIC-Norfolk ішіндегі 1 745 жаңа коронарлық жағдай мен 1 749 бақылауды зерттеді. Жоғарғы/төменгі терцильдің түзетілген OR 0,64, 95% аралығы 0,51–0,80. CEC HDL-C-пен r=0,40, ApoA-I-мен r=0,22 корреляцияланды. Бұл бөлек функционалдық өлшемге сәйкес, бірақ түзету толық биологиялық тәуелсіздікті немесе барлық шатастырушы фактордың жойылуын дәлелдемейді.
Kuusisto және әріптестері (2022) қарсы маңызды мәлімет берді: алты когорт, 14 438 адам және 1 570 жаңа коронарлық оқиғада HDL-C қамтылған түзетуден кейін тәуелсіз байланыс сақталмады. Популяциялар, жүйелер және ортақ анықтаушы факторлар салыстыруды қиындатады. Деректер контексттік зерттеу биомаркерін қолдайды, клиникалық суррогаттың бірауызды расталуын емес.
| Зерттеу | Дизайн және сұрақ | Негізгі мағына |
|---|---|---|
| Khera 2011 | Коронарлық ауру мен ұйқы артериясының көлденең бағасы | Қолданыстағы аурумен байланыс, болашақ нәтижелердің себептілігі емес |
| Rohatgi 2014, Dallas | Бастапқы акцептор CEC және жаңа оқиғалар | Шеткі квартильдер HR 0,33; бақылаулық байланыс |
| Saleheen 2015, EPIC-Norfolk | Жаңа коронарлық аурудың ішкі жағдай–бақылау талдауы | Шеткі терцильдер OR 0,64; жүйе мен популяцияға тәуелді |
| Kuusisto 2022 | Когорталар және генетикалық талдаулар | Тәуелсіз байланыс біркелкі қайталанбаған |
| Gibson 2024, AEGIS-II | Инфаркттан кейінгі рандомизацияланған ApoA-I инфузиясы | 90 күндік бастапқы құрама нәтижені маңызды азайтпады |
Пайдалы биомаркерге жай байланыс жеткіліксіз. Күнделікті қолдануға қайталанғыштық, қосымша клиникалық ақпарат, калибрленген шешім шектері және нәтиже бойынша әрекет көмекті жақсартатынының дәлелі қажет. CEC әдеттегі қауіп бағасын жалпы алмастырмайды. ApoB бөлшектерінің саны мен LDL холестерині жүгінің айырмасы әр өлшемнің мәнін сақтауды көрсетеді: қолайлы HDL қызметі атерогендік бөлшектер ықпалын жоққа шығармайды.
HDL-C пен аурудың тарихи кері байланысы оны көтеретін емдерге түрткі болды, бірақ себептік нысананы өзі дәлелдемеді. Voight және әріптестері (2012) HDL көтеретін LIPG вариантын қамтитын генетикалық тәсілдермен қарапайым үлгіге күмән келтірді. Мендельдік рандомизация аспаптар мен плейотропияға тәуелді; ол барлық HDL қызметі маңызды емес деген сөз емес.
ILLUMINATE-де торцетрапиб HDL-C-ті қатты көтерді, бірақ жүрек-қантамыр оқиғалары мен өлімді арттырды. Қан қысымы, альдостерон және электролит өзгерістері маңызды нысанадан тыс уыттылықпен үйлесті (Barter және әріптестері, 2007). Dal-OUTCOMES дальцетрапибі маңызды төмендету бермеді (Schwartz және әріптестері, 2012). ACCELERATE эвацетрапибі липидтерді қатты өзгертіп, бастапқы нәтижені жақсартпады (Lincoff және әріптестері, 2017). AIM-HIGH және HPS2-THRIVE-де қазіргі статиндерге ниацин қосу күтілген пайда бермей, жағымсыз әсер қосты.
Бұл CETP тежелуі барлық HDL-ді міндетті инертті, артық толған бөлшекке айналдырады деген дәлел емес. Тежегіштер өлшенетін шығуды арттырып, ApoB-ге қатысты әсерді азайтады. REVEAL анацетрапибпен ірі коронарлық оқиғаларды азайтты: медиана 4,1 жылда 10,8% және 11,8%, жиілік қатынасы 0,91, 95% аралығы 0,85–0,97. HDL-ден тыс холестерин де төмен, сондықтан пайда тек HDL-C көтерілуіне телінбейді. Сынақтар концентрация өзгерісін дәлелденген механизмдік пайдадан бөледі, әмбебап «салдану» әңгімесін қолдамайды.
Миелопероксидаза MPO сутек пероксиді мен хлоридтен гипохлорлы қышқыл түзеді; басқа субстраттармен басқа тотықтырғыштар шығарады. ApoA-I атеросклероз тінінде және тәжірибеде нысана болады (Zheng және әріптестері, 2004). Хлортирозин — хлорлау химиясының пайдалы маркері, бірақ функция жоғалуын толық түсіндірмейді.
Tyr192 — маңызды хлорлану орны. Метионин мен триптофан тотығуы да белсенділікке әсер етеді. Салдар қалдыққа, дәрежеге, липидтенуге және соңғы көрсеткішке тәуелді. Тек Tyr192 әсерінен шығудың әмбебап 75–85% төмендеуі негізсіз. Met148 тотығуы LCAT белсенуіне ерекше қатысты: Shao және әріптестері (2008) өз жүйесінде метионин тотығуын кері қайтарып, белсенділікті қалпына келтірді. Мұны ABCA1 байланысымен шатастырмау немесе ауызша антиоксидант адамның бляшкасындағы ApoA-I-ді жөндейді деп түсінбеу керек.
Мочевина химиясынан немесе MPO реакцияларынан туатын цианат/изоциан қышқылы лизин амин тобын карбамиллизинге, гомоцитруллинге, айналдырады. Жоғары мочевина мен темекіге қатысты тиоцианат экспозициясы модификацияны күшейтуі мүмкін. Заряд және байланыс өзгереді, бірақ міндетті төрт лизиннің өзгеруі ABCA1-ді түгел тоқтатады деген әмбебап жиын қажет емес.
Holzer және әріптестері (2011) зақымнан алынған HDL карбамилденуін тауып, өзгерген HDL макрофагта SR-BI-тәуелді холестерин жиналуын туғызатынын көрсетті. Бұл SR-A1 немесе LOX-1-ге міндетті ауысу емес. Дисфункция механизмі қолдау табады, клиникалық мағына тін не плазма өлшеміне және талдау жағдайына тәуелді.
Қабыну сарысулық амилоид A, SAA, мөлшерін көтереді; ол HDL-ге қосылып, ақуыз құрамын өзгертеді. ApoA-I, липидтер, қайта құрылу және клиренс те өзгеруі мүмкін. ApoA-I-ді ығыстыру — бір ұсынылған процесс, бірақ толық ығыстырусыз байу мүмкін.
Кей экспериментте SAA-ға бай HDL нашар қабылдайды немесе қабынуды аз тежейді; өзгелері кей жолдар, донорлар немесе нормалауда сақталған/артқан шығуды табады. Липидсіз SAA модельде липид қабылдайды. Сондықтан жалғыз концентрация HDL-ді бірдей уытты деп анықтамайды және әмбебап 60–80% CEC төмендеуін негіздемейді. Жедел эндотоксин, созылмалы қабыну және in vitro байытылған бөлшектер — басқа жағдайлар (Vaisar және әріптестері, 2015; de Beer және әріптестері, 2013).
Гипергликемия және метилглиоксаль тәрізді белсенді карбонилдер ApoA-I мен басқа HDL құрамдарын өзгертеді. Тәжірибеде гликация ақуыз байланысын, LCAT немесе PON1 қызметін бұзады. Диабет триглицерид алмасуын, бөлшек құрамын, қабынуды және бүйрек қызметін де өзгертеді, сондықтан бір реакцияға түгел телу қиын. PON1 инактивациясының тұрақты пайыздары барлық диабетті адамға қолданылмайды.
Қалыпты HDL SR-BI-мен байланысты жолдар және S1P рецепторлары арқылы эндотелий NO сигналын қолдайды. Коронарлық ауруда eNOS белсенуі төмендеп, қабыну сигналдары өзгереді; Besler және әріптестері (2011) оны төмен PON1 және LOX-1 сигналдарымен байланыстырды. eNOS фосфорлануы, тотығу стрессі және ажырауы маңызды, бірақ әр өзгерген препарат бірдей каскад туғызбайды немесе NO өндірісін міндетті супероксидке ауыстырмайды. Олар CEC-ті толықтырады. Глюкоза мен тамыр зақымы гликемиялық өзгергіштік және тамақтан кейінгі эндотелий әсерлері материалында бөлек талданған.
ApoM-S1P эндотелий түйісулерін, Akt/eNOS-ты қолдап, қабыну жауаптарын шектейді. Мөлшері мен тасымалдаушысы ауруда өзгереді. Бір популяциядағы бірнеше еселік төмендеу барлық дисфункционалды HDL үшін диагностикалық шек болмайды.
HDL реттеуші микроРНҚ да алып жүреді. Tabet және әріптестері (2014) miR-223 берілуін және эндотелий ICAM-1 реттелуін көрсетті. IKK-бета — жасушаішілік киназа, рецептор емес. Нақты ICAM-1 нәтижесі әмбебап макрофаг жолын анықтамайды; жеткізу механизмдері мен нысаналар тікелей дәлелді талап етеді. HDL РНҚ-сының мөлшері мен физиологиялық жеткізілу тиімділігі ашық сұрақ. Бөлінген HDL-де микроРНҚ табылуы клиникалық расталған РНҚ жөндеуін немесе барлық қабынған HDL-де қорғаныштан зиянды микроРНҚ-ға бірдей ауысуды дәлелдемейді.
Бауыр SR-BI эфирлерді тұтас ақуыз бөлшегін міндетті жұтпай таңдамалы сіңіреді. Липид кетуі қалған HDL-ді қайта құрып, айналымға қайтарады, бірақ ол міндетті бір диск не HDL3 түріне айналмайды. CETP арқылы ApoB-ге беру — басқа жанама бауыр жолы. Адамда олар қатар жүреді; кең тараған тышқан модельдерінде адамға тән CETP қызметі жоқ.
Эфирлер кейін бос холестеринге гидролизденуі керек. Бейтарап эстеразалар лизосомадан тыс, лизосомалық қышқыл липаза LIPA лизосомаға жеткен субстратта жұмыс істейді. Барлық таңдамалы HDL эфир гидролизін гормонға сезімтал липаза мен LIPA-ға алмастырылатын ферменттер ретінде телу компартмент айырмасын жояды. Бауырдағы бос холестерин қайта бөлінеді, сақталады, мембранаға жұмсалады, өт қышқылына айналады немесе өтке шығады.
CYP7A1 өт қышқылдарының классикалық синтезін бастайды. Молекула өзгереді, бірақ стероид өзегі бұзылмайды. Басқа ферменттер гидроксилдену мен бүйір тізбек қысқаруын анықтайды. Өт қышқылдарының кері байланысы FXR-ге қатысты бауыр және ішек сигналдарын, адамның ішектік FGF19-ын қамтиды. Кеміргіштегі тікелей LXR→CYP7A1 индукциясын басқа промоторы бар адамға автоматты көшірмеу керек (Goodwin және әріптестері, 2003).
ABCG5/ABCG8 міндетті гетеродимері бейтарап стеролды каналдық мембранадан өтке шығарады және энтероциттің апикалдық мембранасында сіңуді шектейді. BSEP/ABCB11 өт тұздарын экспорттайды, ABCB4 аралас мицеллаларға фосфатидилхолин береді. Субстраттар мен тасымалдаушылар бөлек; ABCG5/8 негізгі сипатталған қызметі өт қышқылын шығару емес.
Ішектегі NPC1L1 тағамдық және өттік холестерин сіңуіне қатысады. Сіңген стерол хиломикрондармен қайтады. Өт қышқылдарының өз тиімді энтерогепатикалық айналымы бар, холестерин сіңуі оның қайта айналымына тең емес. Микробтар холестеринді копростанолға айналдырады, бірақ барлық сіңбеген молекула шығу алдында міндетті өтпейді. Трансинтестиналдық холестерин экскрециясы қосымша жол береді. Нәжістегі стерол бірнеше көзді біріктіреді, артериялық макрофагтың холестеринін автоматты анықтамайды.
SCARB1 генетикасы жоғары HDL-C бұзылған тасымалмен қатар болатынын көрсетеді. Zanoni және әріптестері (2016) сирек P376L функция жоғалтуын, соның ішінде HDL-C өте жоғары гомозиготалы әйелді, және тасымалдаушыларда жоғары коронарлық мүмкіндікті сипаттады. OR 1,79 тек гомозиготаларға қатысты емес. Өзге вариант зерттеулерінде қауіп байланысы басқа. Бұл мысал не LCAT тапшылығы әр HDL-C жоғары адамды проатерогенді деп диагностикалауға негіз емес. Сирек фенотиптер жүк жиналуын ағыннан айырып, генотипке тән белгісіздікті сақтайды.
ApoA-I Milano Arg173Cys алмастыруынан қалыпты жетілген ApoA-I-ге ұқсамай дисульфид байланысын құра алады. Nissen және әріптестері (2003) шағын пилотта бес апта сайынғы ETC-216 инфузиясынан кейін тамырішілік УДЗ бағалады. 57 адам рандомизацияланды, 47 аяқтады. Біріктірілген ем тобы бастапқыдан атерома пайыздық көлемін 1,06 пайыздық тармаққа азайтты; бөлек 4,2% жалпы атерома көлемінің салыстырмалы азаюына қатысты. Бұлар басқа өлшемдер, топ ішіндегі өзгеріс клиникалық оқиғалардағы басымдық емес. Кейінгі Milano формалары бөлек бағаланады: MILANO-PILOT қазіргі ем үстінен қосымша атерома пайдасын дәлелдемеді (Nicholls және әріптестері, 2018).
CSL112 адамның плазмадан алынған ApoA-I-ін фосфолипидпен қайта құрастырады; ол жай рекомбинантты Milano емес. AEGIS-I жалпы және ABCA1-ге қатысты CEC-ті үлкен, уақытша көтеріп, инфаркттан кейін қауіпсіздікті бағалады (Gibson және әріптестері, 2016). Бұл фармакодинамика, бляшканың тез босауын тікелей өлшеу емес.
AEGIS-II жедел инфаркттан кейін жоғары қауіптегі 18 219 науқасты төрт апта сайынғы CSL112 немесе плацебоға бөлді. 90 күндік жүрек-қантамыр өлімі, инфаркт немесе инсульт құрама бастапқы нәтижесі 4,8% және 5,2%; HR 0,93, 95% аралығы 0,81–1,05, P=0,24 (Gibson және әріптестері, 2024). Барлау немесе кейінгі талдаулар оны жалпы расталған көрсетілімге өзгертпейді. Шығудың барлық рөлін теріске шығармайды, бірақ биомаркер көтерілуі автоматты оқиғаларды болдырмайды дегенді шешуші шектейді.
4F/D-4F сияқты қысқа амфипатиялық ApoA-I миметиктері липидпен байланыс пен қабынуды тежеу үшін зерттелді. Таңдалған тотыққан липидке күшті in vitro байланыс әмбебап миллион есе басымдық, адам бляшкасының регрессиясы немесе оқиға тиімділігі емес. ApoJ миметигі туралы жұмыс ApoA-I пептидінің дәлелімен алмастырылмайды. Формула, экспозиция және клиникалық көрсеткіш маңызды.
LXR агонистері тәжірибелік макрофаг ABCA1/ABCG1-ін көбейтеді, бірақ жүйелі белсену SREBP-1c-тәуелді бауыр липогенезін және гипертриглицеридемияны күшейтуі мүмкін. Тінге бағытталған жеткізу және рецептор селективтілігі зерттеу тәсілдері, CEC-тің күнделікті емі емес.
PPAR-альфа ApoA-I, ApoC-III және триглицерид алмасуына әсер етіп, макрофаг LXR бағдарламасымен байланысады. Фибрат алған әр адамға тұрақты 15–25% CEC өсуін телуге болмайды. Нәтижелер тиісті сынақ популяциясында бағаланады. PROMINENT диабет және дислипидемиясы бар 10 497 адамда триглицерид өзгерісіне қарамастан пемафибратпен бастапқы жүрек-қантамыр нәтижесін азайтпады: HR 1,03, 95% аралығы 0,91–1,15 (Das Pradhan және әріптестері, 2022). Басқа липид көрсетілімі бар дәріні расталмаған CEC шегімен қайта мақсаттауға болмайды.
PREDIMED функционалдық ішкі зерттеуі бір жылда жоғары қауіптегі 296 адамды бағалады. Екі жерортатеңіздік диета CEC-ті бастапқыдан көтерді, зәйтүн майымен байытылғаны аз майлы салыстырмамен басқа таңдаулы функцияларды жақсартты (Hernáez және әріптестері, 2017). Тұтас рацион, зертханалық нәтиже және оқиға профилактикасы — байланысты, бірақ бөлек сұрақтар. Бір фенол барлық пайда береді не клиникалық әсер CEC арқылы жүреді деген дәлел емес.
REDUCE-IT рецепттік икозапент этилді таңдалған популяцияда сынап, жүрек-қантамыр пайдасын көрсетті (Bhatt және әріптестері, 2019). Оны ABCG1 шығуы, CETP субстрат азаюы немесе HDL мембранасының сұйықтығы туғызғаны дәлелденбеген. Еркін EPA/DHA қоспаларына автоматты таралмайды. Липид қосылуы, триглицерид әсері және бөлшек құрамы ықтимал механизм, жеке өлшем қажет.
Жаттығу мен салмақ басқару липопротеин липолизін, беткі липид тасымалын, инсулин сезімталдығын және қабынуды өзгертеді. HDL/CEC өзгеруі мүмкін, бірақ жауап жаттығуға, популяцияға және әдіске тәуелді. Міндетті жоғары қарқынды режим не кепілді пре-бета қалпына келуі анықталмаған. Жалпы денсаулық негізі бір зерттеу индексіне жетуді талап етпейді.
Zhu және әріптестері (2014) гиперхолестеринемиялы 122 адамда тазартылған антоциандарды 320 мг/тәулік, 24 апта зерттеп, PON1 мен шығуға қатысты өзгерістерді хабарлады. Жұмыс The Journal of Clinical Endocrinology & Metabolism-де жарияланды. Зерттеу дозасы, зертханалық көрсеткіш және таңдалған популяция жалпы жүрек-қантамыр профилактикасына рецепт емес. Бұл зерттеуде CEC өзгерісі антоциандар тобында 20,0%, плацебода 0,2% болды; бұлар зертханалық көрсеткіштің салыстырмалы өзгерістері, жүрек-қантамыр оқиғаларының азаюы емес.
Кверцетин, куркумин, ликопен, Q10 коэнзимі, анар қосылыстары, ресвератрол және N-ацетилцистеин әртүрлі жасуша, жануар немесе адам жүйесінде зерттелді. AhR/PON1 не PPAR/LXR/ABCA1 әсерлері нақты қосылыс, экспозиция, форма және модельмен көрсетілуі тиіс. Оларды біріктіру артериялық HDL-ді жөндейді, Tyr192/Met148 өзгерістерін in vivo тоқтатады немесе CEC арқылы оқиғаларды азайтады деген дәлел емес. Биожетімділік пен дәрілік әрекеттесу жасушадан тікелей көшірмені шектейді. Пиперинмен экспозиция өсіру қауіпсіз нысаналы әсер емес.
Куркумин/пиперин, анар, жоғары дозалы омега-3, NAC және ресвератролдың әмбебап жиынтығы CEC жөндеуі ретінде расталмаған. HOMA-IR 2-ден төмендігі де HDL қалпына келуінің әмбебап шарты емес. Инсулинге төзімділік, темекі, бүйрек ауруы және қабыну өз дәлелдерімен клиникалық басқаруды қажет етеді; CEC жергілікті расталған әдіс жауап бере алатын сұраққа ғана қолданылады.
| Өлшем | Не қосады | Маңызды шегі |
|---|---|---|
| Жалпы CEC немесе нормаланған индекс | Нақты жасуша/таңбадағы акцептор жұмысы | Әмбебап сау аралық не араласу шегі жоқ; бүкіл кері тасымал емес |
| ABCA1 компоненті | Нақты стимул мен бақылаудағы операциялық баға | Бірлік және салыстыру көрсетіледі; автоматты сағаттық жылдамдық емес |
| ApoA-I және HDL-C | Ақуыз мөлшері және холестерин жүгі | Тұтас функцияны диагностикаламайды; зертхана/популяцияға тәуелді |
| PON1 белсенділігі | Аталған субстрат гидролизі | Субстрат, температура, генотип пен бірлік маңызды; антиоксиданттық функция кеңірек |
| SAA | Жедел немесе созылмалы қабыну | Жалғыз өзі бұзылған CEC не бірдей зиянды HDL-ді дәлелдемейді |
| ApoA-I хлортирозин/карбамиллизині | Химиялық өзгерістің арнайы дәлелі | Плазма мен зақым бөлек; әмбебап ем шегі жоқ |
| HDL-мен байланысты S1P | Таңдалған сигналдық жүк | Бөлу мен нормалау маңызды; күнделікті тиімділік нысанасы емес |
HDL-C 2,3 ммоль/л сияқты шартты шектен жоғары болса, бұл жалғыз өзі дисфункция емес. CEC 0,8-ден төмені бір әдістегі салыстырмалы жұмыс, халықаралық ауру шегі емес. PON1, SAA, хлортирозин және S1P әдіс пен популяцияға тән түсіндіруді қажет етеді. Жауапты есеп саннан бұрын әдіс, бірлік, референс, қайталанғыштық және популяцияны көрсетеді.
CEC HDL ғылымын жүктен өлшенетін эксперименттік қызметке бағыттап кеңейтеді. Ең мықты қолданылуы — нақты механизмдік не зерттеу сұрағы. Клиникалық қорғаныс тұтас атерогендік әсер мен тасымал желісіне тәуелді. Әмбебап CEC еміне немесе артерияны тазартуды уәде ететін қоспалар бағдарламасына дәлел әзірге жеткіліксіз.
Бұл баяндаушы ғылыми синтез 2026 жылғы 8 қазанда дайындалды. Тасымалдаушы құрылысы, әдіс түсіндіруі, когорталар және AEGIS-II қамтылған рандомизацияланған араласулар туралы бастапқы жарияланымдар нысаналы тексерілді. Қолжетімді журнал/PubMed аннотациялары популяция мен бастапқы нәтижеге, толық мәтіндер таңдалған механизмдер мен әдіс айырмасына қолданылды. Қолжетімділік әртүрлі; аннотацияны тексеру барлық талдау мен қосымшаны түгел аудиттеу емес. Шолулар қажетті биохимиялық контекст берді.
Бұл жүйелі әдебиет іздеуі немесе GRADE бағасы емес. Тәуелсіз сыртқы рецензия не мақаланың клиникалық валидациясы орындалмады. Жасушалық, жануарлық, бақылаулық және рандомизацияланған деректер ажыратылған. Эксперименттік әсер мен сынақ дозасы өз контекстінде берілген; әмбебап профилактика не расталған CEC ем нысанасын анықтамайды.
Жоқ. Ex vivo акцептор жұмысын бағалайды; бауыр, ішек және таза масса ағыны бөлек.
Әмбебап расталған шек жоқ. Индекс әдіс пен бақылау препаратына тәуелді.
Жүктің мөлшері, барлық функция не ағын емес. Генетикалық және ем нәтижелері әртүрлі.
Әмбебап жиын немесе ем нысанасы анықталмаған. Тәжірибе әсері мен доза клиникалық нәтижені алмастырмайды.