
Берберин і кишковий бар’єр: AMPK, щільні контакти та межі клінічних доказів
Як берберин впливає на AMPK, MLCK, ZO-1 та оклюдин у моделях ушкодження епітелію; фармакокінетика, окремі дані щодо IBS-D і виразкового коліту та межі клінічних висновків.
Як берберин впливає на AMPK, MLCK, ZO-1 та оклюдин у моделях ушкодження епітелію; фармакокінетика, окремі дані щодо IBS-D і виразкового коліту та межі клінічних висновків.
Берберин змінює показники кишкового епітелію в кількох експериментальних системах. Під дією запальних цитокінів, ендотоксину й хімічних індукторів коліту дослідники спостерігали збереження або відновлення окремих показників бар’єра. У механістичних роботах вивчають енергетичний сенсор AMPK, кіназу легких ланцюгів міозину (MLCK), актоміозиновий натяг, білки щільних контактів і мікробіоту. Ці результати не доводять, що добавки берберину лікують «синдром проникного кишківника» в людей. Лабораторна концентрація, доза для гризуна, переносимість людиною та результат при виразковому коліті — різні рівні доказів.
Берберин — четвертинний протобербериновий алкалоїд із постійним позитивним зарядом. Він міститься в рослинах родів Coptis і Berberis, але вміст у коренях, екстрактах і готових продуктах різниться. Його пласке ароматичне ядро та катіонні властивості впливають на розчинність і взаємодію з мембранами, транспортерами й мікробними ферментами. Позначка «рослинного походження» не визначає фармакокінетику чи безпеку: очищений берберин, суміш алкалоїдів і форма для посилення всмоктування можуть доставляти до слизової та кровообігу різну кількість речовини.
Після перорального приймання системна експозиція незміненого берберину зазвичай низька порівняно з прийнятою кількістю. На це впливають обмежене проходження через кишковий епітелій, ефлюкс за участю P-глікопротеїну (ABCB1), метаболізм у кишківнику й печінці та перетворення мікробіотою. Дослідження транспорту й фармакокінетики в щурів допомагають перевірити ці шляхи, але «біодоступність менше 5 %» не є універсальною сталою для кожної людини, форми чи аналітичного методу. Низька концентрація в плазмі також не доводить конкретного мікромолярного рівня вільного берберину біля базолатеральної мембрани колоноцита: речовина може зв’язуватися з вмістом кишки, перетворюватися бактеріями та нерівномірно розподілятися вздовж кишківника.
Мікробний метаболізм може утворювати відновлені й деметильовані похідні; частина метаболітів кон’югується з глюкуроновою кислотою або сульфатом. Декон’югація у просвіті потенційно знову вивільняє вільні форми та змінює тривалість контакту. Порівнюючи дослідження, слід вказувати, чи йдеться про вихідний берберин, метаболіт або складну рослинну суміш. Фітосома чи інша система доставки, яка підвищує системну експозицію, може посилити й позакишкову дію та ризик взаємодій. «Краще всмоктування» автоматично не означає «краще лікування бар’єра». Так само пригнічення ефлюксного транспортера в Caco-2 не виправдовує додавання пацієнту інгібітора P-gp задля збільшення експозиції берберину.
| Система | Де вимірюють експозицію | Що потрібно для перенесення результату на пацієнтів |
|---|---|---|
| Культура Caco-2 або HT-29/B6 | Вільна концентрація речовини в середовищі над клітинами | Активна концентрація у слизовій після реальної дози та травлення |
| Миша з LPS або DSS | Доза на кг і місцева/системна відповідь | Порівнювана експозиція й безпека в людей; інший контекст хвороби |
| Фармакокінетика тварин | Плазма, вміст кишківника, метаболіти | Профілі в людей з урахуванням форми та мікробіоти |
| Людина із ЗХК | Симптоми, ендоскопія, запалення, безпека | Група порівняння, стандартна терапія та достатнє спостереження |
Постійний позитивний заряд берберину сприяє взаємодії з негативно зарядженими молекулами, але ускладнює пасивне проходження крізь ліпідну мембрану. Для системної фармакокінетики важливі розчинення солі, кишковий транспорт, біотрансформація та печінкова екстракція; усе це не зводиться до твердження «не всмоктується». Одні дослідження вимірюють вихідну сполуку, інші — суму з метаболітами; плазмову концентрацію або накопичення в тканині, тому відсотки «абсорбції» не завжди порівнювані. Вільна розчинена молекула, речовина, зв’язана з їжею чи слизом, і загальний аналітичний сигнал у вмісті кишки — різні величини. Для прямого впливу на епітелій важлива фракція, доступна на його апікальній поверхні.
Мікробне відновлення берберину до дигідроберберину може змінювати проходження через мембрану та подальше зворотне окиснення; швидкість залежить від складу мікробіоти. Фармакокінетичні відмінності та механізми, пов’язані з AMPK, докладніше розглянуто в порівнянні берберину й дигідроберберину. Фармакокінетичні порівняння звичайних і частково безмікробних щурів вказують на внесок мікробів у метаболізм, але не доводять такого самого перетворення в людини із ЗХК, яка може приймати антибіотики, месалазин чи інші ліки. Дані про P-gp також потребують обережності: берберин може бути субстратом транспортера й за певних умов його інгібітором. Напрям і клінічна величина ефекту залежать від концентрації та супутніх препаратів. Це підстава досліджувати взаємодії, а не самостійно комбінувати речовини для «посилення» берберину.
Кишковий бар’єр — це не лише контакти. Слиз із MUC2, антимікробні молекули, оновлення епітелію, імунні клітини й мікробіота впливають на потік молекул. В апікальній зоні між сусідніми епітеліальними клітинами клаудини, оклюдин, трицелулін та інші трансмембранні білки утворюють вибіркові шляхи. Каркасні білки ZO-1, ZO-2 і ZO-3 з’єднують частину цих компонентів з актином. Адгезивні контакти з E-кадгерином і катенінами підтримують механіку моношару. Розташування білка в мембрані, його фосфорилювання й обмін можуть бути важливішими за загальну концентрацію в гомогенаті тканини.
Клаудини не бувають просто «хорошими» або «поганими». Клаудин-2 формує парацелюлярний шлях, селективний до катіонів, і може зростати при запаленні, але його функція залежить від ділянки кишківника та стану регенерації. Зниження клаудину-2 в одному досліді не означає виправлення всіх шляхів проникності. Оклюдин переміщується між мембраною й ендосомами; зникнення суцільного забарвлення ZO-1 указує на порушену організацію контакту, але не обов’язково на повне руйнування білка. Твердження, що будь-яке зниження ZO-1 негайно спричиняє повний розпад або обов’язкове протеасомне знищення всіх компонентів, надто категоричні.
Запальні TNF-α та IFN-γ можуть підвищувати експресію довгої епітеліальної ізоформи MLCK і фосфорилювання регуляторного легкого ланцюга міозину II. MLCK переносить фосфат з ATP на MLC, передусім на Ser19; це посилює актоміозинову активність і змінює натяг периюнкційного кільця. Контакт може перебудовуватися, а оклюдин — переходити до ендосом. Ендоцитоз не обов’язково означає незворотне руйнування: після припинення стимулу можливий рециклінг. Праці Shen і Marchiando підтверджують роль MLCK та кавеолін-залежного ендоцитозу оклюдину у відповідних моделях, однак реакцію на берберин слід перевіряти в конкретній моделі.
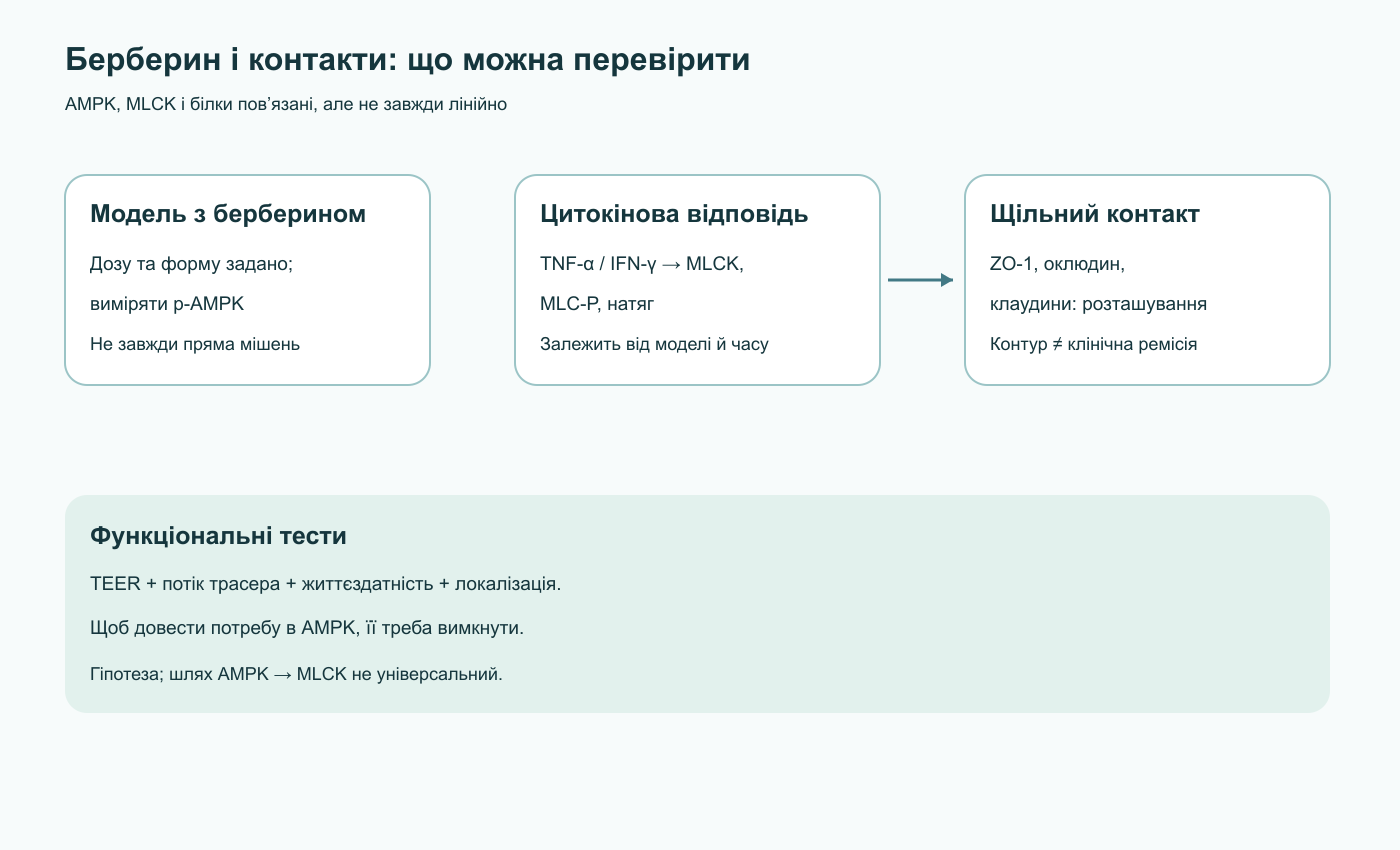
Зниження трансепітеліального електричного опору (TEER) відображає зміну загального іонного струму крізь моношар; на нього можуть впливати загибель клітин і електрогенні транспортери, а не лише щільні контакти. Потік флуоресцеїну чи декстрану показує проникність для вибраного за розміром трасера. Мікроскопія ZO-1/оклюдину показує розташування білків. Життєздатність, проліферація та підрахунок клітин допомагають відрізнити відновлення від простого відновлення моношару. Тести цукрів і дані біопсії в людей автоматично не вказують на берберин як причину поліпшення. Маркер бар’єра — проміжне вимірювання; клінічне лікування потребує симптоматичних, ендоскопічних і безпекових результатів.
Парацелюлярний транспорт включає регульовані вузькі іонні пори та ширший шлях витоку, який може посилюватися під час запалення. Клаудин-2 особливо пов’язаний із катіонною провідністю: зміна його експресії може суттєво змінити TEER, але не обов’язково потік великих молекул декстрану. Клаудин-1 та інші бар’єрні білки мають інший ефект залежно від епітеліального контексту. Тому два трасери різного розміру разом із вимірюванням опору інформативніші за один показник. Секреторна діарея також може виникати через зміну транспорту іонів без «розриву» щільних контактів; її зменшення після берберину може відображати транспортний механізм.
Клітинна лінія часто утворює моношар з іншим набором клаудинів і слизових клітин, ніж інтактна товста кишка. Імунофлуоресценція, біохімічне розділення мембранної та цитозольної фракцій і спостереження рециклінгу в живих клітинах допомагають відрізнити втрату білка від його переміщення. Відновлення суцільного контуру ZO-1 після обробки може бути наслідком виживання клітин або слабшого запального стимулу. Щоб довести прямий вплив берберину на збирання контактів, потрібно порівнювати клітини зі схожою життєздатністю та однаковою силою ушкодження. Важливий і час: введення до TNF-α досліджує профілактику, а лікування вже сформованого коліту ставить інше питання.
AMPK — гетеротример із каталітичної α та регуляторних β і γ субодиниць. γ зв’язує AMP, ADP і ATP; коли енергетичний стан клітини погіршується, AMP/ADP конкурують із ATP та сприяють збереженню активувального фосфату на Thr172 α-субодиниці. LKB1 у комплексі зі STRAD/MO25 і CaMKK2 за кальцій-залежних умов можуть фосфорилювати цю ділянку. Реакція аденілаткінази 2 ADP ⇄ ATP + AMP пов’язує невелику зміну ATP із потенційно помітнішою зміною AMP. Але числове правило вихідного рукопису — падіння ATP на 5–10 % обов’язково дає зростання AMP на 100–300 % — не є універсальним: концентрації залежать від початкового пулу нуклеотидів, компартмента та способу вимірювання.
У клітинних дослідженнях берберин може обмежувати мітохондріальне дихання, зокрема комплекс I, змінюючи співвідношення аденілатів і активність AMPK. Комплекс I переносить електрони від NADH до убіхінону, поєднуючи цей процес із перенесенням протонів. Обмеження потоку може зменшити утворення ATP, але за більшої експозиції також пошкодити клітини. Тому посилення фосфорилювання AMPK не є безумовно «цитопротекторним»: важливі діапазон експозиції та контроль життєздатності. Специфічне зв’язування берберину в каналі ND1/PSST чи «накопичення в сотні разів», виведене лише з вимірювання мембранного потенціалу, не встановлені для ентероцитів за харчової експозиції. AMPK також реагує на запальні, кальцієві та метаболітні сигнали, тому p-AMPK після берберину не визначає первинну мішень.
Щоб довести необхідність AMPK для захисту бар’єра, потрібно поєднати вимірювання p-Thr172 та активності кінази з TEER, потоком трасерів, локалізацією білків і життєздатністю. Інгібування або генетичне зменшення AMPK має усунути ефект, а відновлення — повернути його; треба враховувати позамішеневі ефекти інгібіторів. Якщо берберин і далі поліпшує показники бар’єра при блокованій AMPK, її активація може супроводжувати відповідь, але не бути необхідною. AMPK також не обов’язково прямо регулює MLCK вище за шляхом у кожному типі клітин. Сигналізація цитокінів, енергетичний стан і перебудова контактів можуть перетинатися без єдиного лінійного ланцюга.
AMPK також впливає на синтез ліпідів, аутофагію, оновлення мітохондрій і запальну сигналізацію. Вплив на один із цих процесів може опосередковано змінити показники бар’єра. Потрібно розрізняти твердження «берберин змінює фосфорилювання AMPK» і «AMPK опосередковує ефект на бар’єр». Друге потребує причинного втручання, належного контролю та повторення у відповідній епітеліальній або тваринній моделі.
DSS у питній воді гризунів спричиняє ушкодження слизової та запалення, що залежать від концентрації полімеру, тривалості, мікробіоти, статі й лінії тварин. Це не просто «детергентний лізис» однієї мембрани: первинне ушкодження та подальша імунна відповідь разом формують фенотип. TNBS та оксазолон використовують хімічну гаптенізацію й інші імунні контексти. LPS-ендотоксемію часто спричиняють ін’єкцією, оминаючи звичайний шлях із просвіту кишківника. Тому захист після внутрішньоочеревинного LPS не доводить, що берберин запобігає виразковому коліту після перорального впливу. Модель подразненого кишківника в щура, культура Caco-2 та гострий DSS-коліт також перевіряють різні механізми й результати.
Gu та колеги використовували мишачу ендотоксемію й оцінювали щільні контакти та MLCK; це експериментальний аргумент на користь механізму, проте в початковій бібліографії неправильно вказано журнал та ідентифікатор. Amasheh та колеги досліджували залежну від TNF-α втрату бар’єра в епітеліальному моношарі та тканині щура, зокрема клаудин-1/2; і тут ідеться про прямий вплив заданих концентрацій, а не контрольоване лікування людей. Yan та колеги описали відновлення після DSS-коліту й зниження запальних сигналів у мишей. Ці роботи узгоджуються з можливістю місцевого захисту, але не доводять, що він усюди опосередковується одним механізмом AMPK.
За хімічного коліту зменшення патологічної площі та збереження келихоподібних клітин можуть супроводжуватися рівномірнішим забарвленням ZO-1, більшою кількістю MUC2 і змінами клаудинів. Причинна послідовність неоднозначна: берберин міг послабити початкове запалення, вплинути на бактерії або поліпшити живлення клітин, після чого бар’єр відновився вторинно. Щоб довести прямий вплив на контакти, потрібні окремі часові точки та контроль зі співставною тяжкістю запалення. За однією кінцевою біопсією не можна заявити, що берберин «заблокував протеасому», «активував FAK» і «запобіг EMT»: кожна запропонована ланка потребує окремого втручання й вимірювання.
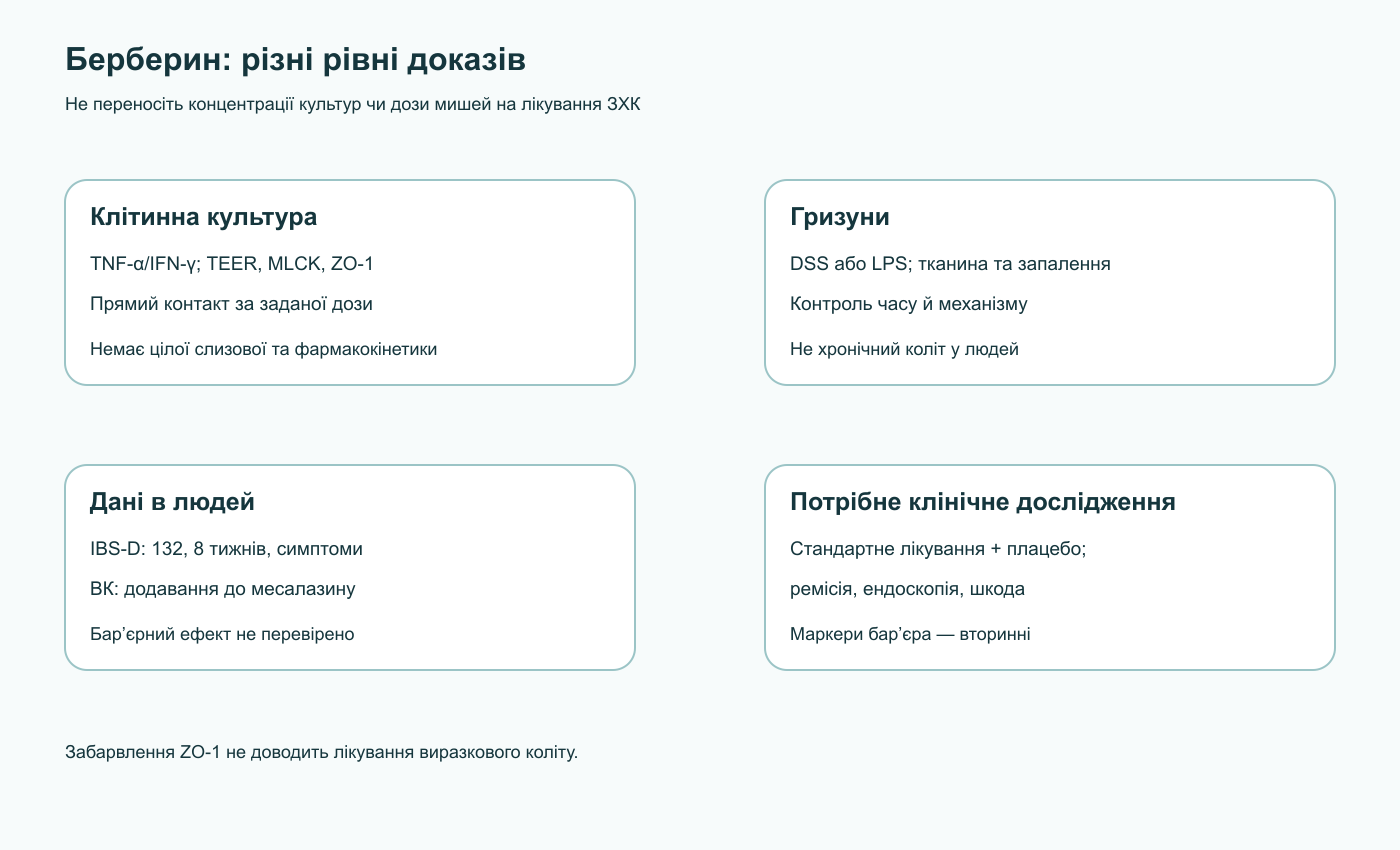
Розділяти результати особливо важливо під час перенесення даних моделі на ЗХК. У мишей оцінюють масу, довжину товстої кишки, гістологію та іноді місцеві цитокіни; у пацієнтів важливі клінічна й ендоскопічна ремісія, рецидиви, потреба в стероїдах, якість життя та шкода. Поліпшення TEER у чашці Петрі не еквівалентне жодному з цих результатів.
TNF-α може підвищувати MLCK через транскрипційні шляхи, а IFN-γ посилює відповідь епітелію; IL-1β та інші медіатори діють через власні рецептори. NF-κB регулює широкий набір запальних генів і виживання клітин, тому зниження його активації не обов’язково є першим кроком захисту берберином. В одних моделях берберин зменшує запальний сигнал, в інших змінюється MLCK/MLC без вимірюваного пригнічення NF-κB. Окиснювальний стрес і шляхи iNOS/NO також залежать від контексту: оксид азоту може бути сигнальною молекулою, тоді як надлишок активних форм азоту пошкоджує тканини. Універсальне твердження «берберин блокує всі цитокіни й радикали» не випливає з окремих дослідів.
Бар’єр та імунна відповідь утворюють петлю зворотного зв’язку. Ушкоджений епітелій пропускає більше мікробних продуктів до рецепторів слизової; імунні цитокіни ще сильніше змінюють контакти. Препарат може перервати петлю на будь-якій ланці, після чого одразу поліпшуються кілька маркерів. Це пояснює, чому кінцеве поліпшення ZO-1, MUC2, кальпротектину та мікробіоти не визначає первинні мішені по порядку. Для з’ясування послідовності потрібні ранні часові точки й блокування кожного запропонованого шляху. За DSS-коліту особливо складно відрізнити прямий антимікробний ефект від епітеліального, адже обидва змінюють вплив бактеріальних продуктів.
У багатьох доклінічних схемах берберин дають до індукції ушкодження або одночасно з DSS. Такий дизайн перевіряє можливий профілактичний захист у заздалегідь відомий момент, тоді як люди зазвичай звертаються після розвитку запалення. Дослідження лікування після початку хвороби потребує іншого часу втручання, контролю початкової тяжкості та оцінювання рецидивів. Гострий DSS-коліт триває відносно недовго; виразковий коліт у людей може тривати роками, з ремісіями, різними ураженими ділянками та попередніми препаратами. Навіть сприятливий короткостроковий результат у мишей не передбачає підтримання ремісії або запобігання раку протягом років.
За відповідного редокс-сигналу Nrf2 виходить з-під контролю KEAP1 і регулює антиоксидантні гени, зокрема HMOX1, що кодує HO-1. SIRT1, NAD⁺-залежна деацетилаза, може перетинатися з енергетичними та запальними шляхами. Це дає змогу дослідити, чи змінює берберин чутливість епітелію до окиснювального ушкодження. Але високий рівень HO-1 у запаленій тканині може бути відповіддю на стрес, а не доказом захисту. Пряма антиоксидантна дія, сигнальна індукція захисного ферменту та зменшення початкового запалення — різні пояснення слабшого сигналу ROS. Щоб їх розрізнити, потрібні часовий ряд, генетичне вимкнення Nrf2/HO-1 і вимірювання окиснювального ушкодження, а не лише експресії.
Каспази-3/7 беруть участь в ефекторній фазі апоптозу; співвідношення антиапоптотичних і проапоптотичних членів родини Bcl-2/Bax змінює ймовірність мітохондріального шляху загибелі. Якщо після берберину в моделі менше активної каспази й більше неушкоджених колоноцитів, це може означати пряму цитопротекцію або просто меншу первинну тяжкість коліту. Вимірювання апоптозу слід поєднувати з проліферацією та регенерацією крипт: блокування всієї загибелі клітин не дорівнює здоровому оновленню епітелію. За тривалого запалення баланс виживання та видалення ушкоджених клітин може мати значення для онкологічного ризику, тому короткий дослід на мишах не доводить хронічної безпеки.
Епітеліально-мезенхімальний перехід (EMT) і фіброз кишківника також не зводяться до зниження E-кадгерину. За хронічного ушкодження беруть участь стромальні клітини, TGF-β, ферменти матриксу й накопичення колагену. Зміна одного маркера в культурі не показує, що берберин запобігатиме стриктурам при хворобі Крона. Для антифібротичного висновку потрібні відповідна модель тривалої хвороби, архітектура тканини й механічні результати. Отже, гілки Nrf2/HO-1, Bcl-2/каспаз і EMT — корисні напрями досліджень, але їх не можна з’єднати в обов’язковий «каскад відновлення» після кожного приймання берберину.
Шлях MLCK–MLC — один із можливих зв’язків між запальною сигналізацією та підвищенням парацелюлярної проникності. Рецептори цитокінів можуть підвищувати експресію або активність довгої MLCK; фосфорильована MLC сприяє периюнкційному скороченню актоміозину. Це може змінювати натяг контакту, перерозподіляти оклюдин і впливати на потік через шлях витоку. У кількох моделях ендотоксину й цитокінів берберин послаблював зміни, пов’язані з MLCK/MLC. Однак у моделі Caco-2 з IFN-γ/TNF-α описано зменшення сигналізації MLCK/MLC без пригнічення NF-κB, тож це не універсальне необхідне пояснення.
Показники щільних контактів відповідають на різні питання. Загальна кількість білка не показує, чи потрапляє він до контакту; суцільне забарвлення не доводить вибіркової функції. TEER чутливий до провідності для малих іонів і стану клітин, а потік трасера оцінює молекулу певного розміру. Поєднання локалізації, кількох розмірів трасера, опору, життєздатності та запальних показників допомагає не тлумачити один сурогат як увесь бар’єр. В організмі маркери сироватки або калу також відображають більше, ніж щільні контакти епітелію, і самі собою не доводять механізм берберину.
Пероральний берберин може контактувати з мікробами у високій місцевій концентрації навіть за низької концентрації в плазмі. Він може змінювати ріст або метаболізм мікробів, а мікроби — перетворювати його та змінювати всмоктування. Обидва напрями можуть існувати одночасно. Антимікробна дія може бути корисною за одних вихідних умов і порушувати екологічний баланс за інших. Штами, раціон і модель коліту можуть суттєво змінити результат.
Akkermansia muciniphila використовує субстрати муцину; у дослідах на тваринах її пов’язували з метаболічним поліпшенням. Зростання її відносної частки після берберину саме собою не доводить причинного відновлення MUC2 чи щільних контактів. Потрібно вимірювати абсолютну кількість, утворення й товщину слизу, запалення та долю епітелію. Дослідження очищених білків Akkermansia або пастеризованих бактерій клінічно не доводять, що берберин «вирощує захисний симбіонт» у кожної людини з виразковим колітом. Для бактерій, що утворюють бутират, також важливі субстрат і місцева концентрація метаболіту, а не лише таксономічний склад.
Мікроби можуть перетворювати берберин і змінювати його абсорбцію; берберин своєю чергою може впливати на бактеріальні ферменти жовчних кислот і сигналізацію FXR. Часто цитоване дослідження мікробіоти та кишкового FXR у людей вивчало метформін, а не берберин; у попередньому рукописі джерело було приписане неправильно. Воно не доводить загоєння бар’єра берберином при ЗХК. Коротколанцюгові жирні кислоти, індоли та жовчні кислоти можуть впливати на епітелій та імунітет, але ланцюг «берберин → один мікроб → один метаболіт → ZO-1 → ремісія» потребує прямого інтервенційного підтвердження. Перенесення мікробіоти від обробленої тварини може підтримати роль перенесеної спільноти в тих умовах, але не визначає людський штам чи дозу.
Фосфоліпідні комплекси, емульсії, наночастинки й кишковорозчинні форми мають різні цілі доставки. Фітосома може збільшити концентрацію в плазмі порівняно зі звичайним берберином у фармакокінетичному порівнянні здорових добровольців; це результат щодо доставки, а не доказ зменшення виразкового коліту. Кишковорозчинна форма або форма з відкладеним вивільненням намагається змінити місце вивільнення та місцевий контакт. У запаленій слизовій розподіл може відрізнятися. Оцінювання має вимірювати вміст активного алкалоїду, профіль вивільнення, плазмові й за можливості місцеві концентрації, метаболіти та переносимість. Дозу звичайної солі не можна механічно переносити на форму з кращим всмоктуванням.
Твердження про фармакокінетичну «синергію» з інгібітором P-gp/ABCB1 потребують особливої обережності. Цей ефлюксний транспортер працює з багатьма ліками, а не лише з берберином. Його блокування може збільшити експозицію супутнього препарату. Вища концентрація берберину в плазмі не гарантує потрібної концентрації в запаленій крипті; навмисна зміна активності транспортера заради нутрицевтика може підвищити ризик взаємодій. Дослідження Caco-2 і щурів пояснюють напрямок наукової роботи, але не задають безпечної комбінованої схеми для людей із ЗХК.
Ранні дослідження берберину з месалазином при виразковому коліті оцінювали переносимість і можливий додатковий ефект; пілотна фаза I не встановлює ефективності стандартного лікування. Пізніший огляд рандомізованих досліджень берберину разом із 5-аміносаліциловою кислотою описав сприятливі симптоматичні результати, але вказав на потребу в якісніших дослідженнях із меншим ризиком систематичної похибки. За комбінованого лікування результат не можна приписати лише берберину. Потрібно чітко повідомляти ендоскопічні дані, дози, стандартизацію продукту, тривалість ремісії та небажані явища. Для хвороби Крона чи неперевіреного «синдрому підвищеної проникності» встановленої схеми відновлення щільних контактів берберином немає.
IBS-D — окремий масив даних. Chen та колеги провели рандомізоване подвійне сліпе плацебо-контрольоване дослідження гідрохлориду берберину в людей із синдромом подразненого кишківника з переважанням діареї. Із 196 залучених учасників рандомізували 132; лікування тривало вісім тижнів після двотижневого початкового спостереження, потім було чотири тижні без лікування. В анотації одночасно зазначено «400 мг на день» і приймання «двічі на день»; без повного протоколу не можна впевнено назвати дозу на один прийом чи вважати її універсальною схемою. Учасники щодня записували частоту діареї, біль, невідкладність позиву та небажані явища; до й після лікування оцінювали шкали симптомів, тривоги/депресії та якості життя. Порівняно з плацебо зменшились частота діареї, біль і невідкладність; автори повідомили про добру переносимість. З анотації неясно, який один результат заздалегідь визначили первинним, тому без протоколу не слід називати його підтвердженням конкретної первинної кінцевої точки. Це клінічний сигнал щодо симптомів IBS-D, а не доказ відновлення ZO-1, користі при ЗХК чи тривалого підтримання ремісії.
Метаболічні результати в людей не є готовим доказом лікування коліту. Глюкоза плазми, ліпіди чи зміни мікробіому не вимірюють структуру кишкового ZO-1. Навіть якщо препарат впливає на AMPK в одній тканині, терапевтичне вікно в запаленій слизовій може бути іншим. Дозу миші в мг/кг не можна перерахувати простим множенням на масу людини: мають значення міжвидові відмінності метаболізму, форма, тривалість та мета експерименту. Вихідний рукопис пропонував універсальний курс і «синергію» з бутиратом, цинк-карнозином і глутаміном без контрольованого підтвердження цієї комбінації; тому його дозування не переноситься у практичні рекомендації.
Нудоту, біль у животі, закреп чи діарею можна сплутати із симптомами коліту. Берберин і деякі форми чи екстракти можуть взаємодіяти з лікарськими транспортерами та ферментами. Невелике дослідження повторного приймання в людей виявило зміну активності окремих CYP; це підстава перевіряти супутні ліки, особливо з вузьким терапевтичним діапазоном, а не припускати однакову взаємодію з усіма препаратами. Вагітність, грудне вигодовування, дитячий вік, значущі хвороби печінки чи нирок та поєднання багатьох ліків потребують окремої медичної оцінки. Відсутність чіткого сигналу гепатотоксичності в невеликій роботі не доводить абсолютної безпеки. Фітосомальна форма з кращим всмоктуванням може мати інший профіль експозиції та потребує власного оцінювання безпеки.
При активній ЗХК рішення про лікування залежать від тяжкості, ендоскопічних і лабораторних показників, ризику ускладнень та доказової стандартної терапії. Берберин не має затримувати оцінювання кровотечі, гарячки, зневоднення чи раптового погіршення. Перспектива дослідження є: перевірити стандартизовану форму як доповнення до звичайної терапії, вимірюючи клінічну ремісію, ендоскопію, маркери бар’єра та небажані явища. Наявні дані підтримують вивчення механізму, але не заміну призначеного лікування чи рутинну «терапію AMPK» на підставі одного тесту проникності.
Дослідження додаткового ефекту берберину при виразковому коліті має починатися зі стандартизованої хімічної форми та аналізу її складу. Учасники повинні отримувати порівнювану доказову базову терапію, а розподіл берберину й плацебо має бути прихованим. До початку слід визначити клінічні й ендоскопічні результати, строки оцінювання, критерії погіршення та моніторинг взаємодій. Тести бар’єра й мікробіоти можуть бути вторинними механістичними вимірами, але не заміною ремісії. Слід повідомляти частку учасників у ремісії, припинення лікування через небажані явища та стійкість результату, а не лише середню зміну шкали. За супутніх ліків із вузьким терапевтичним діапазоном потрібні окремі фармакокінетичні вимірювання.
Такий дизайн допоміг би відокремити полегшення симптомів від загоєння слизової та з’ясувати, чи залежить результат від початкової мікробіоти або тяжкості хвороби. Невелике відкрите дослідження чи об’єднання неоднорідних малих робіт може сформувати гіпотезу, але слабко захищає від ефекту очікування, зміни стандартної терапії та вибіркового повідомлення результатів. Тому навіть сприятливий сигнал комбінації з месалазином поки не встановлює універсальної дози для хвороби Крона, IBS-D або «харчової непереносимості».
Це наративний огляд молекулярних і фармакокінетичних досліджень, клітинних і тваринних експериментів та доступних досліджень за участю людей; спірні первинні записи адресно перевірено 9 жовтня 2026 року. Порівнюються моделі ендотоксемії, цитокінового ушкодження, хімічного коліту та окремі групи пацієнтів із виразковим колітом або IBS-D. Наявність публікацій у різних галузях не означає однакової сили доказів; вичерпного пошуку, метааналізу чи формального оцінювання ризику систематичної похибки не проводили.
Адресна перевірка виправила бібліографічні помилки у ключових роботах про MLCK, DSS-коліт і фармакокінетику, залежну від мікробіоти. Дослідження кишкового FXR, раніше приписане берберину, фактично вивчало метформін. Для IBS-D перевірено дизайн, популяцію, симптоми, зазначені в анотації, та неоднозначне формулювання дози; без повного протоколу непідтверджену первинну кінцеву точку не заявлено. Головне обмеження — мала кількість якісних випробувань у людей з ендоскопічною ремісією та стандартизованими вимірюваннями бар’єра, тому механізм не перетворюється на схему лікування.
Берберин може змінювати показники епітеліального бар’єра в клітинних і тваринних експериментах; найчіткіші результати стосуються окремих умов цитокінового, ендотоксинового та DSS-ушкодження. MLCK/MLC, перебудова клаудинів, оклюдин і ZO-1, AMPK, запальні та мікробні шляхи дають взаємодоповнювальні, але не обов’язково послідовні пояснення. Берберин у просвіті кишки та низька системна експозиція роблять місцевий механізм правдоподібним, однак активна концентрація у слизовій людини та клінічний ефект залежать від форми й контексту. Перехід до лікування ЗХК потребує відтворюваної експозиції, розділення прямої епітеліальної дії та дії через мікробіоту, а потім належно контрольованих результатів у людей. До того часу біохімія AMPK та виразне забарвлення ZO-1 — підстави для досліджень, а не клінічне призначення.
Окремі показники бар’єра поліпшувались у клітинних і тваринних моделях. Це не доводить відновлення кишківника чи ремісії ЗХК у конкретної людини.
В експериментах берберин може обмежувати мітохондріальне дихання та змінювати енергетичний стан, після чого активується AMPK. У кожній моделі слід окремо перевірити, чи потрібна AMPK для ефекту на бар’єр.
Забарвлення показує розташування білків у конкретній тканині або моделі. Для функції потрібні тести потоку та життєздатності, для лікування — клінічний результат.
Розглянуті дослідження не встановлюють єдиної дози для лікування чи підтримання ремісії. Дози тварин і різні форми добавок не можна прямо переносити.
Так. У подвійному сліпому дослідженні 132 людини з IBS-D отримували гідрохлорид берберину або плацебо вісім тижнів; діарея, біль і невідкладність зменшились. Це стосується симптомів IBS-D, а не відновлення контактів чи ефективності при ЗХК.
Ні. Ранні дослідження в людей переважно оцінювали додавання до стандартної терапії; заміна призначеного лікування не обґрунтована.
Невелике дослідження повторного приймання в людей виявило зміну активності CYP. Супутні препарати, особливо з вузьким терапевтичним діапазоном, слід професійно перевірити.