
Кверцетин и лютеолин: сигнальные пути тучных клеток и пределы клинических данных
Как работают рецепторы и кальциевые сигналы тучных клеток, что показывают исследования кверцетина и лютеолина и почему клеточные механизмы не подтверждают прямую блокаду CRAC или лечение MCAS.
Тучные клетки — тканевые иммунные клетки, которые распознают аллергены, некоторые лекарства, сигналы комплемента, повреждения и нейропептиды. После активации они быстро высвобождают гистамин и другие вещества из гранул, а позднее синтезируют липидные медиаторы и цитокины. Кальциевые сигналы, в том числе вход через CRAC-каналы Orai, участвуют в этих ответах. В клеточных и животных моделях кверцетин и лютеолин меняли кальциевую сигнализацию и высвобождение отдельных медиаторов. Это не доказывает, что они прямо блокируют канал Orai1 или лечат синдром активации тучных клеток (MCAS): клиническая база ограничена небольшими исследованиями и не заменяет диагностические критерии и лечение, подобранное врачом.
1. Тучная клетка — тканевой эффектор с несколькими режимами активации
Тучные клетки происходят из кроветворных предшественников, но окончательно созревают в тканях под действием местной среды. Стволовой фактор SCF через рецептор c-Kit (CD117) поддерживает их выживание и развитие. Их набор гранул, рецепторов и ферментов зависит от органа, воспаления, возраста и модели исследования. В учебной литературе часто различают слизистые и соединительнотканные фенотипы: например, по преобладанию триптазы или сочетания триптазы с химазой. У человека эта граница не является неизменной бинарной классификацией; профиль медиаторов может меняться и внутри одной ткани.
Высокоаффинный рецептор FcεRI связывает IgE. Когда подходящий аллерген сшивает соседние рецепторы с закреплённым IgE, запускается один из наиболее изученных путей активации. Однако не всякая активация мастоцита начинается с IgE. MRGPRX2 у человека и родственный Mrgprb2 у мыши распознают ряд лекарств, катионных соединений и нейропептидов; рецепторы C3a и C5a реагируют на сигналы комплемента. Эти пути могут пересекаться на внутриклеточных узлах, но не тождественны и не одинаково представлены во всех популяциях клеток. Поэтому ответ на один стимул в культуре не описывает реакцию на все возможные триггеры.
Гранулы содержат заранее сформированные вещества: гистамин, протеазы, включая триптазу и в зависимости от фенотипа химазу, протеогликаны с гепарином и часть белковых медиаторов. После активации фосфолипиды мембран становятся источником арахидоновой кислоты; циклооксигеназный и липоксигеназный пути образуют, среди прочего, простагландин D₂ и цистеиниловые лейкотриены. Цитокины и хемокины могут синтезироваться позже, хотя время и набор зависят от стимула и ткани. Один лабораторный показатель — например, высвобождение гистамина — не отражает одновременно все эти ветви.
Эти ветви различаются и по времени. Гранулярные медиаторы могут появиться во внеклеточной среде быстро после стимула; образование простаноидов и лейкотриенов требует переработки мембранных липидов, а часть цитокиновых ответов зависит от новой транскрипции и синтеза белка. При этом отдельный медиатор не является специфической подписью одного рецептора: на концентрацию влияют тип клетки, условия культивирования, сила стимула, время забора и аналитический метод. Поэтому результаты по β-гексозаминидазе, гистамину, PGD₂, кальциевому потоку и цитокину нельзя объединять в одно безусловное утверждение «дегрануляция подавлена».
Тучные клетки взаимодействуют с эпителием, сосудами, нервными окончаниями и другими иммунными клетками. В тканевой модели медиаторы способны менять сосудистую проницаемость, зуд, бронхиальную реактивность и сенсорную передачу. Такие механизмы объясняют биологическую правдоподобность симптомов, но наличие тучных клеток рядом с нервом или чувствительность к одному триггеру не устанавливают MCAS у конкретного человека.
2. От рецептора к выбросу медиаторов: роль кальция и CRAC
При FcεRI-зависимом сигнале Src-семейные тирозинкиназы, включая Lyn и Fyn, участвуют в фосфорилировании ITAM-мотивов рецепторного комплекса. К γ-цепям присоединяется Syk, после чего формируется сигнальная платформа с адаптерами LAT и SLP-76. Этот каскад активирует фосфолипазу Cγ. Она расщепляет мембранный PIP₂ на инозитол-1,4,5-трифосфат (IP₃) и диацилглицерол (DAG): IP₃ связывается со своими рецепторами на эндоплазматическом ретикулуме (ЭР), а DAG остаётся в мембране и регулирует ряд последующих ферментных путей.
Высвобождение Ca²⁺ из ЭР по IP₃-рецепторам снижает содержание кальция в просвете ЭР. Белок STIM1 воспринимает это истощение, меняет конформацию и взаимодействует с Orai в плазматической мембране. Открывшийся канал пропускает внеклеточный Ca²⁺; этот вход, называемый store-operated calcium entry (SOCE), включает CRAC-ток. Структурные работы показали архитектуру поры Orai и её активацию STIM-белками. В первичных человеческих лёгочных мастоцитах измерены Orai/CRAC-подобные токи; специфические экспериментальные ингибиторы каналов снижали кальциевый вход и некоторые медиаторные ответы в этой системе. Эти данные подтверждают участие CRAC в FcεRI-зависимой секреции, но не делают его единственным путём кальция или универсальным выключателем дегрануляции.
Кальциевый сигнал помогает перемещать и сливать секреторные гранулы с мембраной, влияет на синтез липидных медиаторов и регулирует транскрипционные ответы. Секреция зависит также от фосфорилирования белков, цитоскелета, SNARE-машины, содержимого гранул и силы/длительности стимула. MRGPRX2 запускает свой рецепторный каскад, который также может повышать внутриклеточный Ca²⁺. Тот факт, что разные стимулы меняют кальциевую концентрацию, сам по себе не показывает, что вмешательство действует непосредственно на Orai: оно может влиять выше по цепи, на высвобождение кальция из ЭР, мембранный потенциал или другие мишени.
Именно здесь исходные утверждения требуют осторожности. В доступных работах о кверцетине и лютеолине измерялись кальциевые ответы, медиаторы или фосфорилирование отдельных белков в клетках и моделях. Эти наблюдения не равны электрофизиологическому доказательству прямого связывания флавоноида с порой Orai1, определению участка связывания, селективности к Orai по сравнению с другими каналами или подтверждению терапевтического действия у человека. Канал CRAC — правдоподобная часть клеточного контекста, но формулировку «кверцетин/лютеолин — прямые блокаторы CRAC» использовать нельзя.
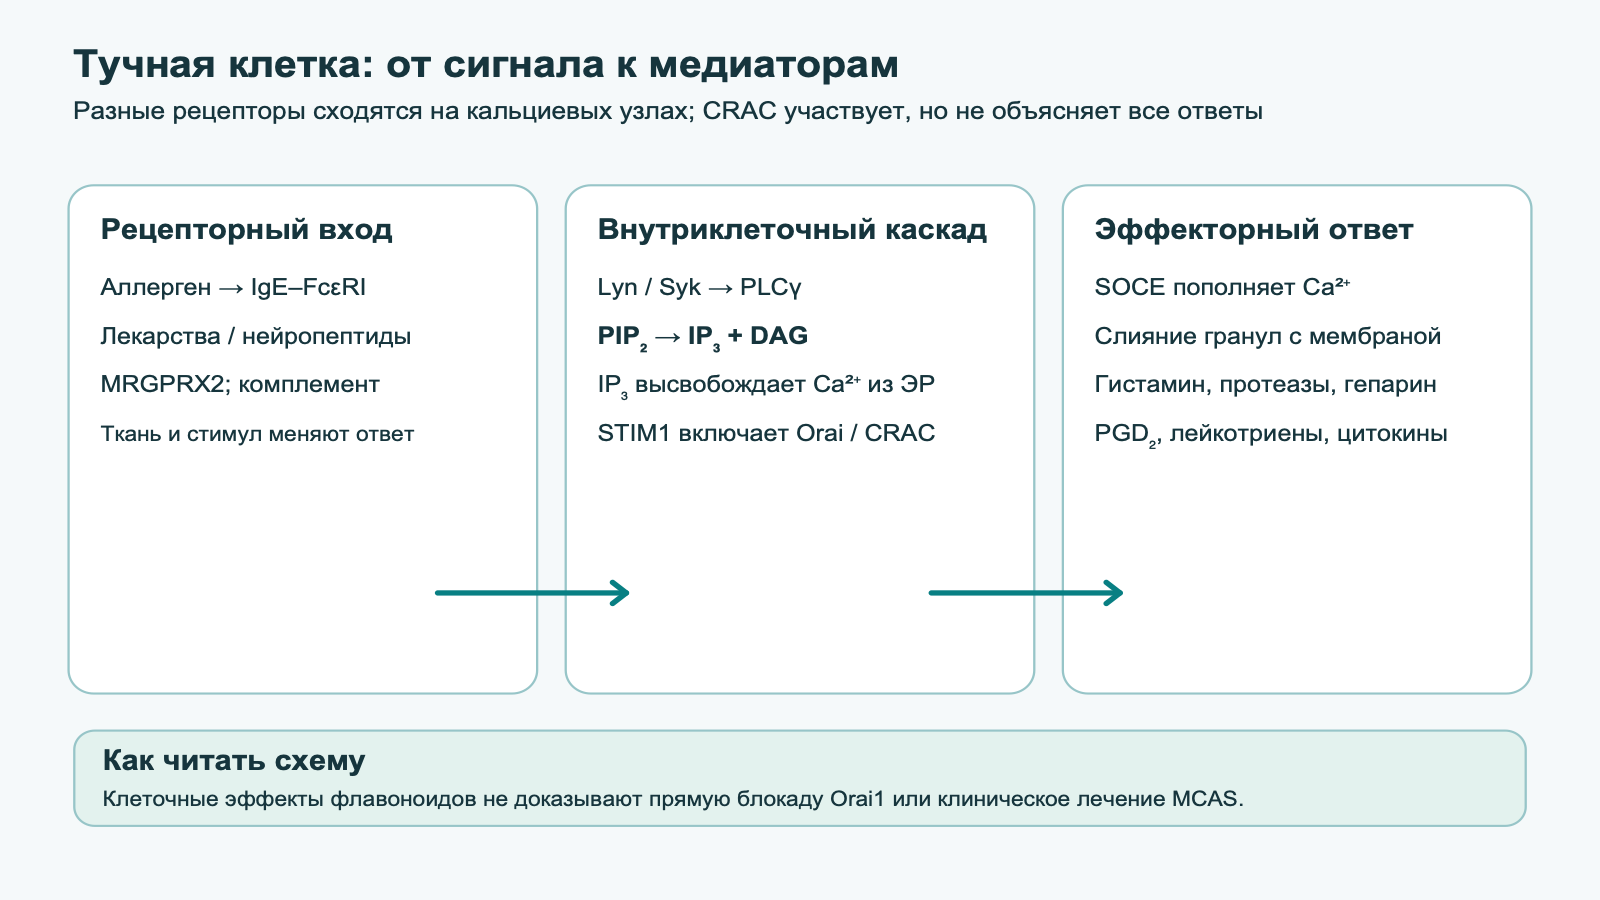
В опытах измеряют либо внутриклеточную концентрацию Ca²⁺, либо электрический ток через мембрану, либо последующую секрецию. Только voltage-clamp/patch-clamp измерение при контролируемых условиях непосредственно характеризует ионный ток; изменение кальциевого сигнала при добавлении полифенола само по себе не локализует мишень на поре Orai. Кроме того, состав субъединиц Orai, количество STIM-белков и вклад других каналов зависят от типа мастоцита и конкретного стимула.
3. Что известно о кверцетине и лютеолине в клеточных моделях
Кверцетин — флавонол, лютеолин — флавон. У кверцетина молекулярная формула C₁₅H₁₀O₇ и молярная масса около 302,24 г/моль; у лютеолина — C₁₅H₁₀O₆ и около 286,24 г/моль. У обоих соединений есть гидроксильные группы в ароматических кольцах, включая катехоловый фрагмент. У кверцетина дополнительно есть гидроксил при C3, что отличает флавонолы от флавонов. Такая структура влияет на окислительно-восстановительные свойства и взаимодействия с биологическими мишенями, но сама по себе не указывает, к какому белку молекула присоединяется в живой ткани.
Для кверцетина и лютеолина общими структурными элементами являются двойная связь C2=C3, карбонильная группа в положении C4 и катехоловая пара гидроксилов в кольце B. У кверцетина есть дополнительная 3-гидроксильная группа. Эти признаки влияют на планарность, способность отдавать электроны, полярность и конъюгацию. Это химическое описание не позволяет ранжировать клиническую силу соединений: для вывода о сравнительной активности нужны одинаковые клеточные модели, стимулы, концентрации, время инкубации, конечные точки и контроль растворителя. Значения IC₅₀ из разных лабораторий или по разным медиаторам нельзя сопоставлять как универсальную «мощность» вещества.
В опытах с культивируемыми человеческими мастоцитами эффекты наблюдались при добавлении соединений непосредственно к клеткам. Например, Weng и коллеги сравнивали кверцетин и водорастворимую форму с кромолином в клетках LAD2 и первичных мастоцитах из пуповинной крови. В отдельных протоколах использовались концентрации порядка 100 мкМ и предварительная инкубация около 30 минут; измеряли гистамин, простагландин D₂, лейкотриены, отдельные цитокины, внутриклеточный кальций и перемещение NF-κB. Эффект зависел от клеточной модели и момента добавления: например, предварительная инкубация и добавление вместе с триггером давали разные результаты. Эти лабораторные условия нельзя напрямую переводить в пероральную дозу: свободная концентрация соединения у ткани после приёма пищи или добавки неизвестна и обычно отличается от концентрации в чашке.
Работы с лютеолином также сообщали об изменениях активации клеточных линий и некоторых человеческих клеточных культур. В исследовании 2022 года авторы рассматривали FcεRI- и MRGPRX2-зависимую активацию и связывали эффект с изменениями кальциевой сигнализации и фосфорилирования PLCγ. В мышиной модели введение лютеолина уменьшало некоторые признаки реакции, включая отёк и показатели медиаторов в сыворотке. Мышиная кожа, культивируемая клеточная линия и клинический MCAS — три разных уровня доказательств; результат одного из них нельзя переносить на другой как установленную терапию.
Для кверцетина опубликована и работа о MRGPRX2-зависимой псевдоаллергической реакции. В ней изучались LAD2-клетки, клетки HEK293 с экспрессией MRGPRX2 и мышиная модель. Авторы описали изменения кальциевой мобилизации, дегрануляции и PLCγ–IP₃-рецепторного пути. Молекулярное моделирование контакта и снижение ответа в модели дают гипотезу о механизме, но не заменяют прямого биофизического подтверждения связывания с рецептором и не устанавливают клиническую эффективность.
Значительная часть литературы о «стабилизации мембран» использует термин как удобное описание уменьшения некоторых клеточных ответов. Это не означает, что флавоноид физически укрепляет мембрану, уменьшает её текучесть или одинаково подавляет слияние всех гранул. Для такого вывода нужны прямые измерения свойств мембраны и экзоцитоза, а не только уменьшение количества гистамина в супернатанте. Аналогично результаты по отдельным фосфокиназам, NF-κB, циклооксигеназе или окислительному стрессу в клетке не доказывают комплексную блокаду всех этих мишеней при достижимых концентрациях в организме.
В исходном материале перечислены дополнительные механизмы — изменение текучести мембраны, подавление фосфодиэстераз, каналов TRP и калиевых каналов, ингибирование фосфолипазы A₂, ЦОГ/5-ЛОГ, IKK, NADPH-оксидазы, синтеза PAF и VEGF. Часть этих белков и путей биологически связана с воспалением или кальциевой регуляцией; однако в источниках, на которых основан этот обзор, они не проверялись как единый механизм действия кверцетина/лютеолина в мастоцитах. Нельзя переносить свойства полифенола из другой клеточной системы на тучную клетку или считать результат молекулярного докинга доказательством связывания. Для прямого механистического вывода нужны изолированная мишень или валидированная клеточная система, концентрационная зависимость, контроль специфичности и подтверждение в независимых методах.
| Утверждение | Что требуется измерить | Что позволяет сказать имеющаяся база |
|---|---|---|
| Прямая блокада Orai1/CRAC | Ток ICRAC в patch-clamp при контролируемой активации STIM–Orai, селективность и подтверждение мишени | В клеточных работах есть кальциевые и медиаторные исходы; прямой мишенный механизм флавоноидов здесь не установлен |
| Ингибирование Syk/Lyn/PLCγ | Фосфорилирование и ферментативная активность с подходящими контролями, включая концентрации, достигаемые в ткани | Изменение downstream-сигнала совместимо с несколькими точками воздействия и само по себе не доказывает прямое ингибирование киназы |
| Снижение «текучести» мембраны | Физические измерения мембранного порядка/текучести и прямой анализ экзоцитоза | Снижение отдельных секретируемых маркеров не подтверждает физическую стабилизацию бислоя |
| Блокада PDE, TRP или KCa | Отдельные функциональные тесты канала/фермента в мастоцитах и проверка причинной связи с секрецией | Эти механизмы нельзя приписывать конкретным соединениям на основании общей антиоксидантной или противовоспалительной активности |
| Подавление ЦОГ/5-ЛОГ, PLA₂, ROS, PAF или VEGF | Измерение соответствующего продукта и валидация пути в заданной модели | Измерение только гистамина не описывает липидную фазу, транскрипцию и сосудистые ответы |
Таблица не означает, что перечисленные гипотезы биологически невозможны; она отделяет правдоподобие от установленного механизма. В частности, уменьшение фосфорилирования PLCγ в эксперименте не показывает, связывалось ли соединение с PLCγ напрямую, изменяло ли активность upstream-киназы или влияло на состояние клетки неспецифически.
4. Пероральное поступление и метаболиты
Пища содержит кверцетин преимущественно в формах, связанных с сахарами; состав зависит от продукта и обработки. Гликозиды расщепляются ферментами кишечника или микробиоты в разной степени. После всасывания исходная молекула подвергается конъюгации, в том числе глюкуронированию, сульфатированию и метилированию. Поэтому в плазме циркулирует смесь метаболитов, а не постоянная высокая концентрация свободного агликона, использованная во многих клеточных опытах. На измеряемую экспозицию влияют пищевой матрикс, форма препарата, приём пищи, микробиота, метаболизм и метод анализа.
Фосфолипидные комплексы и другие формуляции могут менять измеряемую фармакокинетику. Исследования фармакокинетики кверцетин-фитосомы показали изменение системного поступления общего кверцетина/его конъюгатов у здоровых добровольцев. Это характеристика конкретной формулы и конкретного исследования; она не доказывает, что свободный кверцетин достигает мастоцитов в той же концентрации, что в клеточной чашке, или что улучшение абсорбции приводит к уменьшению симптомов MCAS. Разные продукты с надписью «липосомальный», «микронизированный» или «фитосома» не взаимозаменяемы без сравнительных данных.
Кверцетин и лютеолин, полученные из обычной пищи, нельзя приравнивать к концентрированной добавке: отличаются дозы, состав и экспозиция. Для лютеолина клинические фармакокинетические данные ограничены; экстраполяция параметров кверцетина на него некорректна.
После приёма кверцетина обнаруживаемые формы зависят от пищевого источника и препарата. В кишечнике гликозиды могут подвергаться гидролизу, а всосавшийся агликон — быстро конъюгироваться; поэтому суммарный показатель «кверцетин» в плазме не равен свободной активной молекуле у мастоцита. Конъюгированные формы могут иметь собственную биологию, но её нельзя автоматически приравнивать к эффекту агликона, добавленного в культуральную среду. Для лютеолина доступных человеческих фармакокинетических данных ещё меньше, а метаболический профиль отличается.
Фитосома, липосома, наночастица и обычный порошок — не взаимозаменяемые способы доставки. Исследование одной коммерческой фосфолипидной формулы может показать изменение AUC или максимальной концентрации относительно конкретного препарата сравнения, но это не устанавливает эквивалентную дозу другого продукта, проникновение в ткань-мишень или клиническую пользу. Для заявления о преодолении гематоэнцефалического барьера требуются прямые данные о мозговой экспозиции; из большей плазменной концентрации такой вывод не следует.
Предложения сочетать кверцетин с витамином C, цинком, бромелаином, DAO или низкогистаминовой диетой также нельзя представлять как единый протокол стабилизации мастоцитов. Эти вмешательства имеют разные предполагаемые мишени, состав продуктов и риски; синергия должна быть показана в контролируемом сравнении конкретных комбинаций. Ни факт присутствия витамина/фермента в комплексе, ни лабораторная антиоксидантная активность не гарантируют лучшего исхода, снижения гистамина или предотвращения приступа. Элиминационные диеты могут ограничивать рацион и требуют индивидуального обоснования и последующей оценки переносимости. Изменение биодоступности — промежуточный фармакокинетический показатель, не доказательство профилактики аллергической реакции и не подтверждение безопасной долгосрочной дозы. Общие различия между пищевыми полифенолами, метаболитами и формами добавок разобраны в материале о полифенолах и человеческих данных.
5. Клинические данные: аллергические симптомы — не MCAS
Человеческие данные о кверцетине включают небольшие пилотные исследования кожи и ограниченное испытание добавки при поллинозе. В работе Weng и коллег десять добровольцев с чувствительностью к никелю проходили повторные кожные аппликационные тесты до и после короткого курса водорастворимого кверцетина; отдельный протокол оценивал кожную реакцию на UVB. Это небольшой открытый внутрисубъектный эксперимент без рандомизированного параллельного контроля. Он может формировать гипотезу о конкретных кратковременных кожных исходах, но не доказывает длительную профилактику, эффективность при всех аллергических болезнях или лечение MCAS.
В рандомизированном плацебо-контролируемом исследовании 66 взрослых с симптомами поллиноза оценивали конкретную кверцетин-фитосому при ежедневном приёме в течение четырёх недель. Авторы сообщили улучшения по некоторым субъективным симптомам и показателям качества жизни. Это клинически более прямой результат, чем клеточный анализ, однако он относится к определённой формуле, конкретной популяции, короткому сроку и симптомам риноконъюнктивита. Испытание не изучало диагностированный MCAS, не сравнивало препараты для лечения мастоцитоза и не устанавливает универсальную дозировку кверцетина.
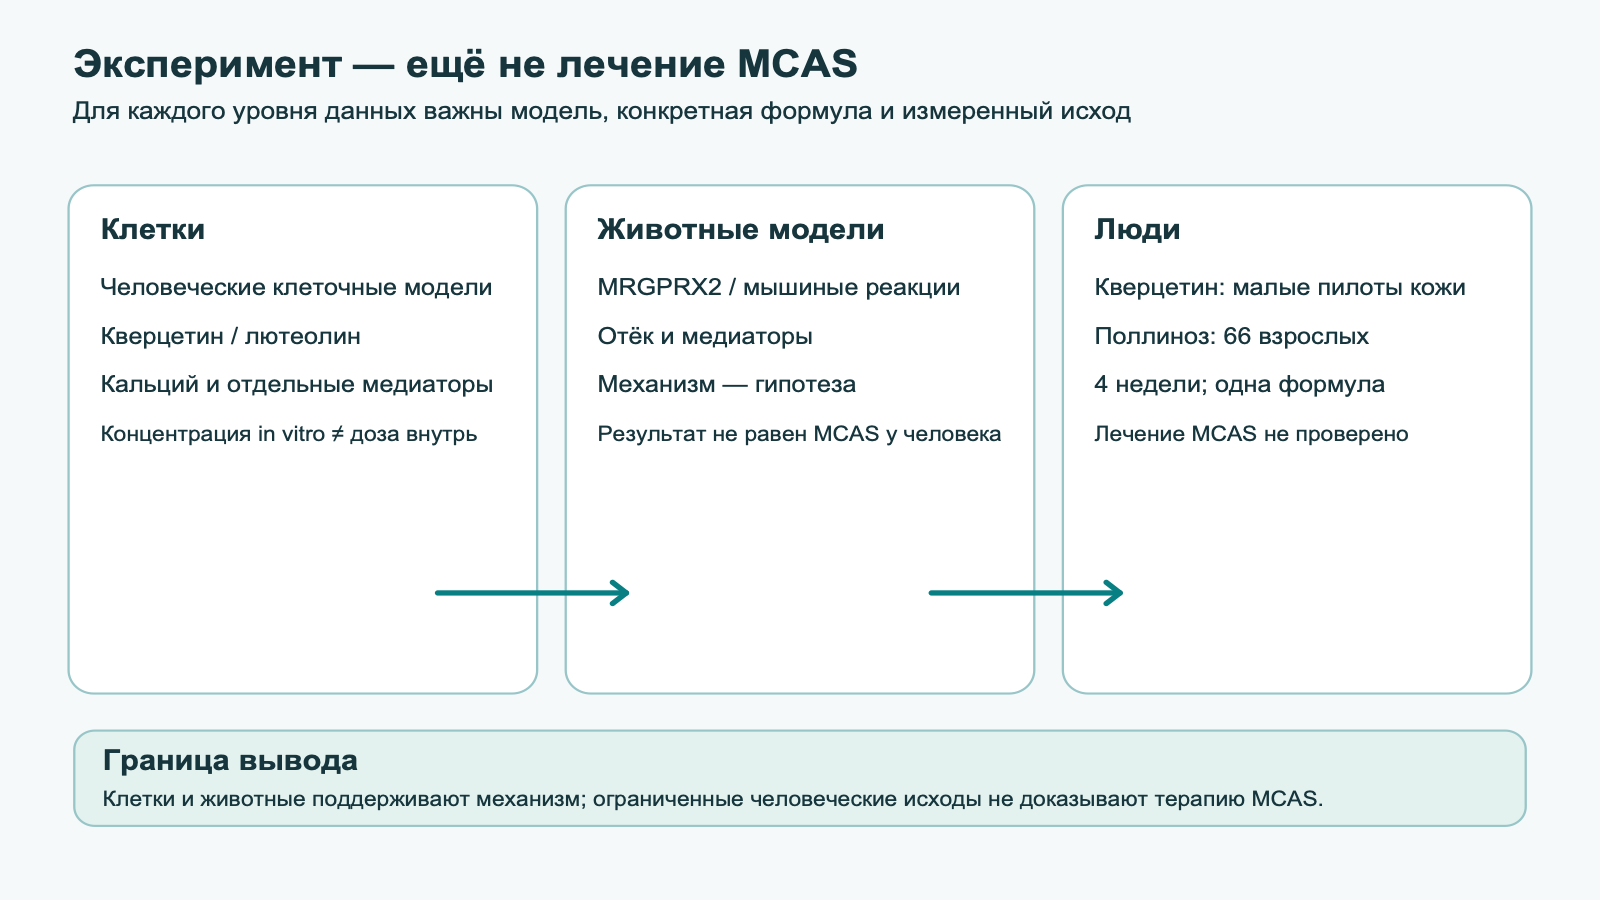
Для лютеолина в рассмотренной базе преобладают клеточные и животные исследования; подтверждённого клинического протокола для MCAS из них не следует. Ни сравнительные концентрации in vitro, ни уменьшение отёка у мышей не означают «превосходство» лютеолина над кромолином, кетотифеном или антигистаминными препаратами в лечении людей. Эти сравнения должны проводиться в соответствующих клинических испытаниях с одинаковыми популяциями, дозами, исходами и контролем.
При синдроме раздражённого кишечника наблюдались ассоциации между слизистыми мастоцитами, нервными структурами и симптомами, а отдельное испытание изучало кетотифен. Это не является исследованием кверцетина или лютеолина и не позволяет переносить эффект одного препарата на другой. Аналогично публикации о лютеолине при нейровоспалении или когнитивных симптомах не превращают лабораторную гипотезу о тучных клетках мозга в подтверждённую терапию постковидного синдрома или ME/CFS.
В клинической практике обсуждение добавки должно быть привязано к установленному показанию и конкретному исходу. Данные при сезонном риноконъюнктивите не отвечают на вопросы о бронхиальной астме, атопическом дерматите, системном мастоцитозе или MCAS. Для симптомов кишечника исследование мастоцитов возле нервов и испытание кетотифена — отдельные линии данных; они не являются испытаниями кверцетина или лютеолина. Для постковидных когнитивных жалоб и ME/CFS здесь нет подтверждённого клинического результата для лютеолина, а предполагаемая доступность мозга не заменяет изучения экспозиции и исходов.
Сравнение с кромолином, H₁-антигистаминными средствами, кетотифеном или омализумабом также требует осторожности. Эти препараты воздействуют на разные звенья и назначаются в рамках клинических показаний. Уменьшение ответа клеток на флавоноид и клинический эффект препарата нельзя сравнивать без прямого исследования с подходящим дизайном, одинаковыми пациентами и заранее определённым исходом. Антигистаминный препарат блокирует действие гистамина на соответствующий рецептор, но не обязательно прекращает высвобождение других медиаторов; наблюдение в клеточной чашке не доказывает, что флавоноид действует «шире» или может заменить назначенное средство.
6. MCAS, мастоцитоз и «гистаминоз»: диагностические границы
MCAS — клинический синдром повторяющихся эпизодов активации мастоцитов, а не синоним хронической крапивницы, аллергии, непереносимости гистамина, синдрома раздражённого кишечника или множества неспецифических симптомов. В консенсусных критериях учитываются характерные эпизодические симптомы с вовлечением нескольких систем, объективное изменение медиатора во время приступа относительно индивидуального базового уровня и клинический ответ на терапию, направленную на медиаторы мастоцитов. Для триптазы применяется правило прироста не менее 20% плюс 2 нг/мл над базальным значением в подходящее время после эпизода; интерпретация зависит от правильного времени забора и клинической ситуации. Критерии разработаны для диагностики, а не для самопроверки по одному анализу.
Системный мастоцитоз — клональное заболевание с отдельными диагностическими критериями; он не тождественен MCAS. Непереносимость гистамина также имеет иной предполагаемый механизм и спорные вопросы измерения/диагностики. Подробнее о границах этой темы — в материале о непереносимости гистамина и DAO. Повышенный гистамин в единичном образце, неспецифическое улучшение после диеты или субъективный ответ на добавку не устанавливают ни одно из этих состояний.
Уменьшение медиатора в клеточной чашке не подтверждает лечение MCAS. В источниках, включённых в этот обзор, нет достаточного рандомизированного клинического доказательства, что кверцетин или лютеолин лечат установленный MCAS, предотвращают анафилаксию или заменяют стандартное обследование. Если есть приступы с нарушением дыхания, отёком языка/горла, обмороком или падением давления, нужна экстренная медицинская помощь; добавки не заменяют назначенный план лечения анафилаксии.
7. Безопасность и разумное применение доказательств
Результат опыта с очищенным веществом нельзя использовать как готовую схему приёма. Для кверцетина встречаются разные соли, гликозиды, комплексы и экстракты; маркировка «эквивалент агликона» и содержание активного вещества могут различаться. Формула, изученная в фармакокинетическом исследовании или испытании поллиноза, не равна любому продукту из розницы. Для лютеолина клинические данные о препаратах и длительном приёме ещё ограниченнее.
Переносимость добавки индивидуальна; возможны желудочно-кишечные симптомы и реакции на вспомогательные компоненты. Высокие дозы и длительное применение требуют особенно осторожной оценки, потому что данные о хронической безопасности у конкретных групп и взаимодействиях неполны. При беременности или грудном вскармливании, хронических заболеваниях, плановой операции либо регулярном приёме лекарств следует обсудить добавку с врачом или фармацевтом; это особенно важно для препаратов с узким терапевтическим диапазоном и для нескольких одновременно принимаемых средств. Не отменяйте и не уменьшайте назначенную терапию из-за лабораторной гипотезы о флавоноидах.
Для клинического решения важны диагноз, цель, измеряемый исход, конкретный продукт, длительность и нежелательные явления. Если врач рассматривает нутритивную добавку как дополнительный вариант, оценивать нужно не только «уровень гистамина», но и частоту/тяжесть конкретных эпизодов, функциональные симптомы и безопасность. Самостоятельное сочетание кверцетина, лютеолина, бромелаина, витаминов, цинка и диаминоксидазы не является доказанным протоколом стабилизации мастоцитов.
8. Методика и границы обзора
Это повествовательный разбор базовой биологии мастоцитов, кальциевого сигнала, экспериментальных работ по кверцетину и лютеолину и ограниченных клинических исследований. 9 октября 2026 года адресно сверены первичные записи, на которых основаны наиболее сильные утверждения исходного текста: кверцетин и человеческие мастоциты/кожные пилоты Weng и коллег, клеточные и мышиные исследования кверцетина через MRGPRX2, работа по лютеолину 2022 года, исследование кверцетин-фитосомы при поллинозе, фармакокинетика фитосомы и функциональные данные Orai/CRAC в человеческих лёгочных мастоцитах. Также проверена публикация с консенсусными диагностическими критериями MCAS.
Адресная сверка исправила неверный PMID основной работы Weng и ошибочный PMID исследования фармакокинетики фитосомы в исходной библиографии. Она не является сплошным независимым аудитом всех 56 записей исходника, систематическим поиском, метаанализом или формальной оценкой риска смещения. Структурные модели, клеточные опыты, животные эксперименты, пилотные исследования кожи и рандомизированное исследование при поллинозе рассматриваются как разные типы данных. В доступных здесь клинических работах не проверялась эффективность кверцетина или лютеолина у пациентов с подтверждённым MCAS.
9. Вывод
Активация мастоцитов проходит через несколько рецепторов и сигнальных путей. SOCE через STIM–Orai/CRAC — один из функционально важных компонентов кальциевого ответа, но доступные клеточные данные о кверцетине и лютеолине не устанавливают прямую блокаду Orai1 и не дают готовой терапевтической дозы. Для кверцетина есть ограниченные данные при симптомах поллиноза и небольшие пилотные кожные наблюдения; для лютеолина клиническая база ещё менее определённа. Ни одно из них не подтверждает лечение MCAS. Решение о диагностике и терапии должно опираться на клинические критерии, объективные данные и проверенные методы помощи.
Частые вопросы
Что делают тучные клетки?
Это тканевые иммунные клетки, которые реагируют на несколько классов сигналов и выделяют медиаторы из гранул либо синтезируют их после активации. Набор рецепторов и медиаторов зависит от ткани и модели.
Кверцетин и лютеолин — прямые блокаторы CRAC/Orai1?
Такой механизм у человека не установлен. В клетках изучали кальциевые ответы и другие звенья сигнала; это не доказывает прямое связывание с каналом Orai1 или клинический эффект.
Есть ли доказательство, что они лечат MCAS?
Включённые клинические данные не подтверждают лечение установленного MCAS кверцетином или лютеолином. Клеточные и мышиные модели нельзя считать испытанием лечения у пациентов.
Изучали ли кверцетин у людей?
Да, но ограниченно: небольшие пилотные кожные исследования и отдельное небольшое испытание конкретной формулы при поллинозе. Эти исходы не отвечают на вопрос о MCAS.
Есть ли клинические испытания лютеолина при MCAS?
В рассмотренной базе преобладают эксперименты на клетках и животных; подтверждённого клинического протокола для MCAS из них не следует.
Можно ли использовать опубликованные клеточные дозы как схему приёма?
Нет. Концентрация в культуральной среде не переводится напрямую в пероральную дозу; абсорбция, метаболизм и тканевая экспозиция различаются.
Чем MCAS отличается от непереносимости гистамина и мастоцитоза?
Это разные состояния с отдельными диагностическими подходами. Для MCAS нужны подходящие эпизодические симптомы, объективные данные об активации медиаторов и клинический ответ на направленную терапию; диагноз не ставят по одному неспецифическому анализу.
Источники
- Galli, S. J., & Tsai, M. (2012). IgE and mast cells in allergic disease. Nature Medicine, 18(5), 693–704.
- Frossi, B., Mion, F., Sibilano, R., Danelli, L., & Pucillo, C. E. (2017). Is it time for a new classification of mast cells? What do we know about mast cell heterogeneity? Immunological Reviews, 282(1), 35–46.
- McNeil, B. D., Pundir, P., Meeker, S., Han, L., Undem, B. J., Kulka, M., & Dong, X. (2015). Identification of a mast-cell-specific receptor crucial for pseudo-allergic drug reactions. Nature, 519(7542), 237–241.
- Siraganian, R. P. (2003). Mast cell signal transduction from the high-affinity IgE receptor. Current Opinion in Immunology, 15(6), 639–646.
- Ashmole, I., Duffy, S. M., Leyland, M. L., Morrison, V. S., Begg, M., & Bradding, P. (2012). CRACM/Orai ion channel expression and function in human lung mast cells. Journal of Allergy and Clinical Immunology, 129(6), 1628–1635.e2.
- Feske, S., Gwack, Y., Prakriya, M., Srikanth, S., Puppel, S. H., Tanasa, B., et al. (2006). A mutation in Orai1 causes immune deficiency by abrogating CRAC channel function. Nature, 441(7090), 179–185.
- Roos, J., DiGregorio, P. J., Yeromin, A. V., Ohlsen, K., Lioudyno, M., Zhang, S., et al. (2005). STIM1, an essential and conserved component of store-operated Ca2+ channel function. Journal of Cell Biology, 169(3), 435–445.
- Hou, X., Pedi, L., Diver, M. M., & Long, S. B. (2012). Crystal structure of the calcium release-activated calcium channel Orai. Science, 338(6112), 1308–1313.
- Hou, X., Burstein, S. R., & Long, S. B. (2018). Structures reveal opening of the store-operated calcium channel Orai. Nature, 562(7728), 539–544.
- Kimata, M., Shichijo, M., Miura, T., Serizawa, I., Inagaki, N., & Nagai, H. (2000). Effects of luteolin, quercetin and baicalein on immunoglobulin E-mediated mediator release from human cultured mast cells. Clinical & Experimental Allergy, 30(4), 501–508.
- Weng, Z., Zhang, B., Asadi, S., Sismanopoulos, N., Butcher, A., Fu, X., et al. (2012). Quercetin is more effective than cromolyn in blocking human mast cell cytokine release and inhibits contact dermatitis and photosensitivity in humans. PLOS ONE, 7(3), e33805.
- Asadi, S., Zhang, B., Weng, Z., Angelidou, A., Kempuraj, D., Skevaki, C., et al. (2010). Luteolin and tetramethoxyluteolin inhibit mast cell activation. Journal of Allergy and Clinical Immunology, 126(6), 1290–1295.
- Kempuraj et al. (2005). Flavonols inhibit proinflammatory mediator release, intracellular calcium ion levels and protein kinase C theta phosphorylation in human mast cells. British Journal of Pharmacology, 145(7), 934–944.
- Ding, Y., Che, D., Li, C., Cao, J., Wang, J., Ma, P., Zhao, T., An, H., & Zhang, T. (2019). Quercetin inhibits Mrgprx2-induced pseudo-allergic reaction via PLCγ-IP3R related Ca2+ fluctuations. International Immunopharmacology, 66, 185–197.
- Hao, Y., Che, D., Yu, Y., Liu, L., Mi, S., Zhang, Y., et al. (2022). Luteolin inhibits FcεRI- and MRGPRX2-mediated mast cell activation by regulating calcium signaling pathways. Phytotherapy Research, 36(5), 2197–2206.
- Yamada, S., Shirai, M., Inaba, Y., & Takara, T. (2022). Effects of repeated oral intake of a quercetin-containing supplement on allergic reaction: a randomized, placebo-controlled, double-blind parallel-group study. European Review for Medical and Pharmacological Sciences, 26, 4331–4345.
- Riva, A., Ronchi, M., Petrangolini, G., Bosisio, S., & Allegrini, P. (2019). Improved oral absorption of quercetin from Quercetin Phytosome, a new delivery system based on food grade lecithin. European Journal of Drug Metabolism and Pharmacokinetics, 44(2), 169–177.
- Manach, C., Scalbert, A., Morand, C., Rémésy, C., & Jiménez, L. (2004). Polyphenols: food sources and bioavailability. American Journal of Clinical Nutrition, 79(5), 727–747.
- Walle, T. (2004). Absorption and metabolism of flavonoids. Free Radical Biology and Medicine, 36(7), 829–837.
- Valent, P., Akin, C., Bonadonna, P., Hartmann, K., Broesby-Olsen, S., Brockow, K., et al. (2019). Proposed diagnostic criteria and classification of basophil and mast cell disorders. Journal of Allergy and Clinical Immunology, 144(4), 938–944.
- Maintz, L., & Novak, N. (2007). Histamine and histamine intolerance. American Journal of Clinical Nutrition, 85(5), 1185–1196.
- Barbara, G., Stanghellini, V., De Giorgio, R., Cremon, C., Cottrell, G. S., Santini, D., et al. (2004). Activated mast cells in proximity to colonic nerves correlate with abdominal pain in irritable bowel syndrome. Gastroenterology, 126(3), 693–702.
- Klooker, T. K., Braak, B., Koopman, K. E., Welting, O., Wouters, M. M., van der Heide, S., et al. (2010). The mast cell stabiliser ketotifen decreases visceral hypersensitivity and improves intestinal symptoms in patients with irritable bowel syndrome. Gut, 59(9), 1213–1221.
- Akin, C. (2017). Mast cell activation syndromes. Journal of Allergy and Clinical Immunology, 140(2), 349–355.
- Weinstock, L. B., Pace, L. A., Rezaie, A., Afrin, L. B., & Molderings, G. J. (2021). Mast cell activation syndrome: a primer for the gastroenterologist. Digestive Diseases and Sciences, 66(4), 965–982.