Фитостеролы доказанно предотвращают инфаркт?
Подтверждено снижение LDL-C. Испытания эзетимиба со статином нельзя переносить на фитостеролы; прямое снижение сердечно-сосудистых событий от обогащённых продуктов не установлено.
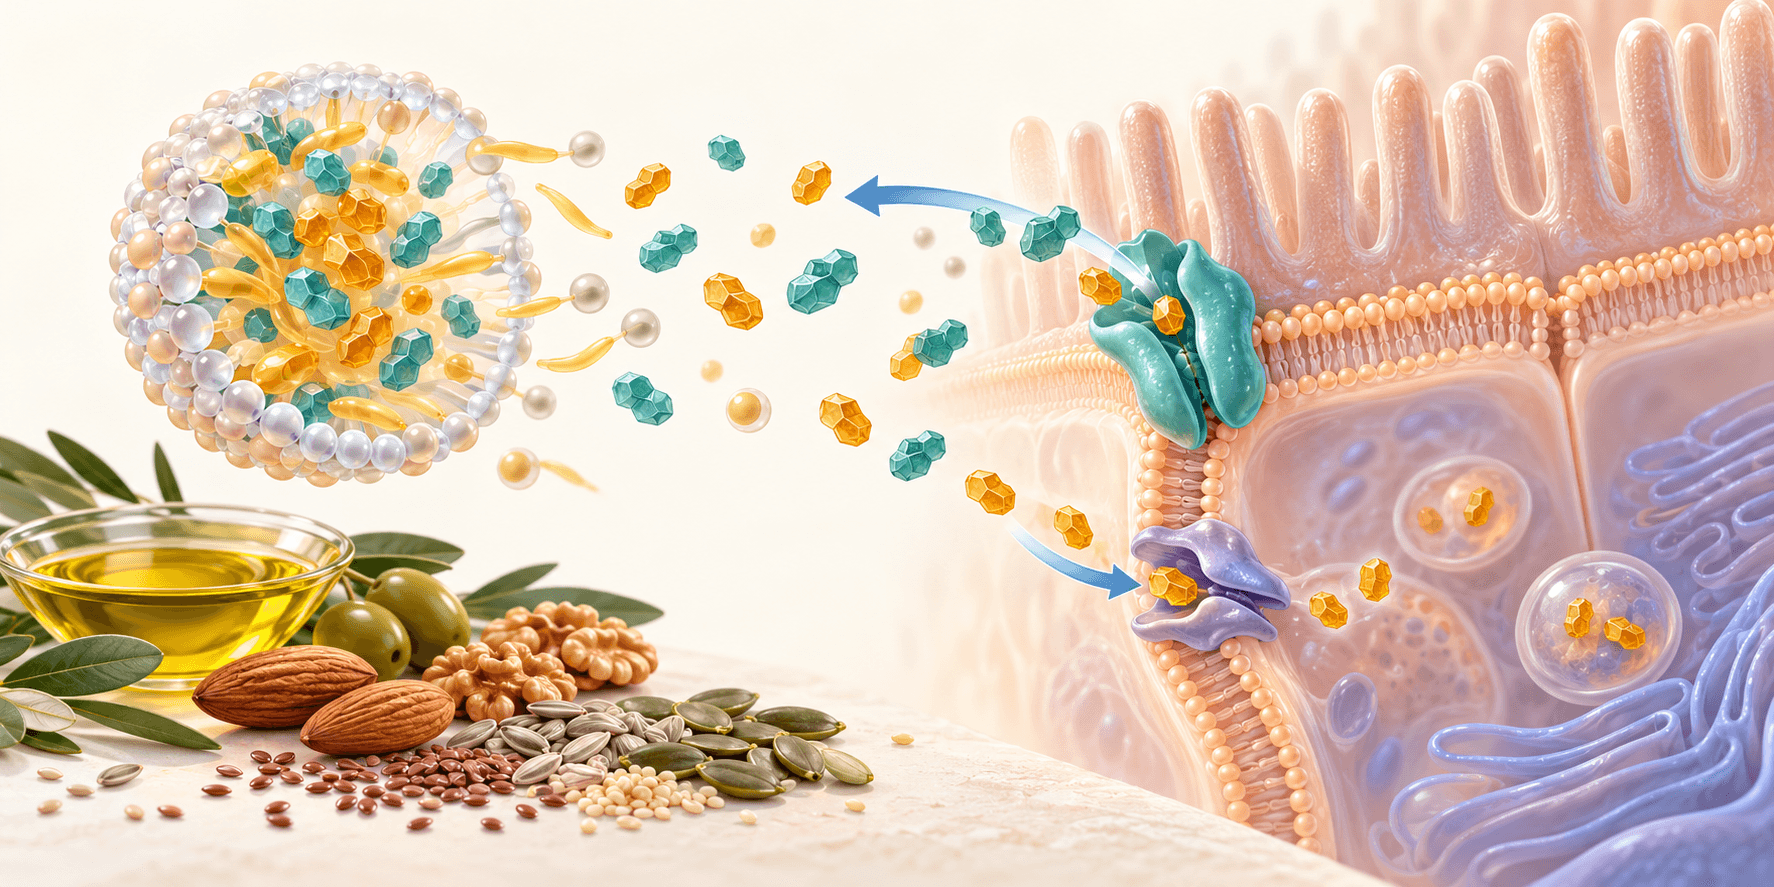
Химическая структура растительных стеролов, конкуренция в смешанных мицеллах, NPC1L1, эффлюкс ABCG5/G8 и печёночная обратная связь. Данные о снижении LDL-C, ситостеролемии, сочетаниях и границах безопасности.
Фитостеролы — растительные липиды, близкие по строению к холестерину. Их насыщенные по связи C5=C6 аналоги называют фитостанолами. Добавление этих веществ к рациону может уменьшать кишечное всасывание холестерина и концентрацию холестерина липопротеинов низкой плотности (LDL-C). Однако снижение лабораторного показателя не равно доказанному предотвращению инфаркта. Эта статья соединяет химическую структуру, физику мицелл, клеточный транспорт и результаты исследований, отделяя экспериментальные модели от клинических выводов.
Животные и растения используют сквален-2,3-эпоксид как предшественник стеролов. Ланостеролсинтаза у животных и циклоартенолсинтаза у высших растений направляют его циклизацию по различным путям. У растений S-аденозилметионин служит донором метильных групп для стерол-C-метилтрансфераз SMT1/SMT2; модификации боковой цепи создают разнообразие фитостеролов. Это различие не означает, что все растения полностью лишены холестерина или что все эукариоты используют один путь.
Стеролы встраиваются в фосфолипидный бислой: гидроксильная группа взаимодействует с его полярной областью, а кольца и боковая цепь располагаются среди ацильных цепей. Они меняют упаковку, проницаемость и фазовое состояние мембраны. В модельных системах возможно сосуществование жидкостно-упорядоченной и жидкостно-неупорядоченной фаз. Мембранные микродомены в живой клетке динамичны; объяснять их одним идеально плоским стерольным каркасом было бы упрощением. Связь состава мембраны с повреждением липидов рассматривается отдельно в статье об астаксантине и мембранном окислении.
Растительные масла, орехи, семена, злаки и бобовые содержат свободные стеролы, их эфиры и гликозиды. Обычное поступление измеряется сотнями миллиграммов, тогда как многие исследования обогащённых продуктов используют граммовые количества. В кишечнике растительные стеролы встречаются одновременно с пищевым и выделенным с желчью холестерином. Поэтому их действие сохраняет смысл даже при небольшом поступлении пищевого холестерина: билиарный пул остаётся существенным.
Исторически гипохолестеринемический эффект ситостерола исследовали с середины XX века. Практическим этапом стало применение станоловых эфиров в пищевой жировой матрице. В годичном рандомизированном исследовании Miettinen et al. (1995) станоловый эфир в маргарине снижал LDL-C; это исследование липидного профиля, а не сердечно-сосудистых событий. Открытия ABCG5/ABCG8 и NPC1L1 позднее объяснили, почему химически близкие стеролы всасываются неодинаково.
Общий стероидный остов состоит из трёх шестичленных и одного пятичленного кольца. У распространённых стеролов присутствует 3β-гидроксильная группа; боковая цепь отходит от C17. У холестерина 27 атомов углерода. Метильная группа при C24 у кампестерола и этильная группа у β-ситостерола увеличивают число атомов углерода до 28 и 29 соответственно. Стигмастерол имеет дополнительную транс-двойную связь C22=C23; брассикастерол сочетает C24-метилирование с этой ненасыщенностью.
| Соединение | Формула | Молярная масса, г/моль | Основное отличие |
|---|---|---|---|
| Холестерин | 386,7 | Связь C5=C6; без дополнительного C24-алкила | |
| Кампестерол | 400,7 | C24-метил | |
| β-Ситостерол | 414,7 | C24-этил | |
| Стигмастерол | 412,7 | C24-этил и C22=C23 | |
| Брассикастерол | 398,7 | C24-метил и C22=C23 | |
| Кампестанол | 402,7 | Насыщенный 5α-аналог кампестерола | |
| Ситостанол | 416,7 | Насыщенный 5α-аналог ситостерола |
Восстановление C5=C6 меняет геометрию A/B-сочленения и локальные конформации, но не делает все кольца плоскими: насыщенные шестичленные кольца сохраняют пространственные конформации. Двойная связь C22=C23 ограничивает вращение именно вокруг этой связи; остальные связи хвоста остаются подвижными. Обозначения R/S зависят от приоритетов заместителей и не заменяются универсальным правилом «все растительные стеролы 24R».
Все перечисленные соединения плохо растворимы в воде. Добавочный алкил влияет на липофильность, кристаллическую упаковку и взаимодействие с мембранами. Однако октанол/вода , водная растворимость, площадь молекулы в монослое и растворимость в желчной мицелле — разные характеристики. Их величины зависят от метода, температуры, формы кристалла и состава среды. Из расчётного нельзя получить универсальное «мицеллярное сродство в 3,5 раза» или клинический процент снижения LDL-C. Поэтому таблица сохраняет проверяемые структурные различия, но не выдаёт неподтверждённые константы за единую экспериментальную матрицу.
При переваривании жиров желчные соли, фосфатидилхолин и лизофосфолипиды, жирные кислоты и моноацилглицеролы образуют смешанные агрегаты. Панкреатическая липаза с колипазой расщепляет триацилглицеролы; фосфолипаза A2 участвует в гидролизе фосфолипидов. В составе химуса сосуществуют мицеллы, везикулы, эмульсионные капли и другие фазы. Единого диаметра, критической концентрации мицеллообразования или отношения стерол/желчная соль для всех приёмов пищи нет.
Мицеллярная солюбилизация делает гидрофобные стеролы доступнее вблизи щёточной каймы. Неперемешиваемый водный слой создаёт диффузионное сопротивление. Мицелла не должна целиком попадать в энтероцит: стерол может обмениваться между агрегатом, водной средой и мембраной. Скорость этого обмена и равновесная вместимость агрегатов определяются не только гидрофобностью, но и молекулярной упаковкой.
Armstrong and Carey (1987) исследовали равновесную растворимость различных стеролов в определённых растворах желчных солей. Mel'nikov et al. (2004) изучали пищевые смешанные мицеллы in vitro. Эти работы поддерживают роль структуры стерола и конкуренции за солюбилизацию, но не доказывают неизбежную последовательность «ситостанол всегда имеет максимальное сродство → весь вытесненный холестерин немедленно кристаллизуется» у человека.
Термодинамику переноса можно описать так:
Здесь — стандартный химический потенциал, — газовая постоянная, — абсолютная температура в кельвинах, — безразмерная константа распределения при согласованном выборе стандартных состояний. Отрицательная означает предпочтение мицеллярной среды в этих условиях. Это не измерение индивидуальной эффективности добавки; не равен автоматически октанол/вода .
Если растворённый холестерин превышает равновесную растворимость конкретной фазы, возможно пересыщение:
и выражены в одинаковых единицах; означает пересыщение. Осаждение, сокристаллизация и образование холестеринового моногидрата физически возможны, но их кинетика зависит от состава и времени. Описанная в моделях желчи кристаллизация не является обязательным клинически установленным этапом каждого кишечного ответа на фитостеролы. Практический вывод осторожнее: они уменьшают доступность холестерина для поглощения и увеличивают выведение неабсорбированных стеролов. Микробиота может преобразовывать часть холестерина в копростанол.
В контролируемом перекрёстном исследовании Racette et al. (2010) 18 взрослых получали рационы с разным содержанием фитостеролов по четыре недели. При 459 и 2059 мг/сут по сравнению с 59 мг/сут фекальное выведение холестерина возрастало, а его абсорбция снижалась; LDL-C достоверно снизился при самой высокой дозе. Это прямое исследование баланса стеролов, но его результаты не задают неизменного 40–60% подавления всасывания для всех продуктов и людей.
Ген NPC1L1 расположен в 7p13 и включает 20 экзонов. Альтернативный сплайсинг создаёт разные изоформы, поэтому длину одной последовательности нельзя объявлять универсальной для всех конструкций. Общая архитектура содержит более 1300 аминокислот и 13 трансмембранных сегментов.
NPC1L1 расположен на апикальной поверхности энтероцитов. У человека белок содержит более 1300 аминокислот и 13 трансмембранных сегментов; имеются стерол-сенсорная область и крупные внеклеточные N-концевой, средний и C-концевой домены. Altmann et al. (2004) показали критическую роль NPC1L1 в кишечной абсорбции холестерина на модели нокаутных мышей. Davis et al. (2004) подтвердили его участие также в поглощении фитостеролов. Такой транспорт не следует описывать как абсолютно неизбирательный: системный результат определяется несколькими последовательными барьерами.
NTD содержит полость связывания стерола. Структура 3QNT характеризует человеческий N-концевой домен. Численные константы диссоциации и перечень остатков требуют указания конкретного белка, лиганда и метода; универсальные значения для холестерина и β-ситостерола здесь не приписываются всем структурам.
Huang et al. (2020) получили крио-ЭМ структуры NPC1L1 крысы: 6V3F для апо-формы и 6V3H с сильным аналогом эзетимиба, ezetimibe-PS. В открытой форме полость NTD доступна; поворот NTD приблизительно на 60° связывает её с внутренним туннелем. Аналог ингибитора перекрывает этот путь. Поэтому «закрытая» доменная конформация не означает, что туннеля вообще нет: он формируется, но занят ингибитором. Работа поддерживает модель переноса стерола к мембране и не является видеозаписью каждого этапа всасывания у человека.
Ge et al. (2008) связали NPC1L1-зависимое поглощение с клатриновым эндоцитозом в клеточной системе. Li et al. (2014) установили, что C-концевой мотив YVNXXF распознаёт адаптер Numb, который участвует в привлечении аппарата клатрина/AP-2. Прямая универсальная связь этого мотива только с μ2 AP-2 была бы неточной. Мембранная доставка, эндоцитоз и возврат NPC1L1 на поверхность — связанные, но различимые процессы; их вклад зависит от модели. Эзетимиб взаимодействует с NPC1L1 и уменьшает абсорбцию, однако нельзя автоматически вывести из структурной работы полную остановку всех клеточных везикул.
У человека NPC1L1 присутствует также на каналикулярной мембране гепатоцитов. Temel et al. (2007) исследовали его влияние на билиарный холестерин, включая трансгенную модель. Это различие между человеческой печенью и обычной мышиной моделью важно при переносе результатов.
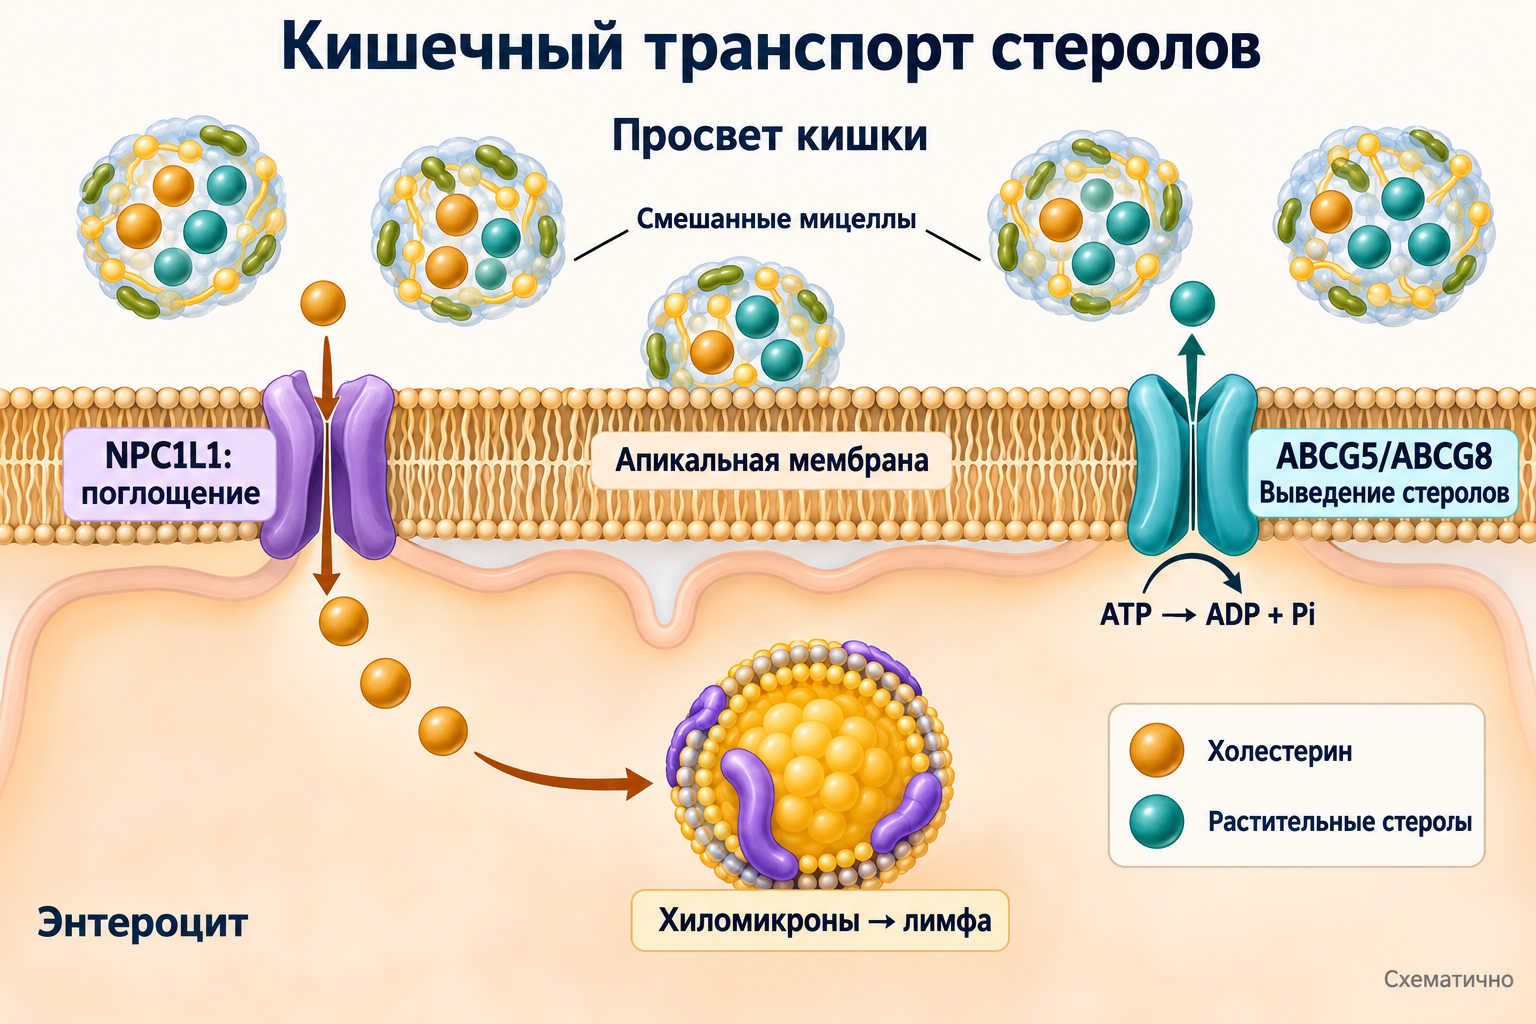
Гены ABCG5 и ABCG8 расположены рядом на хромосоме 2p21 и кодируют два полутранспортера с N-концевым нуклеотид-связывающим и C-концевым трансмембранным доменом. Для правильного транспорта и функции требуется гетеродимеризация. Комплекс находится на апикальной мембране энтероцитов и каналикулярной мембране печени. В первом случае экспорт направлен в просвет кишки, во втором — в желчь; эти направления нельзя менять местами.
Lee et al. (2016) определили структуру человеческого ABCG5/G8 без нуклеотида, 5DO7, с разрешением 3,9 Å. Шесть трансмембранных спиралей каждой субъединицы образуют общий транспортный комплекс. Два составных нуклеотидных сайта каталитически неравноценны: структура и функциональные данные показывают асимметрию, а не две одинаково активные АТФазы. Связывание и гидролиз АТФ сопряжены с изменениями мембранных доменов. Упрощённая запись описывает энергетическую реакцию, но не устанавливает фиксированную стехиометрию «две молекулы АТФ на один стерол».
Комплекс способствует экспорту и холестерина, и растительных стеролов. Приписывать ему исключительно распознавание «чужеродного» C24-алкила по одному статическому карману преждевременно. Его защитная роль доказана генетическими и функциональными экспериментами: нарушение функции резко повышает накопление фитостеролов. Repa et al. (2002) показали регуляцию экспрессии через LXR, а Yu et al. (2002) — усиление билиарной секреции и снижение абсорбции при сверхэкспрессии в мышиной модели. Эти результаты не задают универсального трёхкратного превосходства скорости экспорта фитостерола у человека.
После поступления в энтероцит часть холестерина этерифицируется SOAT2/ACAT2 и включается в ApoB-48-содержащие хиломикроны при участии MTP. Хиломикроны выходят через лимфу в кровоток; ремнанты затем доставляют липиды печени. Небольшая всосавшаяся часть фитостеролов тоже достигает печени, где действует второй экспортный барьер ABCG5/G8. Низкая концентрация в плазме отражает вместе низкую абсорбцию и эффективное выведение, а не абсолютное отсутствие транспорта.
Холестерин обычно всасывается намного лучше растительных стеролов; кампестерол часто всасывается лучше ситостерола, а станолы — ещё хуже. Точные проценты зависят от измерения и вида молекулы. В историческом исследовании Salen et al. (1970) ситостерол всасывался в количестве до 5% поступления, холестерин — 45–54%. Поэтому диапазон «все фитостеролы строго менее 1%» неверен. Значения в единицах мкмоль/л также нельзя называть субмикромолярными: это разные порядки величины.
Биаллельные патогенные варианты ABCG5 или ABCG8 вызывают аутосомно-рецессивную ситостеролемию. Berge et al. (2000) и Lu et al. (2001) связали заболевание с этими соседними генами. Нарушаются и кишечный экспорт, и билиарное выведение. Клинические проявления неоднородны: ксантомы, преждевременный атеросклероз, гемолиз, стоматоцитоз, крупные тромбоциты и тромбоцитопения могут сочетаться по-разному. Холестерин бывает повышенным, иногда существенно; нормальный результат обычного липидного анализа не исключает болезнь.
Липидный профиль не заменяет измерения растительных стеролов методом газовой или жидкостной хроматографии с масс-спектрометрией. Подозрение уточняют генетически. Включение стеролов в мембраны кровяных клеток помогает объяснять гематологические проявления, но набор экспериментальных путей eNOS, NLRP3 и стресса ЭР не следует выдавать за единую доказанную причину всех случаев раннего атеросклероза.
Лечение ведёт специалист: ограничивают избыточные пищевые стеролы и используют средства, уменьшающие всасывание, включая эзетимиб. «Диета без единой молекулы стерола» практически недостижима. В рандомизированном исследовании Salen et al. (2004) 37 пациентов получали эзетимиб 10 мг/сут или плацебо; за восемь недель ситостерол снизился на 21%, кампестерол — на 24% в активной группе. Это не гарантированные 70–85%, не доказательство устранения всех гематологических нарушений и не испытание предотвращения инфаркта. Обогащённые фитостеролами/станолами продукты при подтверждённой ситостеролемии не подходят. Один гетерозиготный вариант требует индивидуальной интерпретации и не равнозначен автоматически биаллельному заболеванию.
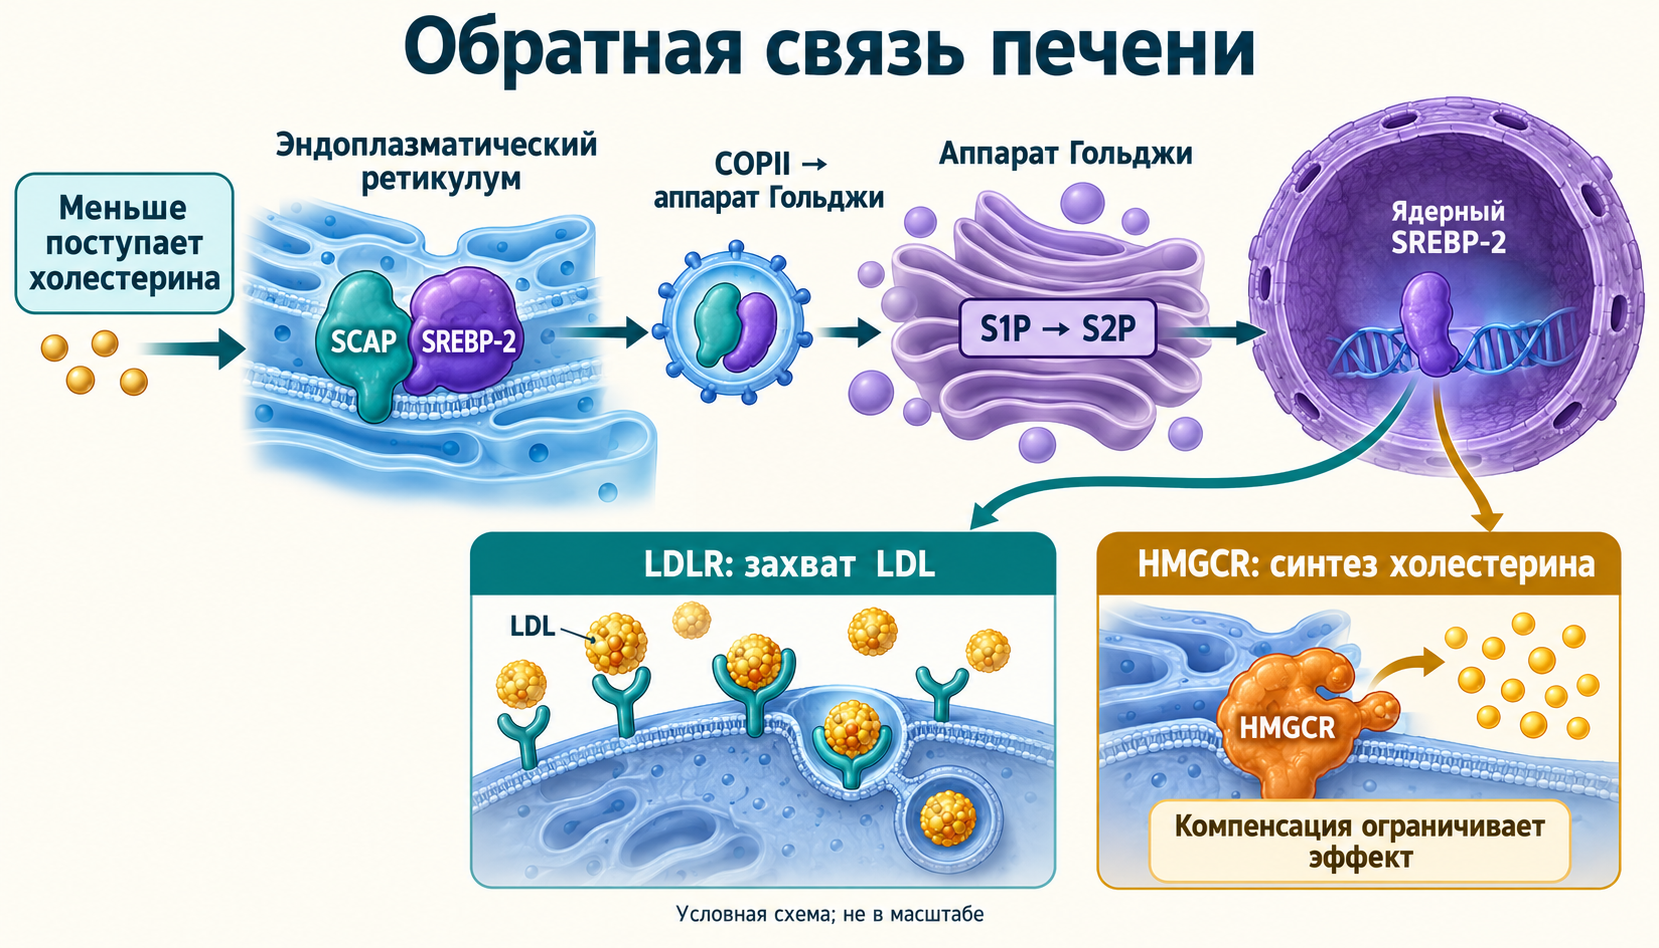
Меньшая доставка абсорбированного холестерина может менять регулируемый печёночный пул. SCAP сопровождает мембранный транскрипционный фактор SREBP-2; при достаточном стерольном содержании комплекс удерживается белками INSIG в эндоплазматическом ретикулуме. При снижении доступного холестерина меняются взаимодействия SCAP и доступность сигнала MELADL для аппарата COPII. Комплекс переносится в аппарат Гольджи, где S1P расщепляет люминальную петлю SREBP, а S2P выполняет внутримембранный протеолиз. Освобождённый N-концевой транскрипционный фрагмент попадает в ядро.
Он активирует программы поглощения и синтеза, включая LDLR и HMGCR. Увеличение LDL-рецепторного клиренса может снижать LDL-C, а компенсаторный синтез частично ограничивает эффект. Radhakrishnan et al. (2008) показали переключение транспорта SREBP-2 при изменении холестерина ЭР около 5 мол.% в клеточной модели. Это экспериментальный сенсорный порог, а не клинический анализ и не доказательство, что 2 г фитостеролов у каждого человека опускают печёночный холестерин ниже него. Аналогично конкретные проценты роста LDLR или синтеза нельзя приписывать всем потребителям.
Статины подавляют HMG-CoA-редуктазу, эзетимиб действует на NPC1L1, а растительные стеролы меняют доступность холестерина в кишечном содержимом. Разные точки воздействия объясняют возможность дополнительного снижения LDL-C, но термин «синергия» требует специального анализа взаимодействия. Другие способы регуляции LDL-рецептора и PCSK9 разобраны в статье о берберине и дигидроберберине.
В мета-анализе Ras et al. (2014) объединены 124 исследования, 201 сравнение по стратам. При поступлении 0,6–3,3 г/сут среднее снижение LDL-C постепенно увеличивалось примерно от 6 до 12%; эффект рос до около 3 г/сут. Исследования выше 4 г/сут были немногочисленны и не объединялись в надёжную отдельную оценку. Demonty et al. (2009) также моделировали непрерывный дозовый ответ. Эти данные поддерживают умеренное снижение LDL-C при граммовых дозах, но не жёсткое плато ровно при 2–2,5 г.
Насыщающая функция может использоваться как эмпирическая модель:
— количество свободных стерольных/станольных эквивалентов в г/сут, — снижение LDL-C в процентах, — модельный предельный эффект, — доза половины этого эффекта. Это форма Emax-модели; она не доказывает ферментативную кинетику Михаэлиса–Ментен внутри мицеллы. Без установленного набора параметров формула не рассчитывает индивидуальную дозу. Для перевода относительного эффекта в концентрацию нужен исходный LDL-C: снижение на 10% при 3,0 ммоль/л соответствует 0,30 ммоль/л, а при 5,0 — 0,50 ммоль/л.
Стеролы и станолы при обычных изученных дозах дают сопоставимые средние LDL-эффекты. Более низкое всасывание станолов не доказывает нулевого риска. Изменения non-HDL-C и ApoB могут сопровождать изменение LDL, но результаты по триглицеридам зависят от исходного состояния; универсальные проценты для каждого липопротеина не оправданы.
Добавление к статину может дополнительно снижать LDL-C, однако сравнивать это с «тремя удвоениями дозы статина без токсичности» некорректно. Препараты различаются по мощности, дозовому ответу и доказательствам исходов. При высоком риске пищевой продукт не заменяет лечение с установленной клинической пользой.
В исследовании Lin et al. (2011) 21 участник прошёл три трёхнедельных периода: контроль, эзетимиб 10 мг/сут и эзетимиб плюс 2,5 г/сут фитостеролов. Средний LDL-C составил соответственно 129, 108 и 101 мг/дл; комбинация усиливала влияние на баланс холестерина. Это небольшое короткое исследование, без статина в сравниваемой схеме и без сердечно-сосудистых событий. Оно не устанавливает универсальную прибавку 4–7% к любой тройной терапии. Испытание IMPROVE-IT (Cannon et al., 2015) изучало эзетимиб со статином после острого коронарного синдрома; его доказательства нельзя переносить на добавку фитостеролов.
Этерификация по гидроксилу облегчает включение стерола в пищевую жировую матрицу. Масса эфира включает жирную кислоту; «2 г эфиров» и «2 г свободных стерольных эквивалентов» не являются одним количеством. В пищеварительном тракте карбоксилэстерлипаза участвует в гидролизе эфиров. Концептуальная реакция:
обозначает углеводородную часть жирной кислоты. Дисперсия, состав матрицы и гидролиз влияют на доступность свободного стерола в просвете. При этом хорошо сформулированные свободные стеролы тоже эффективны: Richelle et al. (2004) сравнили обе формы в напитке у 26 мужчин и обнаружили сходное снижение абсорбции холестерина. Низкая водная растворимость сама по себе не делает каждый свободный стерол неработающим.
В той же краткой перекрёстной работе уменьшалась биодоступность β-каротина и α-токоферола. Это показатель усвоения в конкретном эксперименте, а не автоматический диагноз витаминного дефицита. При анализе плазменного токоферола полезно учитывать снижение липопротеинов-переносчиков. Разные каротиноиды отвечают неодинаково; утверждение «витамины A, D, K никогда не меняются» слишком категорично. Разнообразные овощи и фрукты помогают поддерживать поступление каротиноидов, но одна порция не гарантирует полного предотвращения изменений у каждого человека.
Приём с едой помогает включению вещества в пищеварительные агрегаты. Пищевой жир стимулирует холецистокинин, желчеотделение и секрецию панкреатических ферментов, однако из этого не следует универсальный минимум 10–15 г жира или полное отсутствие желчи натощак. Важны изученная формула и её инструкции; увеличивать жирность рациона только ради добавки не требуется.
| Ситуация | Что означает доказательство |
|---|---|
| Повышенный LDL-C у взрослого | Обогащённый продукт может дать умеренное дополнительное снижение в составе рациона; решение учитывает общий риск |
| Уже назначен статин или эзетимиб | Возможен дополнительный липидный эффект, но цель и сочетание согласуют с лечащим специалистом |
| Подозрение на семейную гиперхолестеринемию у ребёнка | Требуется специальная диагностика; пищевой продукт не заменяет терапию и не задаёт единого детского режима |
| Ситостеролемия | Следует избегать обогащённых стеролами/станолами продуктов и лечить нарушение транспорта |
| Беременность, лактация, маленький ребёнок | Недостаток данных для самостоятельного назначения обогащённых продуктов; обычные растительные продукты не приравнивают к добавкам |
Для оценки ответа обычно повторяют липидный профиль после нескольких недель стабильного режима, учитывая изменение питания, лекарств и приверженности. Отсутствие реакции не доказывает дефект NPC1L1; повышенные плазменные растительные стеролы тоже не являются простым самостоятельным тестом «избыточного всасывания» без клинического контекста.
Главное ограничение доказательств — преобладание коротких исследований липидов. Надёжного испытания, устанавливающего снижение инфарктов или смертности именно от обогащения фитостеролами, здесь нет. Генетические заболевания, наблюдательные ассоциации циркулирующих стеролов и животные эксперименты дают сведения о механизме и потенциальных рисках, но не заменяют такого испытания. Научно обоснованная позиция сочетает подтверждённое LDL-снижение, многокомпонентный кишечный барьер и честную неопределённость долгосрочных исходов.
Подтверждено снижение LDL-C. Испытания эзетимиба со статином нельзя переносить на фитостеролы; прямое снижение сердечно-сосудистых событий от обогащённых продуктов не установлено.
Они всасываются значительно хуже холестерина и многих стеролов, но низкая абсорбция не равнозначна абсолютному нулю или доказанному отсутствию риска.
Нет. Важны дисперсия и пищевая матрица; в рандомизированном исследовании напитка свободные и этерифицированные стеролы сходно уменьшали абсорбцию холестерина.
Универсальной индивидуальной дозы нет. Средний эффект возрастает до около 3 г/сут; более высокие дозы исследованы хуже и не обосновывают самостоятельное увеличение.
При подтверждённой ситостеролемии их избегают. Для беременности, лактации и маленьких детей недостаточно данных для самостоятельного назначения.