
Кортизол и инсулин: механизмы накопления висцерального жира
11β-HSD1, H6PD, липидные потоки и тканевые эффекты кортизола: что показывают клеточные, животные и человеческие исследования и где заканчивается основание для лечения.
Кортизол и инсулин регулируют распределение энергетических субстратов совместно, хотя отдельные их эффекты часто направлены противоположно. Инсулин помогает запасать энергию после еды и подавляет мобилизацию жира. Глюкокортикоиды поддерживают доступность глюкозы и могут усиливать липолиз, но также участвуют в созревании адипоцитов и изменяют их ответ на инсулин. Поэтому хронический избыток глюкокортикоидов способен сочетать увеличение центральных жировых депо с потерей мышечной ткани. Из этого, однако, не следует, что любое увеличение талии вызвано избытком кортизола или что нормальная секреция инсулина после еды патологична.
Внутриклеточная доступность кортизола зависит не только от надпочечников. Фермент 11β-гидроксистероиддегидрогеназа типа 1, 11β-HSD1, может восстанавливать кортизон до кортизола непосредственно в ткани. Это важный механизм пререцепторной регуляции: концентрация гормона в крови и сила его действия в конкретной клетке не совпадают автоматически. Мышиные генетические модели показывают, что усиление этого механизма в жировой ткани способно вызвать неблагоприятный метаболический фенотип. Человеческие исследования дают более неоднородную картину, а испытания ингибиторов не превратили 11β-HSD1 в универсальную лечебную мишень ожирения.
Материал рассматривает надпочечниковый синтез гормона, ферменты 11β-HSD1/2, эндоплазматический ретикулум, липопротеинлипазу, внутриклеточный липолиз, взаимодействие жира с печенью и сосудами, стресс, сон и вмешательства. Это целевой научный разбор с проверкой ключевых первичных исследований, а не систематический обзор или индивидуальная схема лечения.
1. От стрессового сигнала к кортизолу
Гипоталамус, гипофиз и кора надпочечников
Парвоцеллюлярные нейроны паравентрикулярного ядра гипоталамуса выделяют кортикотропин-рилизинг-гормон, CRH, и вазопрессин, AVP, в гипофизарную портальную систему. В кортикотропах передней доли гипофиза CRH действует через CRHR1 и преимущественно путь Gs–аденилатциклаза–цАМФ–PKA; AVP через V1b использует Gq–фосфолипазу C–IP3–кальций. Эти сигналы взаимодействуют при синтезе и высвобождении ACTH. Предшественник POMC расщепляется, в частности, прогормон-конвертазой PC1/3; образовавшийся ACTH стимулирует надпочечники.
В пучковой зоне коры ACTH связывается с MC2R. Для нормального транспорта и работы этого рецептора необходим вспомогательный белок MRAP. Через Gs и PKA сигнал быстро усиливает доставку холестерина к внутренней митохондриальной мембране, в которой участвует StAR; более длительно он изменяет экспрессию стероидогенных ферментов. Продукция кортизола зависит от наличия субстрата, активности ферментов и клеточного состояния, а не только от количества ACTH.
Стероидогенез распределён между митохондриями и гладким эндоплазматическим ретикулумом, ЭПР. В митохондриях CYP11A1 отщепляет боковую цепь холестерина с образованием прегненолона. Далее один из путей к кортизолу включает CYP17A1, HSD3B2 и CYP21A2 в ЭПР; заключительную 11β-гидроксилирующую реакцию осуществляет митохондриальный CYP11B1:
Это упрощённое представление одной последовательности; стероидогенез включает разветвления и другие промежуточные пути. В тканевой регенерации через 11β-HSD1 не создаётся новая стероидная молекула из холестерина: уже имеющийся кортизон превращается обратно в кортизол.
Ритм, транспорт и обратная связь
Супрахиазматическое ядро и периферические молекулярные часы согласуют суточную активность оси гипоталамус–гипофиз–надпочечники. Кортизол обычно повышается к концу биологической ночи, достигает высоких значений утром и снижается к биологическому вечеру. На эту циркадную огибающую накладываются ультрадианные импульсы. Поэтому нормальный профиль не является непрерывно убывающей гладкой линией. Реакция пробуждения, CAR, — дополнительное изменение после пробуждения; её нельзя отождествлять со всем утренним циркадным максимумом. Сон, время пробуждения, сменная работа, болезнь и метод забора меняют интерпретацию измерений.
Большая часть циркулирующего кортизола связана с кортикостероид-связывающим глобулином, CBG, и альбумином; свободная доля невелика и динамична. Фиксированные проценты не универсальны: связывание зависит от концентраций белков, воспаления, эстрогенов, лекарств и насыщения CBG. Общий сывороточный кортизол поэтому не эквивалентен свободной концентрации или внутритканевому действию. Через глюкокортикоидный рецептор, GR, кортизол участвует в отрицательной обратной связи на уровне гипофиза, гипоталамуса и других структур мозга.
2. Два фермента с разными задачами
11β-HSD1 и 11β-HSD2 кодируются разными генами и используют разные кофакторы. Их нельзя объединять в одну лечебную мишень: уменьшение регенерации кортизола в метаболической ткани и нарушение его инактивации в почке имеют принципиально разные последствия.
| Свойство | 11β-HSD1 | 11β-HSD2 |
|---|---|---|
| Ген | HSD11B1 | HSD11B2 |
| Полноразмерный белок человека | 292 аминокислоты | 405 аминокислот |
| Основной кофактор | NADPH при восстановлении; NADP+ при обратной реакции | NAD+ при окислении |
| Типичная физиологическая реакция | Кортизон → кортизол во многих интактных метаболических клетках | Кортизол → кортизон |
| Клеточная топология | Мембранный якорь ЭПР, каталитический домен в его просвете | Мембранно-ассоциированный фермент с каталитической частью, обращённой к цитозольной стороне |
| Важные ткани | Печень, жировая ткань, некоторые клетки мозга и иммунной системы, другие органы | Альдостерон-чувствительный дистальный нефрон, эпителий толстой кишки, плацента и другие ткани |
| Основное следствие | Изменение локального доступа активного глюкокортикоида к рецепторам | Защита минералокортикоидного рецептора от кортизола в соответствующих тканях |
| При потере функции | Нарушение регенерации кортизола; редкие наследственные формы кортизон-редуктазной недостаточности | Кажущийся избыток минералокортикоидов, AME |
Слово «типичная» здесь существенно. Очищенная 11β-HSD1 способна катализировать реакцию в обе стороны; направление в клетке определяется доступностью кофакторов, субстратов и метаболическим сопряжением. 11β-HSD2 физиологически преимущественно окисляет кортизол, но «необратимость» не следует понимать как абсолютное термодинамическое свойство. Константы сродства и скорости зависят от экспериментальной системы; сравнение отдельных значений Km без условий анализа может вводить в заблуждение.
11β-HSD2 и защита минералокортикоидного рецептора
Минералокортикоидный рецептор, MR, способен связывать и альдостерон, и кортизол. Последний значительно более представлен в крови. В альдостерон-чувствительных клетках почки 11β-HSD2 ограничивает доступ кортизола к MR, переводя его в кортизон с существенно меньшей активностью в отношении этих рецепторов:
Это ферментная селективность ткани, а не исключительная избирательность самого рецептора к альдостерону. Концепцию поддерживают классические работы Funder et al. (1988) и исследования AME. При тяжёлых наследственных дефектах HSD11B2 кортизол может усиливать минералокортикоидный сигнал: задержку натрия, повышение давления, потерю калия и метаболический алкалоз. Ренин и альдостерон при таком фенотипе обычно подавлены. Тяжесть и возраст проявления различаются; не каждый дефект сопровождается одинаковым набором осложнений.
11β-HSD1: структура и клеточное направление реакции
11β-HSD1 относится к семейству короткоцепочечных дегидрогеназ/редуктаз, SDR. В её каталитическом домене есть участок связывания пиридиннуклеотидного кофактора с Rossmann-подобной архитектурой и стероид-связывающий карман. Остатки Ser170, Tyr183 и Lys187 участвуют в каталитической организации; структурное положение отдельного остатка не доказывает, что вещество, способное взаимодействовать с ним в докинге, будет эффективным лекарством.
Кристаллографические записи также требуют точности. PDB 2IRW содержит человеческую 11β-HSD1 с NADP и ингибитором класса адамантановых эфиров; запись опубликована в 2007 году и связана с работой Patel et al. PDB 4C7J — комплекс модифицированного человеческого фермента с ингибитором, а не свободная apo-форма. PDB 1Y5R представляет мышиную 11β-HSD1 с кортикостероном, а не человеческую 11β-HSD2. Эти структуры помогают исследовать активный центр, но сами по себе ничего не устанавливают о снижении висцерального жира у людей.
3. Просвет ЭПР: H6PD, NADPH и регенерация кортизола
N-концевой участок закрепляет 11β-HSD1 в мембране ЭПР, а её каталитическая часть находится в просвете. Это отдельный редокс-компартмент. Цитозольная глюкозо-6-фосфатдегидрогеназа, G6PD, и просветная гексозо-6-фосфатдегидрогеназа, H6PD, не взаимозаменяемы в интактной клетке: мембрана ограничивает свободный обмен пиридиннуклеотидами.
Глюкозо-6-фосфат, G6P, может поступать в просвет через транспортёр G6PT, кодируемый SLC37A4. H6PD окисляет G6P и восстанавливает NADP+ до NADPH. У H6PD есть также лактоназная активность; её субстратная специфичность шире, чем отражает краткая схема. NADPH обеспечивает восстановление кортизона посредством 11β-HSD1. Реакции необходимо разделять:
H6PD не превращает кортизон в кортизол самостоятельно. Она поддерживает доступность кофактора для другой реакции. Повышенное отношение NADPH/NADP+ благоприятствует восстановлению, однако универсальные численные отношения вроде 100:1 или 500:1 для всех адипоцитов не установлены. Экспрессия H6PD, транспорт G6P, метаболическое состояние и доступность кортизона могут ограничивать поток.
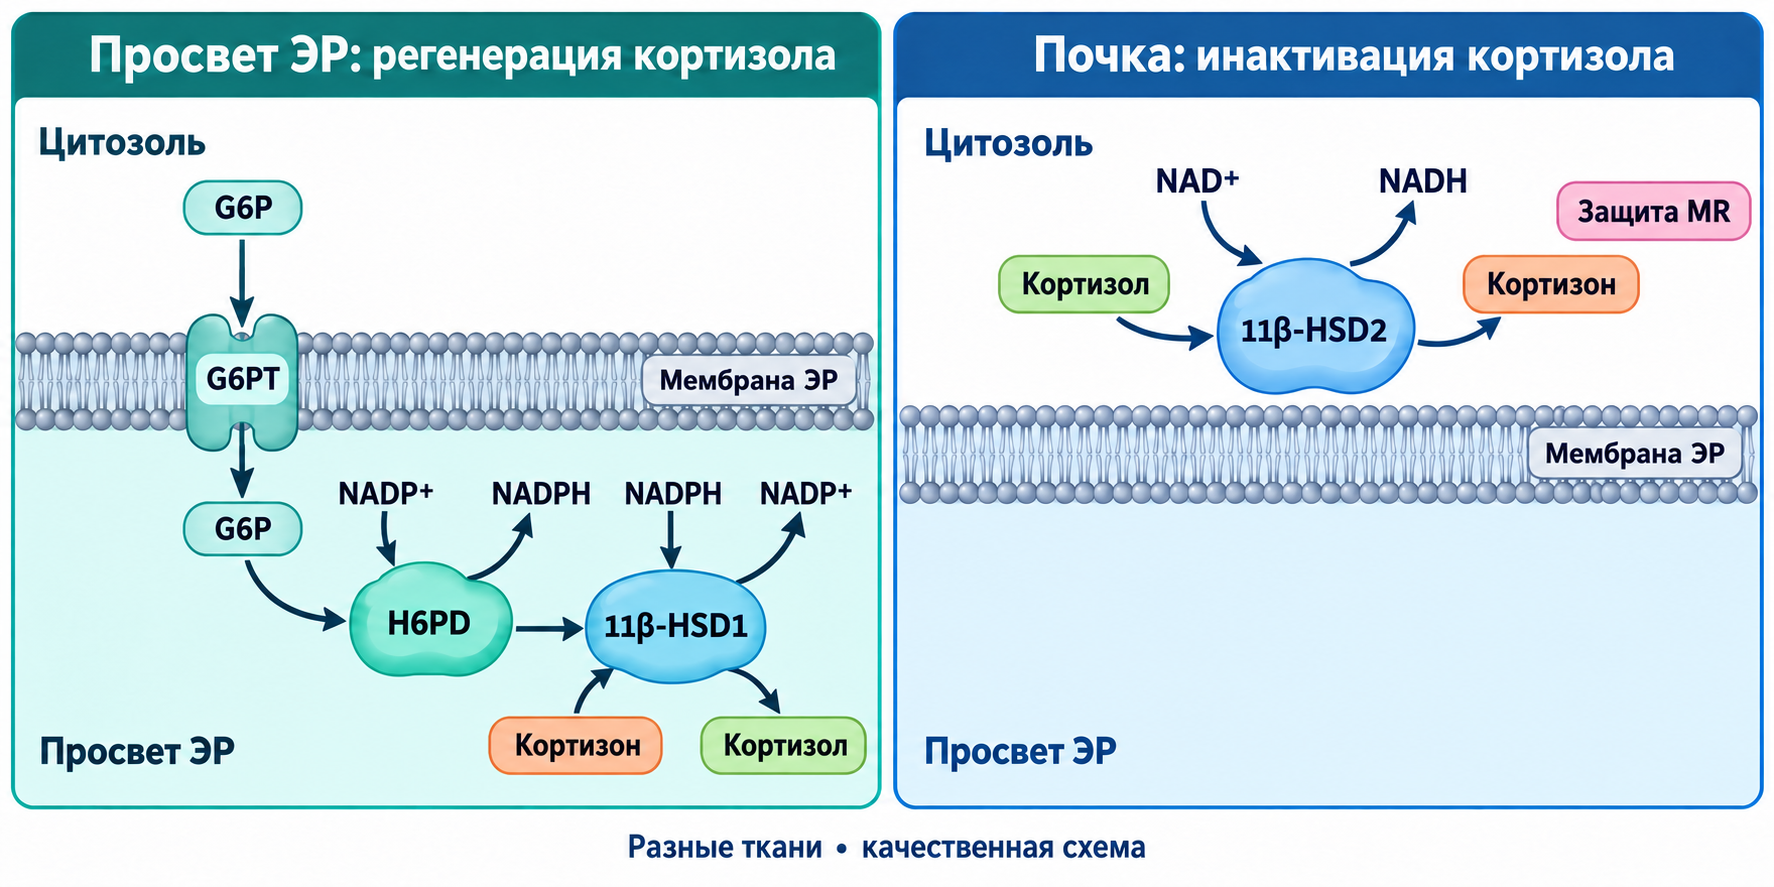
Схема 1. Просветная система G6PT–H6PD–11β-HSD1 показана отдельно от цитозольной стороны действия 11β-HSD2. Стрелки обозначают ферментные реакции и доступность кофактора, а не измеренные скорости или сравнение концентраций между тканями.
Положение ферментов обозначает сторону каталитического домена; мембранные якоря и полная белковая топология упрощены. Панели относятся к разным тканевым контекстам, а не к обязательному совместному присутствию обоих ферментов в адипоците.
Lavery et al. (2006) показали, что мыши без H6PD утрачивают нормальную регенерацию кортикостерона из 11-дегидрокортикостерона и усиливают обратное окисление. Здесь речь о главном глюкокортикоиде мышей, а не о человеческом кортизоле. Работа подтверждает необходимость просветного метаболического сопряжения; она не доказывает, что повышение потребления глюкозы неизбежно вызывает избыточную регенерацию гормона в человеческом висцеральном жире.
Человеческие редкие инактивирующие мутации H6PD также нарушают регенерацию кортизола. Его усиленное удаление из активного пула может приводить к компенсаторной стимуляции ACTH и избытку надпочечниковых андрогенов. Возможны гирсутизм, нарушения менструального цикла или другие проявления, зависящие от возраста и пола (Lavery et al., 2008). Недостаточность из-за H6PD отличают от дефектов самого HSD11B1. Это редкие генетические состояния, а не объяснение любого повышенного ACTH, акне или синдрома поликистозных яичников.
4. Висцеральный жир: что показывают человеческие ткани и мыши
Разные депо и разные измерения
Оментальный и мезентериальный жир связаны с портальным кровотоком. Ретроперитонеальные и околопочечные депо тоже располагаются внутри живота, но их венозный дренаж и биологические функции нельзя автоматически приравнивать к сальнику. Подкожная ткань живота и ягодично-бедренные депо также различаются. Поэтому сравнение «весь висцеральный жир против всего подкожного» часто скрывает неоднородность.
Гипотеза «болезни Кушинга сальника» была предложена Bujalska et al. (1997) как образное описание локальной регенерации кортизола. Её нельзя использовать как название установленного диагноза. Предшественники адипоцитов, зрелые жировые клетки и иммунно-стромальная фракция имеют разные свойства. Культура может менять направление реакции и экспрессию ферментов. Уровень мРНК HSD11B1, количество белка, активность в микросомах, поток восстановления в интактной ткани и прямое содержание кортизола — разные показатели.
В человеческих исследованиях повышение активности в жировой ткани часто связано с ожирением, в том числе в подкожном депо (Rask et al., 2002). Но постоянное многократное преобладание 11β-HSD1 в висцеральной ткани и обязательное снижение в подкожной ткани не подтверждены как общий закон. Пол, степень ожирения, диабет, место биопсии, клеточный состав и метод анализа влияют на результат.
Полезное противовесное наблюдение дали Podraza et al. (2024): исследование тканей людей с ожирением, после метаболической операции и нормальной массой показало снижение ряда генов кортизолового пути в висцеральном жире при ожирении; прямые измерения в парных образцах не выявили соответствующего различия концентраций кортизола. Исследование не опровергает возможность локальной регенерации, но показывает, почему экспрессию одного гена нельзя превращать в универсальную причинную модель или в оценку концентрации гормона.
Цитокины, C/EBP-факторы, глюкокортикоидный сигнал и питание способны регулировать HSD11B1 в экспериментальных системах. Направление и сила этих эффектов зависят от клеточного типа. Утверждение, что инсулин всегда усиливает H6PD/G6PT и создаёт непрерывную положительную обратную связь в каждом человеческом висцеральном адипоците, выходит за пределы имеющихся данных.
Доказательство в модели и перенос на человека
Masuzaki et al. (2001) создали мышей с усиленной экспрессией 11β-HSD1 под адипозным промотором aP2. У них повышался тканевой кортикостерон, развивалось преимущественное накопление висцерального жира, особенно на высокожировом рационе, и нарушался обмен глюкозы и липидов. Это экспериментальная демонстрация того, что изменение локального глюкокортикоидного действия достаточно для фенотипа в конкретной модели. Промотор и генетический фон имеют ограничения специфичности; модель не устанавливает долю человеческого ожирения, вызванную данным механизмом.
Модели дефицита Hsd11b1 показывали ослабление некоторых глюкокортикоид-зависимых ответов и улучшение метаболических показателей (Kotelevtsev et al., 1997; Morton et al., 2001). Результаты зависят от линии, пола, рациона и органа, в котором изменён фермент. Их нельзя описывать как абсолютную защиту от любого ожирения. Изменения UCP1, PGC-1α или бежевого фенотипа в отдельных моделях тоже не означают доказанное превращение человеческого висцерального жира в термогенную ткань при приёме добавки.
5. Два потока липидов, которые нельзя смешивать
Захват жира из крови: LPL и GPIHBP1
Липопротеинлипаза, LPL, синтезируется адипоцитами и некоторыми другими клетками, включая миоциты. Её созревание связано с секреторным путём ЭПР–аппарат Гольджи и вспомогательными белками, в частности LMF1. После секреции фермент должен попасть к триглицерид-богатым липопротеинам в просвете капилляра. Этот транспорт обеспечивает эндотелиальный GPIHBP1: он захватывает LPL с тканевой стороны, переносит её и удерживает на поверхности, обращённой к крови (Beigneux et al., 2007). GPI-якорь находится в клеточной мембране эндотелия, а не в базальной мембране как внеклеточной структуре.
На люминальной поверхности LPL гидролизует триглицериды хиломикронов и VLDL при участии необходимых регуляторов, включая ApoC-II. Жирные кислоты могут поступать в адипоцит посредством путей, в которых участвуют CD36 и FATP, связываться с FABP4, активироваться до ацил-CoA и использоваться для синтеза липидов либо окисления. Некоторые кислоты уходят в циркуляцию; захват не является стопроцентным или исключительно висцеральным. Современная структурная работа показывает возможность каталитически активной мономерной LPL; обязательный активный гомодимер — устаревшее упрощение.
Важное первичное исследование Fried et al. (1993) использовало семидневные органные культуры оментальной и подкожной ткани людей с ожирением. Инсулин отдельно увеличивал показатели LPL в подкожной, но не оментальной ткани. Дексаметазон усиливал LPL с отличающейся чувствительностью депо и пола. Совместное воздействие давало синергический эффект в обоих депо, причём у женщин максимальная активность могла быть выше в подкожном. Поэтому работа поддерживает взаимодействие гормонов, но не подтверждает универсальный рост в 5–10 раз только в висцеральной ткани.
Часть изменений объяснялась экспрессией и синтезом LPL, часть — посттрансляционной регуляцией. Превращать это наблюдение в доказанную архитектуру соседних GRE/SRE, совместного связывания GR/SREBP-1c, обязательного рекрутирования p300/CBP и SWI/SNF именно в человеческом промоторе LPL нельзя без отдельного исследования. Глюкокортикоидный рецептор и инсулиновый путь могут координировать ответ на нескольких уровнях.
Мобилизация собственной липидной капли
Внутриклеточные ATGL, HSL и моноглицеридлипаза работают с запасами самой клетки, а не с липопротеинами плазмы. ATGL, кодируемая PNPLA2, преимущественно начинает гидролиз триглицеридов; HSL, LIPE, особенно важна для диацилглицеролов. При стимуляции цАМФ–PKA меняется фосфорилирование HSL и перилипина-1, PLIN1, а доступность коактиватора ABHD5/CGI-58 регулирует ATGL. Участки фосфорилирования зависят от вида и изоформы; номера остатков из грызунов нельзя без пояснения переносить на человеческую последовательность.
Инсулин связывается с рецептором-тирозинкиназой и через IRS, PI3K, PIP3 и Akt меняет клеточный обмен. В антилиполитическом сигнале важна PDE3B, гидролизующая цАМФ; снижение активации PKA уменьшает стимуляцию липолиза. При этом сеть сложнее линейной цепочки с единственным обязательным фосфорилированием Akt: механизмы различаются по условиям и включают дополнительные регуляторы.
Физиологическая антилиполитическая реакция сильна, но не абсолютна. Базальный оборот жира сохраняется, а при инсулинорезистентности подавление липолиза может ослабевать. Поэтому увеличенное жировое депо способно одновременно принимать жирные кислоты и выделять их. Образ «выход полностью закрыт» противоречит такому обмену и не объясняет портальный выход жирных кислот при ожирении.
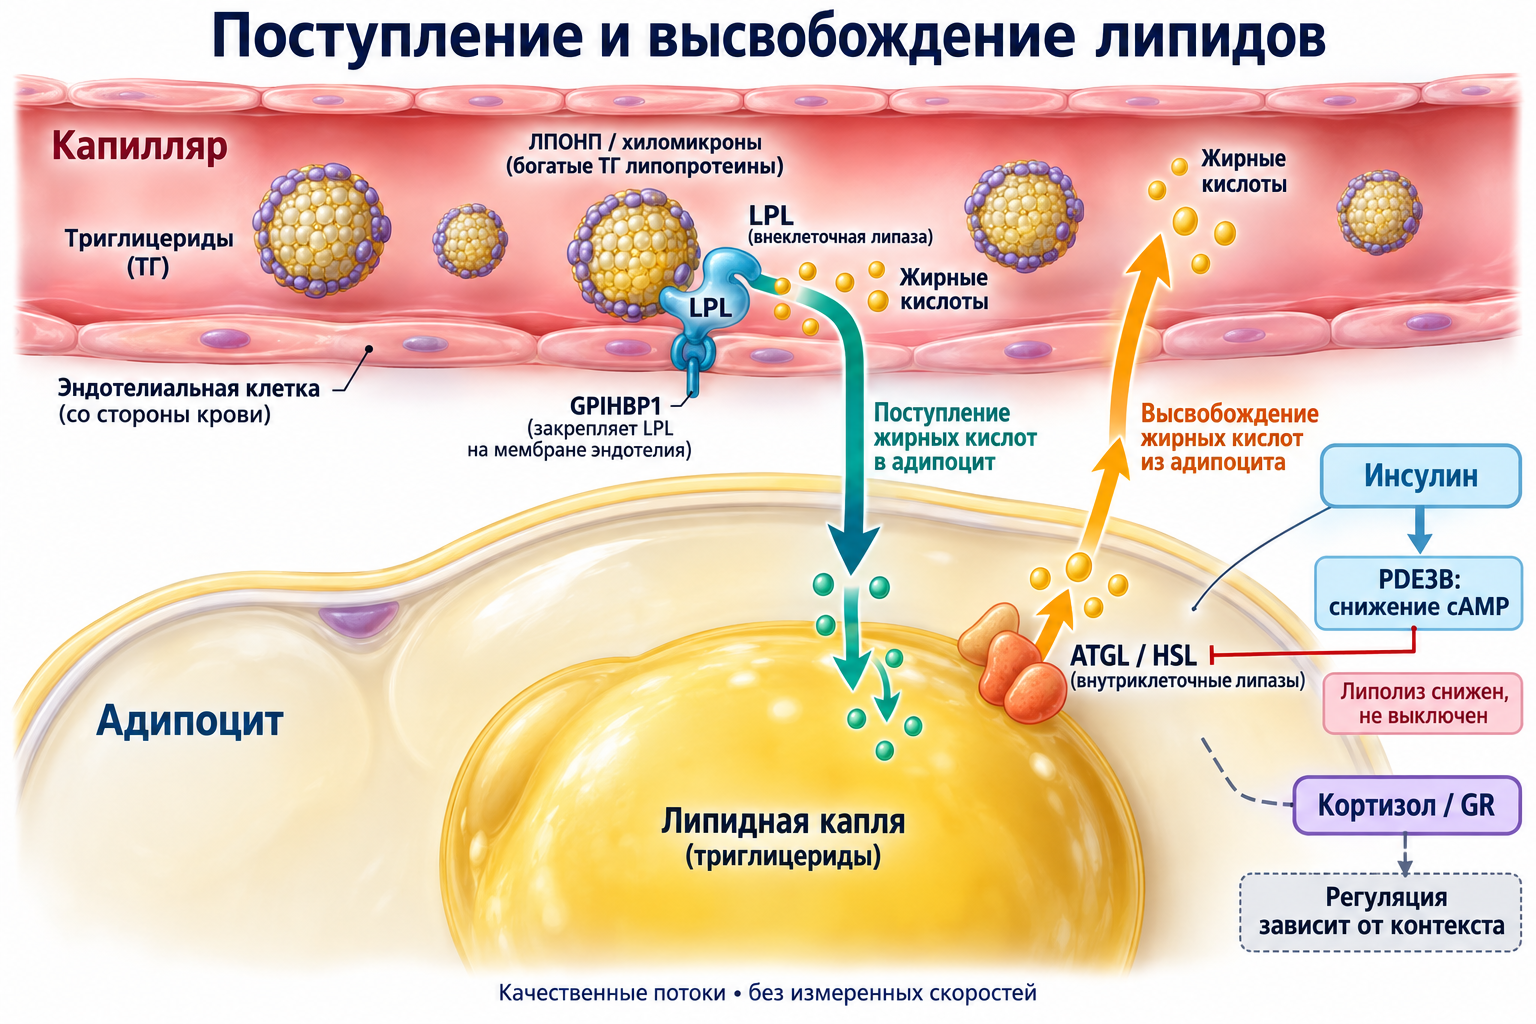
Схема 2. Капиллярная LPL и внутриклеточные липазы относятся к разным потокам. Инсулин способствует запасанию и уменьшает стимулированный липолиз; действие кортизола зависит от дозы, времени и клеточного состояния. Толщина стрелок не отражает количественные результаты, а увеличение депо определяется итоговым балансом поступления, синтеза, мобилизации и окисления.
Эстерификация, синтез новых жирных кислот и общий баланс
Эстерификация использует глицерол-3-фосфат и ацил-CoA. Последовательность GPAT–AGPAT–фосфатидатфосфатаза, включая липин,–DGAT приводит к триглицеридам. Глюкоза, поступающая в ответ на инсулин через GLUT4, может обеспечивать углерод и глицерольный скелет; участвуют и другие источники, включая глицеронеогенез. Это отличается от de novo липогенеза, DNL, в котором новые жирные кислоты синтезируются из не-липидных предшественников. Akt/mTORC1 и SREBP-1c могут регулировать ACLY, ACC, FASN и SCD1, но экспрессия фермента не равна измеренному потоку.
Эксперименты на человеческих клетках показывают неоднозначность: Gathercole et al. (2011) наблюдали снижение базального DNL под действием глюкокортикоидов, тогда как низкодозовая предварительная обработка дексаметазоном усиливала стимуляцию липогенеза инсулином. Ингибирование 11β-HSD1 устраняло действие кортизона в данной системе. Эти результаты позволяют обсуждать гормональное взаимодействие, но не единый неизбежный анаболический сценарий.
Качественный баланс можно записать так:
В этой записи J_esterification — весь поток образования запасённых триглицеридов, J_hydrolysis — весь поток их гидролиза, в одинаковых единицах массы в единицу времени. Поступление жирных кислот, липогенез и реэтерификация питают первый поток. Окисление свободных жирных кислот после гидролиза меняет их дальнейшую судьбу, но не вычитается из массы капли второй раз.
Здесь M — масса запасённых триглицеридов, t — время, J — согласованные потоки в единицах массы за время. Это учётная схема, а не клиническая формула расчёта висцерального жира; реэстерификация и липолиз необходимо определять так, чтобы не считать внутренний цикл дважды. Гормоны меняют направления и величины потоков, распределение субстратов и аппетит, но не отменяют энергетический баланс.
6. Рецепторы, мышцы и распределение жира
GR, кодируемый NR3C1, содержит N-концевой трансактивационный участок, ДНК-связывающий домен с цинковыми пальцами, шарнирную область и C-концевой лиганд-связывающий домен. Его работа зависит от шаперонной системы Hsp90/Hsp70, кошаперонов и иммунофилинов FKBP51/FKBP52, модификаций рецептора и доступности хроматина. Связывание гормона меняет конформацию и ядерное перемещение, но полное одновременное отделение всех шаперонов не является обязательным универсальным этапом. GR регулирует гены через элементы ответа на глюкокортикоиды и взаимодействия с другими факторами; каноническая последовательность GRE не означает, что соответствующий сайт функционален в любом промоторе.
В отдельных исследованиях различались количество и чувствительность рецепторов в жировых депо. Постоянное превосходство висцерального GR в 3–5 раз над подкожным у всех людей не установлено. Важны тип клетки, половые гормоны, клеточное созревание, экспрессия изоформ и локальный метаболизм стероида. Более высокая концентрация лиганда также не обязана вызывать пропорционально больший ответ: возможны адаптация и изменение рецепторной чувствительности.
В мышцах длительное выраженное глюкокортикоидное воздействие может уменьшать синтез белка и стимулировать пути деградации. FoxO-факторы и E3-убиквитинлигазы MuRF1/TRIM63 и atrogin-1/FBXO32 участвуют в экспериментальных механизмах атрофии. Нарушение инсулинового сигнала, изменение транспорта глюкозы и mTOR-связанных процессов тоже могут способствовать катаболизму. Но сочетание большой талии и низкой мышечной массы не патогномонично для кортизола: возраст, малоподвижность, недостаточное питание, заболевания и лекарства дают сходные признаки.
При синдроме Кушинга и длительном фармакологическом избытке глюкокортикоидов центральное перераспределение жира и мышечная слабость имеют клиническое значение. Для обычного ожирения перенос всей этой картины без доказательств гиперкортицизма ошибочен. Сохранение функционального подкожного депо может защищать от эктопического накопления липидов; значимость распределения при одинаковом ИМТ подробно рассматривает материал о фенотипе TOFI и эктопическом жире.
7. От гипертрофии адипоцита к метаболическим осложнениям
Воспаление, адипонектин и PAI-1
Расширение жировой ткани может сопровождаться недостаточным сосудистым обеспечением, гипоксией, внеклеточным матриксным ремоделированием и гибелью части клеток. Макрофаги вокруг погибающих адипоцитов формируют короноподобные структуры. IL-6, CCL2/MCP-1 и другие медиаторы участвуют в взаимодействии иммунных, стромальных и жировых клеток; существенную часть TNF продуцируют клетки иммунной фракции. Дихотомия «M1 против M2» полезна как учебная схема, но не описывает всё разнообразие человеческих тканевых макрофагов.
Адипонектин через AdipoR1/2 связан с путями AMPK, липидного окисления и чувствительности к инсулину. Его концентрация часто снижена при неблагоприятном ожирении. Однако универсальное прямое подавление ADIPOQ и PPARγ кортизолом с обязательным падением адипонектина в 2–4 раза не установлено. Глюкокортикоиды используются и как компонент индукции адипогенеза в культуре. Их противовоспалительные, метаболические и иммунорегуляторные эффекты зависят от времени, дозы и клетки; локальная регенерация гормона не равна автоматически «цитокиновому шторму».
PAI-1, продукт SERPINE1, ограничивает фибринолиз и связан с метаболическими нарушениями. Глюкокортикоиды могут влиять на его экспрессию в экспериментальных системах, но источники циркулирующего PAI-1 многочисленны: жировая ткань, печень, эндотелий, тромбоциты и другие клетки. Нельзя приписывать весь риск инфаркта или тромбоза одному адипозному ферменту. Клинический риск определяется совокупностью факторов, а не фактом предполагаемой активации одного пути.
Портальная гипотеза и печень
Венозный отток из оментального и мезентериального жира способен доставлять липиды и медиаторы непосредственно в портальную систему печени. Это объясняет интерес к портальной гипотезе, но не доказывает, что висцеральная ткань является единственным или главным источником всех жирных кислот печени.
Nielsen et al. (2004) применили изотопные методы и катетеризацию печёночной вены у людей с различным количеством жира. Вклад спланхнического липолиза в доставку жирных кислот печени варьировал от менее 10% почти до 50% и возрастал с висцеральной жировой массой. Это гораздо точнее универсального утверждения, что портальная концентрация всегда в 3–5 раз выше системной. Подкожная ткань также существенно влияет на системный поток жирных кислот и печёночное поступление.
В печени избыточная доставка субстратов может увеличивать запас триглицеридов и некоторых сигнальных липидов. Диацилглицерол–PKCε-связанный механизм способен нарушать работу инсулинового рецептора. Petersen et al. (2016) определили Thr1160 человеческого рецептора как мишень PKCε в биохимической системе; изменение гомологичного Thr1150 у мышей защищало от некоторых эффектов высокожирового рациона. Это важный причинный эксперимент, но не доказательство единственного механизма человеческой инсулинорезистентности. Значимы внутриклеточная локализация и вид липида; церамиды действуют через другие пути, а не автоматически через ту же реакцию.
Недостаточное подавление печёночной продукции глюкозы может сочетаться с продолжающимся синтезом липидов. Понятие селективной инсулинорезистентности описывает этот парадокс, но поддержание липогенеза зависит также от поступления углеводов, жирных кислот, гиперинсулинемии и иных сигнальных факторов. Не следует представлять все клетки печени как систему, в которой один путь полностью выключен, а другой неизменно полностью сохранён.
Печень удаляет значительную часть инсулина при первом прохождении, но доля меняется. Клиренс включает рецепторное связывание, эндоцитоз, внутриклеточную деградацию и дополнительные регуляторы; IDE не является единственным определяющим ферментом. При стеатозе и метаболических нарушениях снижение клиренса может усиливать гиперинсулинемию, однако направление причинности и вклад компенсации поджелудочной железы неоднозначны. Индексы натощак помогают исследовать системный фенотип, но не измеряют локальную регенерацию кортизола: см. HOMA-IR, TyG и QUICKI.
РААС, почка и давление
Жировая ткань экспрессирует компоненты ренин–ангиотензиновой системы, включая ангиотензиноген, и взаимодействует с сосудистыми и почечными механизмами. В отдельной работе Masuzaki et al. (2003) мыши с усиленной адипозной 11β-HSD1 имели повышение давления, солечувствительность и изменения циркулирующей РААС; AT1-блокада устраняла гипертензию в этой модели. Это следует отличать от исследования 2001 года и от доказательства такой же ведущей причины гипертензии у людей.
При человеческом ожирении давление связано с симпатической активностью, натрийурезом, апноэ сна, сосудистыми изменениями, РААС и другими факторами. Периренальный и почечный синусный жир могут влиять на локальную механику и кровоток, но увеличение любого жирового депо не означает неизбежную компрессию, повышение ренина или рефрактерную вазоренальную гипертензию. Альдостероновое действие при РААС-активации также необходимо различать с MR-активацией кортизолом при подавленной 11β-HSD2.
8. Сон, ритмы и стрессовое питание
Хронический стресс может изменять суточный профиль кортизола, включая наклон дневного снижения или реакцию пробуждения, однако индивидуальные ответы различаются. Стресс не всегда означает стойкую гиперкортизолемию: возможны усиленная реактивность, ослабленная реакция и изменения времени секреции. Уплощённый профиль является ассоциацией или исследовательским фенотипом, а не специфическим диагнозом причины ожирения.
Недостаток сна, сменная работа и социальный джетлаг могут ухудшать регулирование глюкозы и влиять на пищевое поведение. Сон и ось гипоталамус–гипофиз–надпочечники взаимодействуют двусторонне. Нельзя сводить бессонницу к прямой блокаде одной группы нейронов кортизолом или утверждать одинаковое снижение ночного гормона роста на 60–80% у всех людей. Пульсация гормона роста связана с архитектурой сна, возрастом, полом и метаболическим состоянием; его физиологический сигнал не является отдельной программой «ночного сжигания висцерального жира».
Spiegel et al. (2004) изучали кратковременное ограничение сна у 12 здоровых молодых мужчин и выявили изменения лептина, грелина и аппетита. Условия лабораторного питания и сна ограничивают перенос на всех людей с хронической инсомнией. Низкий лептин после ограничения сна и высокая концентрация лептина при ожирении могут встречаться в разных контекстах; это не противоречие и не единая универсальная последовательность.
Модель comfort food Dallman et al. (2003) основана преимущественно на интерпретации экспериментов с грызунами: доступ к энергетически плотной пище, жировые запасы и глюкокортикоиды могут менять хронический стрессовый ответ. У людей стресс способен как усиливать, так и уменьшать приём пищи. Система вознаграждения, обучение, доступность еды и социальные условия имеют значение, но обязательная цепочка «сахар → серотонин → выключение CRH → мгновенное помещение всей энергии в сальник» не доказана. Устойчивое переедание может увеличивать массу жира, а кратковременное субъективное облегчение не превращает пищу в лечение стресса.
9. Ингибиторы 11β-HSD1: клиническая проверка гипотезы
Селективные малые молекулы разрабатывались для ограничения регенерации активных глюкокортикоидов. Среди исследованных соединений — INCB13739, MK-0916, AZD4017 и другие. Разные ткани, заболевания и исследования дают разные результаты; перечень экспериментальных соединений не является списком рекомендованных препаратов для уменьшения талии.
В двойном слепом исследовании Rosenstock et al. (2010) 302 человека с диабетом 2 типа, недостаточно контролируемым метформином, получали одну из пяти доз INCB13739 или плацебо в течение 12 недель. При 200 мг в сутки по сравнению с плацебо HbA1c уменьшился примерно на 0,6 процентного пункта, глюкоза натощак — на 24 мг/дл, HOMA-IR — примерно на 24%. Изменения липидов особенно отмечались в гиперлипидемических подгруппах, а масса тела несколько снизилась. Это исследованные результаты определённой популяции, не персональная дозировка.
| Что оценено в исследовании | Корректная интерпретация | Чего результат не устанавливает |
|---|---|---|
| HbA1c за 12 недель | Краткосрочный эффект добавления к метформину | Профилактику осложнений или универсальное лечение ожирения |
| Глюкоза натощак и HOMA-IR | Улучшение суррогатных показателей | Измеренное клэмпом улучшение именно печёночной чувствительности |
| Липиды и масса тела | Некоторые благоприятные изменения | Доказанное уменьшение количественно измеренного висцерального депо |
| ACTH и андрогены | Компенсаторная эндокринная реакция требует наблюдения | Обязательные гирсутизм, алопецию или надпочечниковую гиперплазию |
ACTH увеличивался обратимо и дозозависимо, обычно в пределах референсного диапазона. Базальная кортизоловая обеспеченность сохранялась; свободный андрогенный индекс у женщин в этом исследовании не изменился. Поэтому исходное утверждение о доказанном клиническом гиперандрогенизме у участниц нельзя выводить из данной работы. Компенсаторная активация оси и изменение предшественников остаются важными вопросами безопасности и длительного лечения.
Неудачи отдельных программ нельзя объяснять исключительно одним «надпочечниковым рикошетом». Имеют значение величина эффекта, проникновение и устойчивость действия в ткани, болезнь-мишень и безопасность. Работа, связанная со структурой 4C7J, описывала и отсутствие изменения массы, глюкозы и инсулина у определённых высокожировых мышиных моделей несмотря на выраженное воздействие на мишень (Goldberg et al., 2014). Исследовательская привлекательность фермента не равна доказанной клинической эффективности любого его ингибитора.
10. Полифенолы: ферментный опыт не равен терапии
EGCG
Hintzpeter et al. (2014) исследовали человеческие печёночные микросомы и очищенную 11β-HSD1. EGCG подавлял восстановительную реакцию с IC50 около 57,99 мкмоль/л; для окислительной реакции значение было около 131,2 мкмоль/л. Кинетика поддерживала конкуренцию с субстратом и/или кофактором, а докинг предполагал взаимодействие с Lys187. IC50 — концентрация, дающая половинное ингибирование в конкретном анализе; она не является дозой для человека и не доказывает достижение такой концентрации свободного вещества в просвете ЭПР адипоцита.
Всасывание, метаболиты, связывание с белками и различие печени и жировой ткани осложняют перенос. Улучшение отдельного клинического показателя после экстракта чая также не доказывает, что эффект обусловлен 11β-HSD1. Исходная рекомендация 400–800 мг чистого EGCG в сутки как доказанного лечения локального гиперкортицизма необоснованна. EFSA (2018) связала приём концентрированных добавок EGCG на уровне 800 мг/сут и выше с повышением трансаминаз; надёжный безопасный порог для добавок ниже этой величины не был установлен. Обычный настой чая отличается от концентрированного препарата.
Куркумин и ресвератрол
Hu et al. (2013) обнаружили ингибирование 11β-HSD1 куркумином в клеточных системах с человеческим и крысиным ферментом; воздействие на 11β-HSD2 тоже существовало при более высоких концентрациях. В эксперименте на крысах использовали 200 мг/кг на протяжении двух месяцев и оценивали метаболические показатели. Это не человеческая доза и не доказательство полного эпигенетического выключения HSD11B1 у человека. NF-κB, C/EBP и AMPK могут участвовать в экспериментальных эффектах полифенолов, однако такие широкие механистические перечни не заменяют измерения клинического результата.
Ресвератрол подавлял активность 11β-HSD1 в крысиных жировых микросомах и клетках 3T3-L1 (Tagawa et al., 2013). Эти системы нельзя описывать как человеческие жировые эксплантаты. Механизмы SIRT1/PGC-1α и термогенеза изучаются отдельно; универсальная прямая активация SIRT1 и преобразование человеческого висцерального депо не следуют из ферментной работы. У публикации есть исправление 2014 года; при интерпретации необходимо учитывать актуальную версию, а неподтверждённые конкретные величины не использовать.
Полный текст исправления 2014 года при этой подготовке получить не удалось; содержание конкретной коррекции не подтверждено, и зависящие от неё числа или детали рисунков не используются для клинического вывода.
| Вещество | Какая система даёт механистические данные | Основная граница вывода |
|---|---|---|
| EGCG | Человеческие печёночные микросомы и очищенный фермент | Нет доказанного лечебного подавления адипозной 11β-HSD1 после обычного приёма |
| Куркумин | Клеточные ферментные анализы и высокодозовая крысиная модель | Эффект нельзя переносить на человеческий висцеральный жир или дозировку |
| Ресвератрол | Крысиные микросомы и мышиная клеточная линия | Не доказан клинический эффект через эту мишень у людей |
Формы с пиперином, мицеллярные или фосфолипидные комплексы могут менять биодоступность, но увеличение концентрации вещества не тождественно доказанному улучшению исходов. Пиперин также может изменять метаболизм лекарств. Популярное число «2000%» из конкретного фармакокинетического опыта не означает, что глюкуронидация у каждого человека подавляется на такую величину.
11. Солодка и 11β-HSD2: другая мишень, другой риск
Глицирризин солодки и его метаболиты, в частности глицирретиновая кислота, могут нарушать метаболизм кортизола, включая ингибирование почечной 11β-HSD2. Их нельзя считать безопасной заменой селективному ингибитору 11β-HSD1. Значения IC50 сильно зависят от формы вещества, ферментной системы и условий; универсальное наномолярное число не определяет безопасное потребление.
Когда кортизол недостаточно инактивируется, MR-сигнал в дистальном нефроне усиливает натриевые транспортные механизмы, включая ENaC, и способствует потере калия. Возможны повышение давления, отёки, гипокалиемия и алкалоз. При тяжёлой гипокалиемии возможны мышечная слабость и опасные аритмии. В отличие от первичного гиперальдостеронизма ренин и альдостерон обычно снижены: поэтому используется термин приобретённый кажущийся избыток минералокортикоидов или псевдогиперальдостеронизм.
Механизм поддерживают человеческие наблюдения Stewart et al. (1987). Современное неслепое рандомизированное перекрёстное исследование Af Geijerstam et al. (2024) включило 28 здоровых молодых участников: двухнедельное потребление солодки с 100 мг глицирризиновой кислоты в день увеличивало домашнее систолическое давление и подавляло ренин и альдостерон. Исследованная доза не является безопасным пределом. Ответ зависит от количества вещества, длительности и индивидуальной восприимчивости.
При гипертензии, сердечной или почечной болезни и лекарствах, влияющих на калий, особенно важно выяснить наличие солодки в чае, конфетах и добавках. Сердцебиение, выраженная слабость или ухудшение давления на фоне такого потребления требуют клинической оценки. DGL содержит меньше глицирризина, однако маркировка, остаточное количество и качество продукта различаются; это не автоматическое доказательство безопасности или эффективности DGL для другой цели.
12. Добавки для стресса и практические вмешательства
Небольшие испытания ашваганды оценивают воспринимаемый стресс, сон и сывороточный кортизол. Chandrasekhar et al. (2012) рандомизировали 64 взрослых с хроническим стрессом на 60 дней. Снижение кортизола примерно на 27,9% относится к изменению внутри группы экстракта, а не к такому же процентному различию с плацебо. Исследование не измеряло локальную 11β-HSD1 или висцеральный жир. Экстракты корня и смеси корня с листьями отличаются; результаты одного препарата нельзя автоматически переносить на все продукты.
NCCIH отмечает ограниченность долгосрочных данных, возможные желудочно-кишечные эффекты, сонливость и редкие повреждения печени. Ашваганду избегают при беременности; важны заболевания щитовидной железы, аутоиммунные состояния и взаимодействия с лекарствами. Снижение одного измерения кортизола само по себе не является показанием к добавке и не означает улучшение всех функций оси.
Hellhammer et al. (2004) исследовали комплекс фосфатидилсерина и фосфатидной кислоты, PAS, у 80 участников. После трёх недель 400 мг комплекса уменьшали гормональную реакцию на стандартизированный стресс-тест, тогда как более высокие дозы в этом опыте не давали такого эффекта. Это не универсальный дозозависимый результат чистого фосфатидилсерина и не доказательство восстановления CAR или снижения висцерального жира. Малые исследования спортивной нагрузки и эмоциональных реакций также оценивают свои конкретные конечные точки.
Магний имеет физиологическое значение для нервной системы; восполнение недостатка может быть оправдано, но всеобщий вечерний «антикортизоловый» протокол не установлен. Форма соли, элементарная доза, пищевое поступление, желудочно-кишечные эффекты, функция почек и взаимодействия имеют значение. Для L-теанина существуют небольшие исследования отдельных стрессовых и когнитивных показателей; они не подтверждают лечение локального гиперкортицизма. Ни один из этих вариантов не заменяет оценку причины симптомов.
Питание и время еды
Устойчивое уменьшение избыточной массы требует подхода к общему питанию, активности, среде и при необходимости клиническому лечению. Цельные продукты, клетчатка, достаточный белок и уменьшение систематического избытка энергетически плотной пищи могут помогать. Обычный инсулиновый ответ на смешанный приём пищи необходим; его полное устранение не является целью. Углеводы не становятся неизбежной причиной висцерального ожирения только потому, что в крови присутствует физиологический кортизол.
Раннее ограничение времени питания изучалось Sutton et al. (2018) в небольшом контролируемом перекрёстном исследовании мужчин с предиабетом: шестичасовое окно с завершением еды до 15:00 сравнивали с двенадцатичасовым, поддерживая массу тела. Улучшились некоторые показатели чувствительности к инсулину. Это интересное подтверждение значения времени, но не доказательство универсальной необходимости окна 08:00–16:00, полного отказа от вечерней еды или подавления 11β-HSD1. При диабете и сахароснижающих лекарствах, беременности, риске недостаточного питания или расстройствах пищевого поведения режим требует индивидуального выбора.
Сон, свет, нагрузка
Регулярное время сна и пробуждения, подходящий дневной свет и снижение чрезмерной вечерней освещённости помогают согласовать поведение с биологическими ритмами. Воздействие света зависит от времени, длительности, спектра и индивидуальной фазы; универсальные 10 000 люкс в первые 30 минут не гарантируют «нормализацию CAR». Комфортная температура спальни может помогать сну, но диапазон 17–19 °C не является обязательным лечением кортизолового нарушения. При выраженном храпе, остановках дыхания или дневной сонливости важно оценить апноэ сна.
Аэробная нагрузка и силовые упражнения помогают метаболическому здоровью и сохранению мышц. Интенсивность подбирается по состоянию и восстановлению. «Зона 2» не имеет единого соответствия лактату 1,5–2,0 ммоль/л или фиксированному проценту максимальной ЧСС для всех людей. Кратковременное повышение кортизола при тренировке — часть нормальной адаптации; оно не доказывает вред HIIT или истощение надпочечников. Термин «адренокортикальное истощение» в таком бытовом смысле не является установленным диагнозом.
13. Что можно оценить клинически
Окружность талии, давление, липиды, гликемия, анамнез лекарств, сон и мышечная функция помогают определить метаболический риск. Порог талии зависит от пола, популяции и используемой рекомендации; это не тест локальной активности 11β-HSD1. Висцеральный жир и эктопические депо при необходимости оценивают методами визуализации, но такие измерения тоже не устанавливают гормональную причину.
Синдром Кушинга означает клиническое состояние хронического патологического избытка глюкокортикоидов; болезнь Кушинга — его гипофизарная ACTH-зависимая форма. Нормальный утренний кортизол не исключает синдром, а отдельное высокое значение не подтверждает его. Согласно Endocrine Society, при соответствующих прогрессирующих или достаточно специфичных признаках врач выбирает поздневечерний слюнный кортизол, суточный свободный кортизол мочи либо дексаметазоновую пробу с учётом условий и повторений. Массовое обследование каждого человека с ожирением и случайные определения кортизола/ACTH не рекомендованы как стратегия выявления.
Соотношение мочевых метаболитов (THF + allo-THF)/THE используется в исследовании стероидного обмена, но зависит не только от 11β-HSD1: участвуют 11β-HSD2, 5α/5β-редукция и другие процессы. Оно не определяет активность фермента исключительно в сальнике. Редукции стероидов также не следует называть реакциями конъюгации второй фазы; это разные этапы метаболизма.
14. Частые вопросы
Может ли нормальный кортизол крови сочетаться с изменённым действием в ткани?
Да. Локальная регенерация, рецепторы, связывающие белки и клеточный контекст изменяют доступность и ответ. Однако такая возможность не доказывает локальный гиперкортицизм у любого человека с большой талией.
Почему кортизол может мобилизовать жир и сопровождаться центральным ожирением?
Гормон действует в разных тканях и временны́х масштабах. Липолиз, захват жирных кислот, созревание адипоцитов, взаимодействие с инсулином, питание и расход энергии могут меняться одновременно. Итог определяется балансом потоков, а не одним направлением действия.
Можно ли снизить висцеральный жир добавкой, ингибирующей 11β-HSD1 в пробирке?
Ферментный результат не устанавливает достижение нужной концентрации в ткани, избирательность и клиническую пользу. Для EGCG, куркумина и ресвератрола нет универсального подтверждённого протокола лечения висцерального ожирения через этот механизм.
Почему солодка заслуживает отдельного внимания?
Она может нарушать почечную инактивацию кортизола через 11β-HSD2 и усиливать MR-сигнал. Повышение давления и потеря калия — клинические риски, а не способ безопасно регулировать тканевый кортизол.
Нужно ли всем сдавать кортизол и избегать инсулиновых пиков?
Нет. Исследование кортизола выбирают по клиническим признакам и условиям, а физиологический инсулиновый ответ необходим. Метаболическое здоровье оценивают комплексно; питание, сон и активность подбирают под реальные потребности.
Тканевая регенерация глюкокортикоидов помогает объяснять часть гормональной регуляции жира. Наиболее уверенные выводы касаются ферментных реакций, клеточных компартментов и конкретных экспериментальных моделей. Для человеческого ожирения важны неоднородность ткани и результатов, энергетический баланс, клинический контекст и отсутствие универсального лечения, вытекающего из одного молекулярного пути.
Частые вопросы
Может ли нормальный кортизол крови сочетаться с изменённым действием в ткани?
Да. Локальная регенерация, рецепторы, связывающие белки и клеточный контекст изменяют доступность и ответ. Однако такая возможность не доказывает локальный гиперкортицизм у любого человека с большой талией.
Почему кортизол может мобилизовать жир и сопровождаться центральным ожирением?
Гормон действует в разных тканях и временны́х масштабах. Липолиз, захват жирных кислот, созревание адипоцитов, взаимодействие с инсулином, питание и расход энергии могут меняться одновременно. Итог определяется балансом потоков, а не одним направлением действия.
Можно ли снизить висцеральный жир добавкой, ингибирующей 11β-HSD1 в пробирке?
Ферментный результат не устанавливает достижение нужной концентрации в ткани, избирательность и клиническую пользу. Для EGCG, куркумина и ресвератрола нет универсального подтверждённого протокола лечения висцерального ожирения через этот механизм.
Почему солодка заслуживает отдельного внимания?
Она может нарушать почечную инактивацию кортизола через 11β-HSD2 и усиливать MR-сигнал. Повышение давления и потеря калия — клинические риски, а не способ безопасно регулировать тканевый кортизол.
Нужно ли всем сдавать кортизол и избегать инсулиновых пиков?
Нет. Исследование кортизола выбирают по клиническим признакам и условиям, а физиологический инсулиновый ответ необходим. Метаболическое здоровье оценивают комплексно; питание, сон и активность подбирают под реальные потребности.
Источники
- Bujalska et al. (1997). Does central obesity reflect Cushing’s disease of the omentum?
- Masuzaki et al. (2001). A transgenic model of visceral obesity and the metabolic syndrome.
- Kotelevtsev et al. (1997). 11β-HSD1 knockout mice: glucocorticoid responses and hyperglycemia.
- Morton et al. (2001). Improved lipid and glucose profiles in large adipocytes of 11β-HSD1 knockout mice.
- Fried et al. (1993). Lipoprotein lipase regulation by insulin and glucocorticoid in human adipose depots.
- Rask et al. (2002). Tissue-specific changes in peripheral cortisol metabolism in obese women.
- Gathercole et al. (2011). Regulation of lipogenesis by glucocorticoids and insulin in human adipose tissue.
- Podraza et al. (2024). microRNA, cortisol metabolism and human adipose tissue in obesity.
- Lavery et al. (2006). H6PD knockout mice lack 11β-HSD1-mediated glucocorticoid generation.
- Lavery et al. (2008). Inactivating H6PD mutations in patients with cortisone reductase deficiency.
- Funder et al. (1988). Mineralocorticoid action: target tissue specificity is enzyme mediated.
- RCSB PDB 2IRW (released 2007). Human HSD1 with NADP and adamantane ether inhibitor; Patel et al.
- RCSB PDB 4C7J (released 2014). Human HSD1 inhibitor complex; Goldberg et al.
- RCSB PDB 1Y5R. Murine 11β-HSD1 complexed with corticosterone.
- Beigneux et al. (2007). GPIHBP1 and lipolytic processing of chylomicrons.
- Birrane et al. (2019). Structure of the LPL–GPIHBP1 complex mediating plasma triglyceride hydrolysis.
- Nielsen et al. (2004). Splanchnic lipolysis in human obesity.
- Petersen et al. (2016). Insulin receptor Thr1160 phosphorylation and hepatic insulin resistance.
- Masuzaki et al. (2003). Adipose glucocorticoid amplification causes high blood pressure in mice.
- Dallman et al. (2003). Chronic stress and obesity: a new view of comfort food.
- Spiegel et al. (2004). Experimental sleep curtailment, leptin, ghrelin and appetite in young men.
- Rosenstock et al. (2010). INCB13739 in type 2 diabetes inadequately controlled by metformin.
- Hintzpeter et al. (2014). Green tea and EGCG inhibition of human 11β-HSD1.
- Hu et al. (2013). Curcumin inhibition of 11β-HSD1 and metabolic measurements in high-fat-fed rats.
- Tagawa et al. (2013). Resveratrol inhibition of 11β-HSD1 in rat adipose microsomes.
- Tagawa et al. (2014). Erratum to resveratrol inhibition of 11β-HSD1 in rat adipose microsomes.
- Stewart et al. (1987). Mineralocorticoid activity of liquorice and altered cortisol metabolism.
- Af Geijerstam et al. (2024). Licorice, renin, aldosterone and home blood pressure: randomized crossover trial.
- Chandrasekhar et al. (2012). Ashwagandha root extract in adults with chronic stress.
- Hellhammer et al. (2004). Phosphatidic acid/phosphatidylserine complex and mental stress responses.
- Sutton et al. (2018). Early time-restricted feeding in men with prediabetes without weight loss.
- EFSA (2018). Scientific opinion on the safety of green tea catechins.
- NCCIH. Ashwagandha: usefulness, safety and interactions.
- Endocrine Society (2008). Diagnosis of Cushing’s syndrome: clinical practice guideline.