
Кортизол мен инсулин: висцералды майдың жиналу механизмдері
11β-HSD1, H6PD, липид ағындары және кортизолдың тіндік әсері: жасушалық, жануарлық және адам деректері, диагностика шегі мен қоспалар қауіпсіздігі.
11β-HSD1, H6PD, липид ағындары және кортизолдың тіндік әсері: жасушалық, жануарлық және адам деректері, диагностика шегі мен қоспалар қауіпсіздігі.
Кортизол мен инсулин энергияның берілуі мен сақталуын бірлесіп реттейді, бірақ олардың жеке әсерлері кейде қарама-қарсы көрінеді. Инсулин тамақтан кейін қор жинауды қолдап, майдың мобилизациясын тежейді. Глюкокортикоидтар глюкозаның қолжетімділігін сақтап, липолизді күшейте алады, сонымен қатар адипоциттердің жетілуіне және инсулинге жауабына ықпал етеді. Сондықтан созылмалы артық әсер орталық май жиналуымен және бұлшықет жоғалуымен қатар жүруі мүмкін. Бұл әрбір үлкейген бел кортизолдан болады немесе тамақтан кейінгі қалыпты инсулин зиянды дегенді білдірмейді.
Кортизолдың жасуша ішіндегі қолжетімділігін тек бүйрекүсті бездері анықтамайды. 11β-гидроксистероиддегидрогеназаның 1-түрі, 11β-HSD1, тінде кортизонды кортизолға қайта айналдырады. Рецепторға дейінгі осы реттеу қан концентрациясы нақты жасушадағы әсер күшіне автоматты түрде тең емес екенін түсіндіреді. Генетикалық тышқан үлгілері май тінінде үдерісті күшейту жағымсыз метаболизмдік фенотип тудыратынын көрсетті. Адам зерттеулері біркелкі емес, ал тежегіштер сынақтары висцералдық семіздіктің әмбебап емін қалыптастырған жоқ.
Мәтін бүйрекүстілік синтезді, екі 11β-HSD ферментін, эндоплазмалық торды, липопротеинлипазаны, жасушалық липолизді, бауыр мен тамырларды, күйзеліс, ұйқы және араласуларды қамтиды. Бұл негізгі бастапқы зерттеулері тексерілген нысаналы ғылыми талдау, жүйелі шолу немесе жеке емдеу сызбасы емес.
Паравентрикулярлық ядроның ұсақ жасушалы нейрондары CRH және вазопрессинді, AVP, гипофиздің қақпалық қанайналымына бөледі. Кортикотроптарда CRH CRHR1 арқылы негізінен Gs–аденилатциклаза–цАМФ–PKA жолын, AVP V1b арқылы Gq–фосфолипаза C–IP3–кальций жолын пайдаланады. Сигналдар ACTH түзілуі мен бөлінуінде өзара әрекеттеседі. POMC-ті PC1/3 сияқты ферменттер өңдейді; ACTH кейін бүйрекүсті безін ынталандырады.
Шоғырлы аймақта ACTH MC2R-мен байланысады; рецептордың тасымалы мен қалыпты жұмысына MRAP керек. Gs/PKA StAR қатысуымен холестериннің ішкі митохондриялық мембранаға жеткізілуін жедел арттырып, ұзақ мерзімде стероидогендік гендерді өзгертеді. Өнім мөлшері ACTH-ға ғана емес, субстрат пен жасуша жағдайына да тәуелді.
Стероидогенез митохондрия мен тегіс эндоплазмалық торға, ЭТ-ға, бөлінген. Митохондриялық CYP11A1 холестериннің бүйір тізбегін ажыратып, прегненолон түзеді. Бір жол әрі қарай ЭТ-дағы CYP17A1, HSD3B2 және CYP21A2 арқылы өтіп, митохондриялық CYP11B1-мен аяқталады:
Бұл тармақталған желінің бір тізбегі. 11β-HSD1 регенерациясы бар кортизонды қайта пайдаланады, холестериннен жаңа стероид жасамайды.
Супрахиазмалық ядро мен шеткі сағаттар гипоталамус–гипофиз–бүйрекүсті осінің тәуліктік белсенділігін үйлестіреді. Кортизол биологиялық түннің соңында көтеріліп, таңертең жоғары, биологиялық кешке қарай төмен болады. Циркадтық бейнеге ультрадиандық импульстер қосылады, сондықтан қалыпты қисық үздіксіз тегіс төмендемейді. Ояну жауабы, CAR, оянғаннан кейінгі қосымша өзгеріс; бүкіл таңғы максимум емес. Ұйқы, кесте, ауысым, ауру және сынама алу түсіндірмені өзгертеді.
Қандағы кортизолдың көп бөлігі кортикостероид-байланыстырушы глобулинге, CBG, және альбуминге байланысқан. Еркін үлесі аз әрі өзгермелі. Тұрақты пайыздар әмбебап емес: ақуыз, қабыну, эстрогендер, дәрілер және CBG қанығуы әсер етеді. Жалпы сарысулық деңгей еркін концентрацияға немесе тіндік әсерге тең емес. Глюкокортикоид рецепторы, GR, гипофиз, гипоталамус және басқа ми құрылымдарындағы теріс кері байланысты қамтамасыз етеді.
11β-HSD1 мен 11β-HSD2 әртүрлі генмен кодталып, бөлек кофактор пайдаланады. Метаболизмдік жасушада регенерацияны азайту және бүйректе инактивацияны бұзу қарама-қарсы салдар беруі мүмкін.
| Сипат | 11β-HSD1 | 11β-HSD2 |
|---|---|---|
| Ген | HSD11B1 | HSD11B2 |
| Адамның толық ақуызы | 292 аминқышқыл | 405 аминқышқыл |
| Кофактор | Тотықсыздануда NADPH, кері реакцияда NADP+ | Тотығуда NAD+ |
| Әдеттегі реакция | Көптеген тұтас метаболизмдік жасушада кортизон → кортизол | Кортизол → кортизон |
| Топология | ЭТ мембранасындағы якорь, катализ қуыста | Мембранамен байланысқан, катализ цитозоль жағында |
| Маңызды тіндер | Бауыр, май, кейбір ми және иммундық жасушалар, өзге мүшелер | Альдостеронға сезімтал дисталдық нефрон, ішек эпителийі, плацента |
| Нәтиже | Белсенді гормонның рецепторға жергілікті қолжетімділігі | MR-ды кортизолдан қорғау |
| Функция жоғалуы | Регенерацияның бұзылуы, сирек тұқым қуалайтын кортизон-редуктаза тапшылығы | Минералокортикоидтың жалған артықтығы, AME |
Тазартылған 11β-HSD1 екі бағытта да әрекет етеді; жасушада кофактор, субстрат және метаболизмдік түйісу бағытын анықтайды. HSD2 физиологиялық тұрғыда негізінен тотықтырады, бірақ абсолютті термодинамикалық қайтымсыздық емес. Km мен аффинділік талдау жағдайына тәуелді.
MR альдостеронды да, қанда әлдеқайда көп кортизолды да байланыстырады. Сезімтал бүйрек жасушаларында HSD2 кортизолды рецепторлық белсенділігі төмен кортизонға айналдырады:
Таңдамалылықты рецептордың тек альдостеронды тануы емес, тін ферменті жасайды (Funder et al., 1988). HSD11B2 ауыр ақауларында кортизол MR сигналын арттырып, натрий ұсталуын, гипертензияны, калий жоғалуын және алкалозды туғызуы мүмкін. Ренин мен альдостерон әдетте басылады. Жасы, ауырлығы және асқынулар бірдей емес.
Фермент қысқа тізбекті дегидрогеназа/редуктаза, SDR, тобына жатады. Rossmann-тәрізді кофактор бөлігі мен стероид қалтасы бар; Ser170, Tyr183, Lys187 катализге қатысады. Докингпен қалдыққа байланыс болжау дәрілік тиімділікті дәлелдемейді.
PDB 2IRW адам HSD1, NADP және адамантан эфирі тежегішін қамтиды; 2007 жылы жарияланып, Patel et al. жұмысына қатысты. 4C7J — өзгертілген адам ферментінің тежегішпен кешені, apo-форма емес. 1Y5R — кортикостеронмен тышқан HSD1, адам HSD2 емес. Құрылымдар адамда висцералдық май азаятынын көрсетпейді.
N-ұштық бөлік HSD1-ді бекітеді, каталитикалық домен қуысқа қарайды. Бұл дербес редокс-компартмент. Цитозольдік G6PD мен қуыстық гексоза-6-фосфатдегидрогеназа, H6PD, тұтас жасушада бірін-бірі алмастырмайды: мембрана пиридиннуклеотидтің еркін алмасуын шектейді.
Глюкоза-6-фосфат, G6P, G6PT/SLC37A4 арқылы кіруі мүмкін. H6PD оны тотықтырып NADPH жасайды, сондай-ақ лактоназа белсенділігі мен кеңірек субстраттық ерекшелігі бар. Екі реакцияны ажырату керек:
H6PD стероидты тікелей өзгертпейді, басқа ферментке кофактор береді. Жоғары NADPH/NADP+ қалпына келуді қолдайды, бірақ 100:1 не 500:1 барлық адипоцит үшін анықталмаған. Экспрессия, тасымал, метаболизм және кортизон ағынды шектейді.
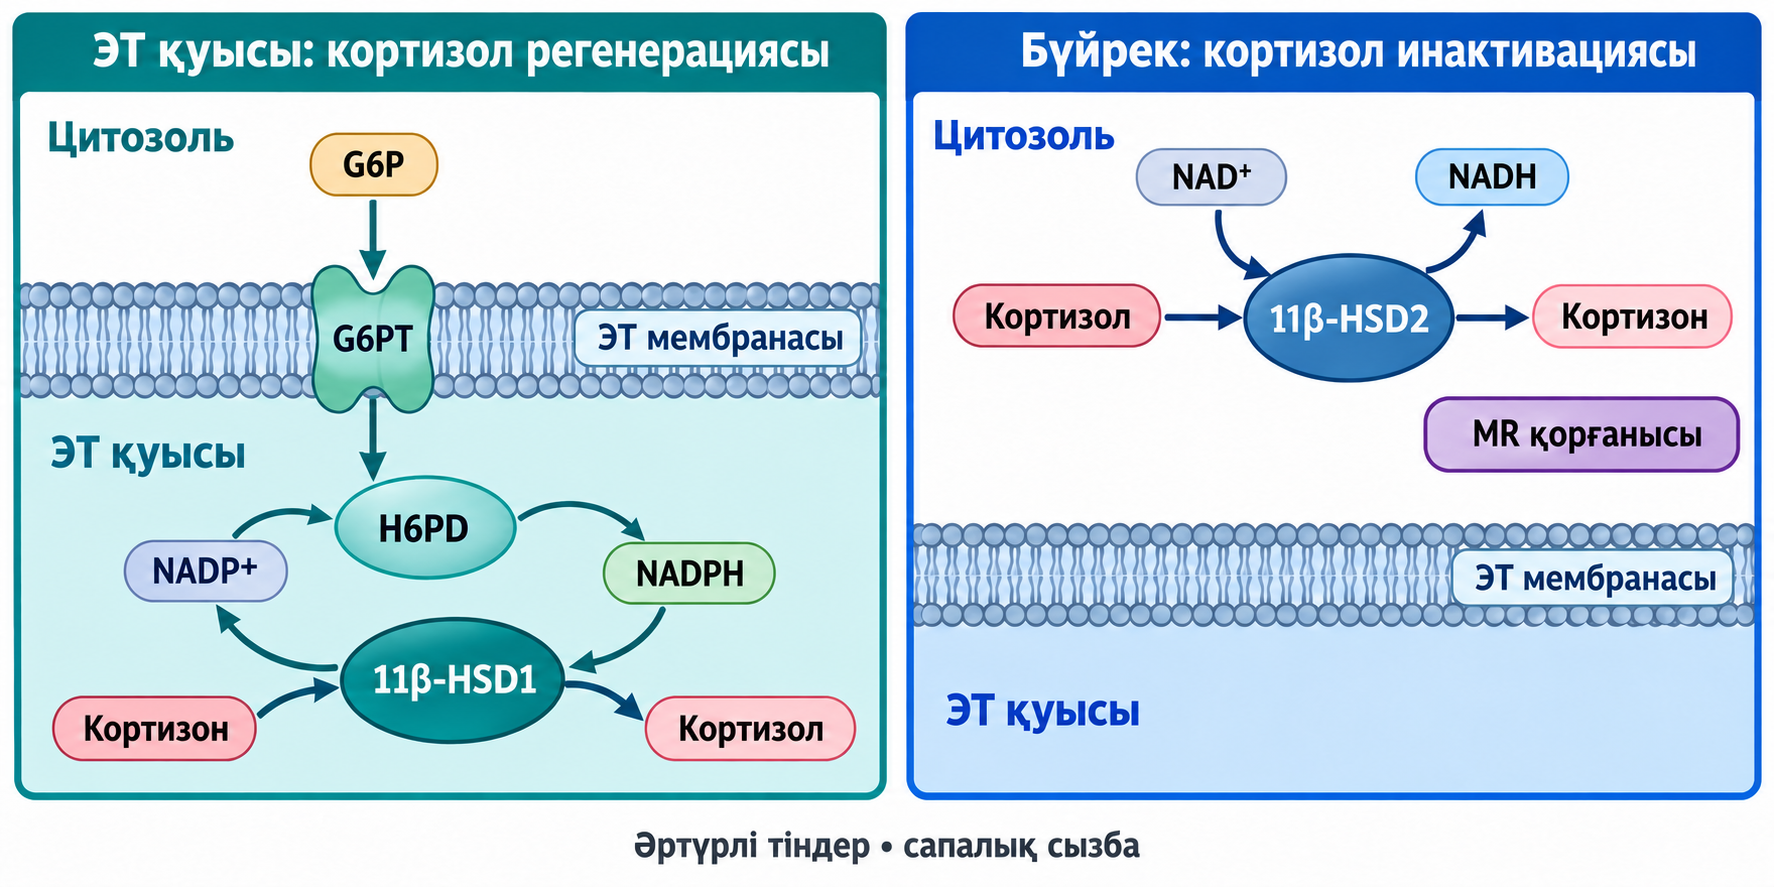
1-схема. Қуыстық G6PT–H6PD–11β-HSD1 жүйесі HSD2-нің цитозоль жағына қараған әрекетінен бөлек. Жебелер реакция мен кофактор қолжетімділігін көрсетеді, өлшенген жылдамдық не тін концентрациясын емес.
Фермент орны каталитикалық домен қарайтын жақты көрсетеді; мембрана якорьлары мен толық ақуыз топологиясы ықшамдалған. Панельдер әртүрлі тіндік жағдайды білдіреді, екі фермент әр адипоцитте бірге болады дегенді білдірмейді.
Lavery et al. (2006) H6PD жоқ тышқандарда 11-дегидрокортикостероннан кортикостерон регенерациясы жоғалып, кері тотығу артатынын көрсетті. Бұл тышқан глюкокортикоидтары. Нәтиже қуыстық түйісуді дәлелдейді, бірақ тағам глюкозасы адам майында кортизолды міндетті көтеретінін көрсетпейді.
Адамның сирек H6PD инактивациялық мутациялары да регенерацияны бұзады; белсенді қордан шығару күшейіп, ACTH өтемі мен бүйрекүстілік андроген артықтығы болуы мүмкін (Lavery et al., 2008). Жас пен жынысқа қарай гирсутизм, цикл өзгерісі және өзге белгілер көрінеді. Мұны HSD11B1 ақауынан ажыратады; кез келген ACTH жоғарылауы, безеу немесе поликистозды түсіндірмейді.
Шарбы және шажырқай майы қақпалық қанайналыммен байланысты. Ретроперитонеалдық, бүйрек маңындағы май да іште, бірақ ағуы мен функциясы бірдей емес. Іштің теріасты және бөксе-сан деполары да ерекшеленеді. Барлық висцералдық майды барлық теріасты маймен салыстыру айырмашылықтарды жасырады.
Bujalska et al. (1997) ұсынған «шарбының Кушинг ауруы» — жергілікті регенерацияның метафоралық гипотезасы, диагноз емес. Преадипоциттер, жетілген жасушалар және иммундық-стромалық фракция бөлек қасиетке ие. Өсіру фермент экспрессиясы мен бағытын өзгертеді. мРНҚ, ақуыз, микросомалық белсенділік, тұтас тіндегі ағын және тікелей өлшенген кортизол — әртүрлі өлшем.
Белсенділіктің артуы семіздікпен, соның ішінде теріасты маймен байланысты болуы мүмкін (Rask et al., 2002). Тұрақты бірнеше есе висцералдық басымдық пен міндетті теріастылық төмендеу заң емес. Жыныс, диабет, биопсия орны, жасушалар және әдіс әсер етеді. Podraza et al. (2024) семіздікте висцералдық тіннің кейбір гендері төмен болғанын, бірақ тікелей өлшенген кортизолда сәйкес айырма болмағанын көрсетті. Бұл регенерацияны жоққа шығармайды, бір генді әмбебап себепке айналдыруға жол бермейді.
Цитокин, C/EBP, гормон және қоректену HSD11B1-ді экспериментте реттейді, бағыт жасушаға тәуелді. Инсулин әрбір адам адипоцитінде H6PD/G6PT-ті үнемі күшейтіп, үздіксіз өзін-өзі арттыратын шеңбер жасайды деп айтуға болмайды.
Masuzaki et al. (2001) aP2-промоторымен артық экспрессиясы бар тышқандар жасады. Тіндік кортикостерон, висцералдық қор, әсіресе майлы рационда, және глюкоза-липид бұзылысы артты. Бұл белгілі үлгіде механизм жеткілікті екенін көрсетеді; промотор ерекшелігі мен генетикалық тегі шектейді. Адам семіздігінің қандай үлесі осылай туатынын анықтамайды.
Hsd11b1 тапшылығы кейбір жауапты әлсіретіп, көрсеткіштерді жақсартты (Kotelevtsev et al., 1997; Morton et al., 2001). Штамм, жыныс, рацион және мүше маңызды; барлық семіздіктен толық қорғамайды. UCP1/PGC-1α немесе бежевый фенотип өзгерісі қоспаның адам майын термогендік тінге айналдыратынын дәлелдемейді.
Липопротеинлипазаны, LPL, адипоцит және миоцит сияқты жасушалар синтездейді. Жетілуі ЭТ–Гольджи жолына және LMF1 тәрізді көмекші ақуызға тәуелді. Эндотелий GPIHBP1 бөлінген LPL-ді тін жағынан ұстап, тасымалдап, қанға қараған бетке бекітеді (Beigneux et al., 2007). GPI-якорь жасушалық мембранада, жасушадан тыс базалдық мембранада емес.
LPL ApoC-II және басқа реттегіштермен хиломикрон/VLDL триглицеридін гидролиздейді. Май қышқылдары CD36/FATP қатысатын жолмен еніп, FABP4-пен байланысып, ацил-CoA болып синтез не тотығуға кетеді. Кейбірі қанға өтеді; толық және тек висцералдық қармау жоқ. Каталитикалық белсенді мономер мүмкін, міндетті белсенді гомодимер түсінігі ескірген.
Fried et al. (1993) адамның шарбы және теріасты тінін жеті күн өсірді. Инсулин жалғыз теріасты LPL-ді арттырды, шарбылықты емес. Дексаметазон және бірлескен әсер депо мен жынысқа қарай өзгерді. Синергия екі депода, ал әйелдерде ең жоғары белсенділік теріастында басым болуы мүмкін. Тек висцералдық 5–10 еселік әмбебап өсім дәлелденбеген.
Өзгерістер ген, синтез және посттрансляциялық реттеумен байланысты. Бұдан адам LPL промоторында көршілес GRE/SRE, міндетті GR/SREBP-1c байланысуы немесе p300/CBP және SWI/SNF қатысуы автоматты шықпайды. Үйлесу бірнеше деңгейде болуы мүмкін.
ATGL/PNPLA2, HSL/LIPE және моноглицеридлипаза жасушалық қорды ыдыратады. ATGL триглицерид гидролизін бастайды, HSL диацилглицерол үшін маңызды. цАМФ–PKA HSL мен перилипин-1/PLIN1 фосфорлануын өзгертеді; ABHD5/CGI-58 ATGL-ді реттейді. Қалдық нөмірі түр мен изоформаға тәуелді, кеміргіштен адамға түсіндірмесіз көшірілмейді.
Инсулин тирозинкиназалық рецептор, IRS–PI3K–PIP3–Akt арқылы әрекет етеді. PDE3B цАМФ-ті ыдыратып, PKA-липолиз стимулын азайтады. Желінің қосымша реттегіштері бар, жалғыз міндетті Akt-фосфорланумен шектелмейді.
Тежеу күшті, бірақ толық емес. Негізгі айналым жалғасады, инсулинге төзімділікте тежеу әлсірейді. Үлкейген депо бір мезгілде қышқылды қабылдап әрі шығарады. «Шығыс толығымен жабық» түсінігі айналымға және семіздіктегі қақпалық қышқыл ағынына қайшы.
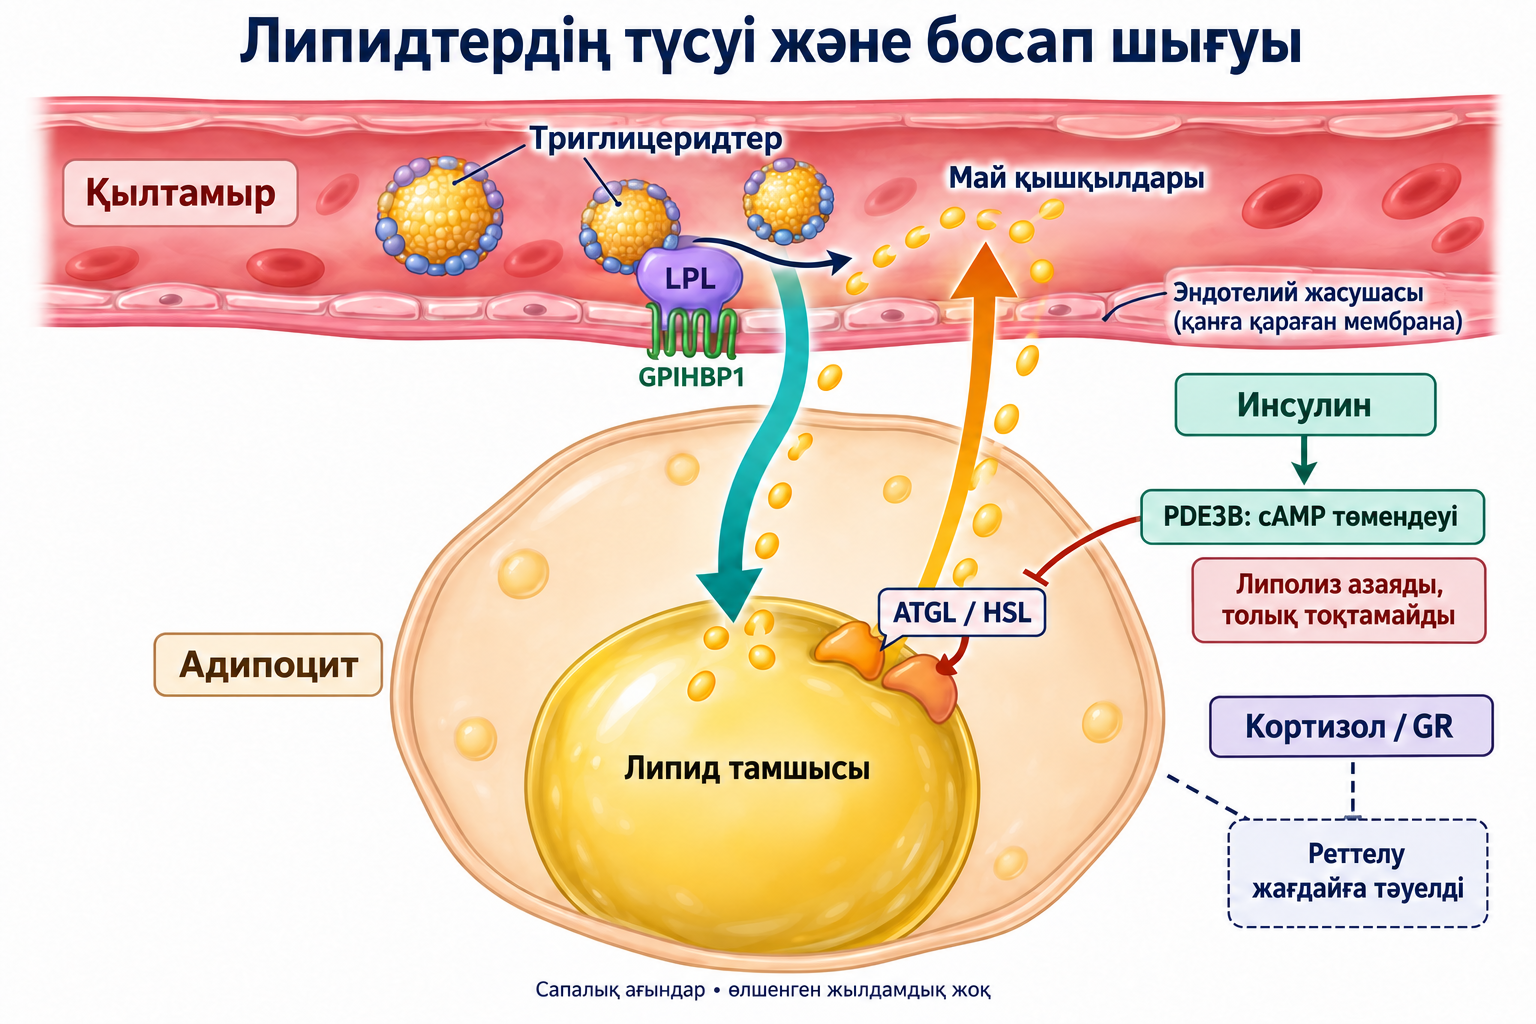
2-схема. Капиллярлық LPL және жасушалық липаза бөлек ағынды басқарады. Инсулин қор сақтауды қолдап, ынталанған липолизді азайтады; кортизол әсері доза, уақыт, жасушаға байланысты. Жебелер сандық емес; депо өсуін түсім, синтез, мобилизация және тотығу теңгерімі анықтайды.
GPAT, AGPAT, липинді қамтитын фосфатидатфосфатаза және DGAT глицерол-3-фосфат пен ацил-CoA-дан триглицерид түзеді. GLUT4-глюкоза көміртек пен глицерол қаңқасын береді, глицеронеогенез де қатысады. Бұл жаңа қышқыл жасайтын de novo липогенезден, DNL, бөлек. Akt/mTORC1–SREBP-1c ACLY, ACC, FASN, SCD1-ді реттейді; экспрессия ағынға тең емес.
Gathercole et al. (2011) глюкокортикоидпен негізгі DNL төмендегенін, бірақ төмен дозалы дексаметазонмен алдын ала әсер инсулиндік стимулды арттырғанын көрсетті. HSD1 тежегіші кортизон әсерін жойды. Бұл жағдайға тәуелді әрекет, міндетті анаболизм емес.
J_esterification — қордағы триглицеридтердің толық түзілу ағыны, J_hydrolysis — олардың толық гидролизі; өлшемі бірдей масса/уақыт. Май қышқылдарының түсуі, липогенез және қайта эстерификация бірінші ағынды қамтамасыз етеді. Гидролизден кейінгі бос қышқылдардың тотығуы тамшы массасынан екінші рет шегерілмейді.
M — қор массасы, t — уақыт, J — бірдей масса/уақыт өлшеміндегі ағын. Бұл сапалық есеп, клиникалық май формуласы емес; қайта этерификация мен липолиз ішкі циклді екі рет санамайтындай анықталады. Гормон ағын мен тәбетті өзгертеді, энергия теңгерімін жоймайды.
GR/NR3C1 N-ұштық трансактивация, мырыш саусақты ДНҚ домені, топса және C-ұштық лиганд доменінен тұрады. Hsp90/Hsp70, кошаперон, FKBP51/FKBP52, модификация және хроматин қолжетімділігі маңызды. Лиганд конформация мен ядролық тасымалды өзгертеді, барлық шаперон бір сәтте толық ажырауы міндетті емес. GRE және өзге факторлар транскрипцияны реттейді; канондық тізбек әрбір промоторда қызмет барын дәлелдемейді.
Депо сезімталдығы ерекшеленеді, бірақ барлық адамда 3–5 есе висцералдық басымдық жоқ. Жыныс, жетілу, изоформа және жергілікті метаболизм әсер етеді. Лиганд көбейгенде адаптацияға байланысты жауап тура пропорционал болмауы мүмкін.
Ұзақ айқын артық әсер бұлшықет ақуыз синтезін азайтып, ыдырауын арттырады. FoxO және MuRF1/TRIM63, atrogin-1/FBXO32 E3-лигазалары атрофия үлгілеріне қатысады; инсулин, GLUT4, mTOR өзгерісі де маңызды. Үлкен бел мен аз бұлшықет кортизолға тән ғана емес: жас, аз қимыл, тамақ, ауру, дәрі ықпал етеді.
Кушинг пен фармакологиялық артықтықта орталық май және әлсіздік клиникалық маңызды. Гиперкортицизмсіз кәдімгі семіздікке бүкіл бейнені көшірмейді. Теріасты қордың дұрыс жұмысы эктопиялық майдан қорғай алады; TOFI және эктопиялық май осы айырманы түсіндіреді.
Өсу тамыр жеткіліксіздігі, гипоксия, матрикс өзгерісі және жасуша өлімімен қатар жүруі мүмкін. Өлі адипоцит айналасындағы макрофагтар тәждік құрылым түзеді. IL-6, CCL2/MCP-1 өзара байланыстырады; TNF-тің маңызды көзі иммундық фракция. M1/M2 — оқу сызбасы, адам макрофагтарының барлық түрі емес.
AdipoR1/2 арқылы адипонектин AMPK, тотығу және сезімталдықпен байланысты, жағымсыз семіздікте жиі төмен. Кортизол ADIPOQ/PPARγ-ны әрдайым тікелей басып, 2–4 есе азайтады деген заң жоқ; глюкокортикоидтар өсіруде адипогенезге де пайдаланылады. Қабынуға қарсы және метаболизмдік әсер доза, уақыт, жасушаға тәуелді. Регенерация автоматты «цитокин дауылы» емес.
PAI-1/SERPINE1 фибринолизді шектейді, бірақ қанға май, бауыр, эндотелий, тромбоцит және басқа көзден келеді. Эксперименттік реттеу бүкіл тромбоз қаупін бір ферментке жатқызбайды; бірнеше фактор әсерлеседі.
Шарбы мен шажырқайдан ағу бауырға липид пен медиаторды жеткізеді, бірақ жалғыз көз емес. Nielsen et al. (2004) изотоп пен бауыр венасын катетерлеу арқылы спланхникалық липолиз үлесі 10%-дан төменнен 50%-ға жуыққа дейін екенін, висцералдық маймен артатынын көрсетті. Бұл тұрақты 3–5 есе концентрация емес. Теріасты тіні де жүйелік және бауырлық ағынға ықпал етеді.
Диацилглицерол–PKCε инсулин рецепторын бұза алады. Petersen et al. (2016) адам Thr1160-ын биохимиялық нысана ретінде анықтады; тышқанның ұқсас Thr1150-ын өзгерту кейбір майлы рацион әсерінен қорғады. Бұл адамның жалғыз механизмі емес. Липид түрі мен орны маңызды, церамид өзге жолды қолданады.
Глюкоза өндірудің толық тежелмеуі липогенезбен қатар жүреді — таңдамалы инсулинге төзімділік. Синтезге көмірсу, қышқыл, гиперинсулинемия және өзге сигнал да әсер етеді; бір жол толық сөнген, екіншісі барлық жасушада мінсіз сақталған емес.
Бауыр инсулинді рецептор, эндоцитоз, деградация және басқа реттегішпен тазартады, тек IDE емес. Алғашқы өту үлесі өзгермелі; стеатоздағы төмен клиренс гиперинсулинемияны арттыра алады, себеп бағыты мен ұйқыбез өтемі әртүрлі. Ашқарын индекстері жергілікті кортизолды өлшемейді: HOMA-IR, TyG және QUICKI.
Май ангиотензиноген сияқты РААЖ компонентін түзеді. Masuzaki et al. (2003) бөлек тышқан зерттеуінде қысым, тұзға сезімталдық және айналымдық өзгеріс көрсетті; AT1 бөгелуі гипертензияны жойды. Бұл адамдағы басты себепті анықтамайды.
Адамда симпатикалық белсенділік, натрий шығару, апноэ, тамыр және өзге фактор маңызды. Бүйрек маңындағы май механикаға әсер етуі мүмкін, бірақ өсу міндетті қысылу, ренин көтерілуі немесе рефрактерлік гипертензия емес. Альдостерон әсерін HSD2 тежелгендегі кортизол-MR сигналынан ажыратады.
Созылмалы күйзеліс тәуліктік төмендеу мен CAR-ды өзгертеді, бірақ жауап жеке. Әрдайым тұрақты гиперкортизолемия емес: жоғары, әлсіз реакция не уақыт ауысуы болады. Тегістелген қисық — байланыс немесе зерттеу фенотипі, семіздік себебінің нақты диагнозы емес.
Ұйқы аздығы, ауысым және әлеуметтік джетлаг глюкозаны және тамақ мінезін өзгерте алады. Ұйқы мен ось екі жақты әрекеттеседі. Ұйқысыздықты бір ядроның кортизолмен тежелуіне әкеліп тіреуге, түнгі өсу гормоны барлық адамда 60–80% түседі деуге болмайды. Импульс ұйқы құрылымы, жас, жыныс, метаболизмге тәуелді; бөлек «висцералдық майды түнде жағу» бағдарламасы емес.
Spiegel et al. (2004) 12 сау жас ер адамның қысқа ұйқы шектеуінде лептин, грелин және тәбет өзгерісін зерттеді. Зертханалық жағдай барлық созылмалы ұйқысыздыққа көшпейді. Жедел ұйқысыздықтағы төмен лептин мен семіздіктегі жоғары лептин әртүрлі контекст.
Dallman et al. (2003) comfort food үлгісі негізінен кеміргіш тәжірибелерін түсіндіреді: дәмді тығыз тағам, май қоры және гормондар созылмалы жауапты өзгертеді. Адам күйзелісте көп те, аз да жеуі мүмкін. Марапат, үйрену, қолжетімділік және әлеуметтік жағдай әсер етеді; міндетті «қант–серотонин–CRH өшуі–барлық энергияның шарбыға бірден түсуі» дәлелденбеген. Уақытша жеңілдік тағамды емге айналдырмайды.
INCB13739, MK-0916, AZD4017 және өзге таңдамалы молекула зерттелді. Нәтиже тін, ауру және сынаққа тәуелді; тізім бел азайтуға ұсыныс емес.
Rosenstock et al. (2010) метформинмен жеткіліксіз бақыланатын 2-типті диабеті бар 302 адамды бес доза не плацебоға 12 апта бөлді. Тәулігіне 200 мг кезінде плацебомен салыстырғанда HbA1c шамамен 0,6 пайыздық тармаққа, ашқарын глюкоза 24 мг/дл-ге, HOMA-IR 24%-ға төмендеді. Липид әсері әсіресе гиперлипидемиялық ішкі топта, салмақ өзгерісі аз болды. Бұл зерттелген режим, жеке доза емес.
| Өлшем | Түсіндірме | Дәлелдемейтін нәрсе |
|---|---|---|
| 12 апталық HbA1c | Метформинге қосылған қысқа әсер | Асқынудың алдын алу не барлық семіздікті емдеу |
| Глюкоза, HOMA-IR | Суррогаттың жақсаруы | Клэмппен өлшенген бауыр сезімталдығы |
| Липид, салмақ | Кейбір пайдалы өзгеріс | Сандық висцералдық депо азаюы |
| ACTH, андроген | Бақылауды қажет ететін өтем | Міндетті гирсутизм, алопеция, гиперплазия |
ACTH қайтымды, дозаға тәуелді, көбіне қалыпты аралықта өсті. Негізгі кортизол сақталып, әйелдердің еркін андроген индексі өзгермеді. Осы сынақтан клиникалық гиперандрогенизм шықпайды. Ұзақ қауіпсіздікте өтем мен прекурсор бәрібір маңызды.
Барлық бағдарламаның қиындығын тек «бүйрекүсті рикошеті» түсіндірмейді: әсер көлемі, тін экспозициясы, ұзақтығы, ауру мен қауіпсіздік бар. Goldberg et al. (2014), 4C7J-мен байланысты, кейбір тышқан үлгісінде нысанаға күшті әсерге қарамастан салмақ, глюкоза, инсулин өзгермегенін жазды. Нысананың тартымдылығы емге кепіл емес.
Hintzpeter et al. (2014) адам бауыры микросомасын және тазартылған HSD1-ді қолданды. EGCG тотықсыздануды IC50 шамамен 57,99 мкмоль/л, тотығуды 131,2 мкмоль/л кезінде тежеді. Кинетика субстрат/кофактормен бәсекені, докинг Lys187 байланысын ұсынды. IC50 — нақты талдаудың жартылай тежейтін концентрациясы, адам дозасы немесе адипоцит ЭТ қуысындағы еркін деңгей дәлелі емес.
Сіңу, метаболит, ақуыз және тін айырмасы көшіруді қиындатады. Экстракттан клиникалық көрсеткіш жақсаруы HSD1 механизмін дәлелдемейді. Тәулігіне 400–800 мг таза EGCG-ді тіндік гиперкортицизмге ұсыну негізсіз. EFSA (2018) 800 мг/тәулік не одан жоғары концентратты трансаминазамен байланыстырды; төменірек сенімді қауіпсіз шек анықталмады. Кәдімгі шай — бөлек экспозиция.
Hu et al. (2013) куркуминмен адам/егеуқұйрық HSD1 жасушалық тежелуін, жоғары концентрацияда HSD2 әсерін көрсетті. Егеуқұйрық 200 мг/кг екі ай алды. Бұл адам дозасы немесе эпигенетикалық толық өшіру емес. NF-κB, C/EBP, AMPK тәжірибеге қатыса алады, бірақ клиникалық нәтижені алмастырмайды.
Tagawa et al. (2013) ресвератролды егеуқұйрық май микросомасында, 3T3-L1-де зерттеді, адам эксплантатында емес. SIRT1/PGC-1α мен термогенездің өз дәлелі керек; адамның депосы міндетті өзгермейді. 2014 жылғы түзету бар, сондықтан қазіргі нұсқа ескеріліп, тексерілмеген нақты сандар қолданылмайды.
Дайындау барысында 2014 жылғы түзетудің толық мәтіні алынбады; нақты түзету тексерілген жоқ, оған тәуелді сандар мен сурет бөлшектері клиникалық қорытындыға негіз ретінде қолданылмайды.
| Зат | Тәжірибе жүйесі | Шегі |
|---|---|---|
| EGCG | Адам бауыр микросомасы, тазартылған фермент | Әдеттегі қабылдаудан емдік май HSD1 тежелуі дәлелсіз |
| Куркумин | Жасуша, жоғары дозалы егеуқұйрық | Адам дозасы мен висцералдық майына тікелей көшпейді |
| Ресвератрол | Егеуқұйрық микросомасы, тышқан желісі | Осы нысанамен адамдағы клиникалық пайда анықталмаған |
Пиперин, мицелла, фосфолипид пішіні қолжетімділікті өзгертеді, автоматты нәтиже емес. Пиперин дәрі метаболизміне әсер етуі мүмкін. Бір фармакокинетикалық жұмыстағы «2000%» барлық адамда глюкурондау сонша тежеледі деген емес.
Мия глицирризині мен глицирретин қышқылы сияқты метаболиті кортизол алмасуын, соның ішінде бүйректік HSD2-ні бұза алады. Бұл таңдамалы HSD1 тежегішінің қауіпсіз баламасы емес. IC50 зат пен жүйеге тәуелді, бір наномолярлық сан қауіпсіз тұтынуды белгілемейді.
Инактивация азайғанда дисталдық нефронда MR күшейіп, ENaC қатысатын натрий тасымалы және калий жоғалуы артады. Қысым, ісіну, гипокалиемия, алкалоз мүмкін; ауыр калий тапшылығы әлсіздік пен қауіпті аритмия тудырады. Ренин/альдостерон әдетте төмен — жүре пайда болған жалған минералокортикоид артықтығы немесе псевдогиперальдостеронизм.
Stewart et al. (1987) адамдағы механизмді көрсетті. Af Geijerstam et al. (2024) 28 сау жас қатысушының жасырын емес кездейсоқ кезектескен сынағында тәулігіне 100 мг глицирризин қышқылымен екі аптадан соң үйлік систолалық қысым артқанын және ренин/альдостерон басылғанын анықтады. Бұл қауіпсіз шек емес; мөлшер, ұзақтық, сезімталдық маңызды.
Гипертензия, жүрек/бүйрек ауруы, калийге әсер ететін дәрі болса, шай, тәтті, қоспадағы мияны анықтау қажет. Жүрек қағуы, айқын әлсіздік, қысым нашарлауы клиникалық бағалауды талап етеді. DGL-де глицирризин аз, бірақ қалдық, белгілеу, сапа өзгермелі; басқа мақсаттағы қауіпсіздік пен тиімділік автоматты емес.
Ашваганданың шағын сынақтары сезілген күйзеліс, ұйқы, сарысулық кортизолды бағалайды. Chandrasekhar et al. (2012) 64 ересекті 60 күн зерттеді. 27,9% шамасы топ ішіндегі өзгеріс, плацебомен дәл сонша айырма емес. Май HSD1 және висцералдық масса өлшенбеді. Тамыр экстракты мен тамыр-жапырақ қоспасы бірдей емес.
NCCIH ұзақ дерек аздығын, асқорыту әсерін, ұйқышылдықты, сирек бауыр зақымын атап өтеді. Жүктілікте қолданбайды; қалқанша без, аутоиммундық жағдай, дәрілік әрекет маңызды. Бір кортизол санын азайту қолдану көрсеткіші не бүкіл ось жақсаруы емес.
Hellhammer et al. (2004) 80 адамда фосфатидилсерин/фосфатид қышқылы кешенін, PAS, зерттеді. Үш аптадағы 400 мг стандартты күйзелістік гормон жауабын бәсеңдетті, жоғары доза сол әсерді бермеді. Бұл таза PS-тің әмбебап дозалық нәтижесі, CAR қалпына келуі немесе май азаюы емес. Спорт пен эмоцияның шағын тәжірибелері өз көрсеткішін өлшейді.
Магний маңызды, жеткіліксіз түсімді түзету орынды болуы мүмкін, бірақ кешкі «антикортизол» әмбебап режимі жоқ. Тұз, элементтік мөлшер, тағам, асқорыту, бүйрек және дәрілер ескеріледі. L-теаниннің шағын күйзеліс/таным зерттеуі жергілікті гиперкортицизм емін дәлелдемейді. Олар симптомды бағалауды алмастырмайды.
Артық салмақты тұрақты азайту жалпы тағам, қимыл, орта және қажет клиникалық емге сүйенеді. Тұтас өнім, талшық, жеткілікті ақуыз, жүйелі энергетикалық артықтықты азайту көмектесе алады. Қалыпты инсулин жауабы керек, жою мақсат емес. Физиологиялық кортизол барда көмірсу міндетті висцералдық семіздік жасамайды.
Sutton et al. (2018) предиабетті ерлердің шағын бақылаулы кезектескен сынағында 15:00-ге дейінгі алты сағаттық терезені он екі сағатпен, салмақты сақтап салыстырды. Кейбір сезімталдық көрсеткіші жақсарды. Бұл бәріне 08:00–16:00, кешкі астан толық бас тарту немесе HSD1 тежеу дәлелі емес. Диабет дәрісі, жүктілік, жеткіліксіз тамақтану, тағамдық бұзылыс жеке шешімді қажет етеді.
Тұрақты ұйқы, лайық күн жарығы, кешкі шамадан тыс жарықты азайту ырғақты қолдайды. Әсер уақыт, ұзақтық, спектр, жеке фазаға тәуелді; оянған сәттегі 10 000 люкс CAR-ды кепілді түземейді. Жайлы бөлме көмектеседі, 17–19 °C міндетті гормон емі емес. Қорыл, тыныстың тоқтауы, күндіз ұйқышылдықта апноэ бағаланады.
Аэробтық және күш жаттығуы метаболизм мен бұлшықетті қолдайды. Қарқын денсаулық және қалпына келуге тәуелді. «2-аймақ» барлық адамда 1,5–2,0 ммоль/л лактатқа не бір пульс пайызына тең емес. Жаттығуда кортизолдың уақытша өсуі қалыпты адаптация, HIIT зияны немесе без «сарқылуы» емес. Тұрмыстық «бүйрекүсті шаршауы» танылған диагноз емес.
Бел, қысым, липид, гликемия, дәрі тарихы, ұйқы, бұлшықет функциясы қауіпті сипаттайды. Бел шегі жыныс пен популяцияға тәуелді, HSD1 өлшемі емес. Бейнелеу депоны бағалайды, гормондық себепті анықтамайды.
Кушинг синдромы — ұзақ патологиялық глюкокортикоид артықтығы, Кушинг ауруы — гипофиздік ACTH-тәуелді түрі. Қалыпты таңғы кортизол жоққа шығармайды, бір жоғары сан растамайды. Endocrine Society тән не үдемелі белгілерде кешкі сілекей, тәуліктік еркін несеп кортизолы немесе дексаметазон сынағын жағдай мен қайталауға сай ұсынады. Барлық семіздікті жаппай немесе кездейсоқ кортизол/ACTH-мен тексеру ұсынылмайды.
Несеп (THF + allo-THF)/THE қатынасы HSD2, 5α/5β тотықсыздану және өзге үдеріске де тәуелді, тек шарбы HSD1-ін өлшемейді. Стероидтық тотықсыздану мен екінші фазалық конъюгация бөлек.
Иә, регенерация, рецептор, ақуыз, жасуша жағдайы өзгертеді. Бұл әрбір үлкен белде жергілікті артықтық барын дәлелдемейді.
Тін мен уақытқа қарай әрекет бөлек. Қармау, липолиз, жетілу, инсулин, түсім және шығын қатар өзгереді; таза теңгерім маңызды.
Тәжірибе тіндік концентрация, таңдамалылық не пайданы көрсетпейді. EGCG, куркумин, ресвератролдың HSD1 арқылы әмбебап дәлелденген режимі жоқ.
Бүйректік HSD2 бұзылып, MR күшейіп, қысым мен калий жоғалуы болуы мүмкін. Бұл қауіпсіз кортизол реттеу емес.
Жоқ. Тест клиника мен жағдайға тәуелді, қалыпты жауап қажет. Кең бағалау және жеке практикалық шара керек.
Ең сенімді тұжырым реакция, компартмент және нақты үлгіге қатысты. Адам семіздігінде тіндік әркелкілік, энергия теңгерімі, клиникалық жағдай және бір жолдан шығатын әмбебап емнің жоқтығы ескеріледі.
Иә, регенерация, рецептор, ақуыз, жасуша жағдайы өзгертеді. Бұл әрбір үлкен белде жергілікті артықтық барын дәлелдемейді.
Тін мен уақытқа қарай әрекет бөлек. Қармау, липолиз, жетілу, инсулин, түсім және шығын қатар өзгереді; таза теңгерім маңызды.
Тәжірибе тіндік концентрация, таңдамалылық не пайданы көрсетпейді. EGCG, куркумин, ресвератролдың HSD1 арқылы әмбебап дәлелденген режимі жоқ.
Бүйректік HSD2 бұзылып, MR күшейіп, қысым мен калий жоғалуы болуы мүмкін. Бұл қауіпсіз кортизол реттеу емес.
Жоқ. Тест клиника мен жағдайға тәуелді, қалыпты жауап қажет. Кең бағалау және жеке практикалық шара керек.