Мырыш пен тимулин: T-жасушалардың жетілуі және тимусты қалпына келтіру шектері
Тимулиннің мырышқа тәуелді белсенділігі, тасымал мен TCR сигналы; жас инволюциясы, оң және теріс сынақтар, зертхана шектері және қауіпсіздік.
Мырыштың иммунитетпен байланысы T-лимфоцит ізашарлары рецептор алып, іріктелетін тимусте айқын көрінеді. Мұнда микроэлемент ақуыздарға, жасушалық сигналдарға және металға тәуелді тимулин пептидіне қатысады. Бірақ пептид белсенділігін қалпына келтіру, тәжірибеде жасуша санын көбейту және адамдағы тимустың жасқа байланысты инволюциясын болдырмау — әртүрлі міндеттер. Олардың әрқайсысына бөлек өлшем мен дәлел деңгейі керек.
Мырыш тапшылығы иммундық қызметті бұзуы мүмкін, сондықтан оны түзетудің биологиялық негізі бар. Алайда жеткілікті тамақтанудан тыс қоспа тимусты жасартады, бір гормон бүкіл T-жасуша іріктелуін басқарады немесе ең қымбат химиялық түр ең жақсы клиникалық нәтиже береді деген қорытынды шықпайды. Мұндай тұжырымдарды бағалау үшін координациялық химиядан бақыланатын сынаққа дейінгі жолды қарау қажет.
Нонапептид, металл және биологиялық сынама
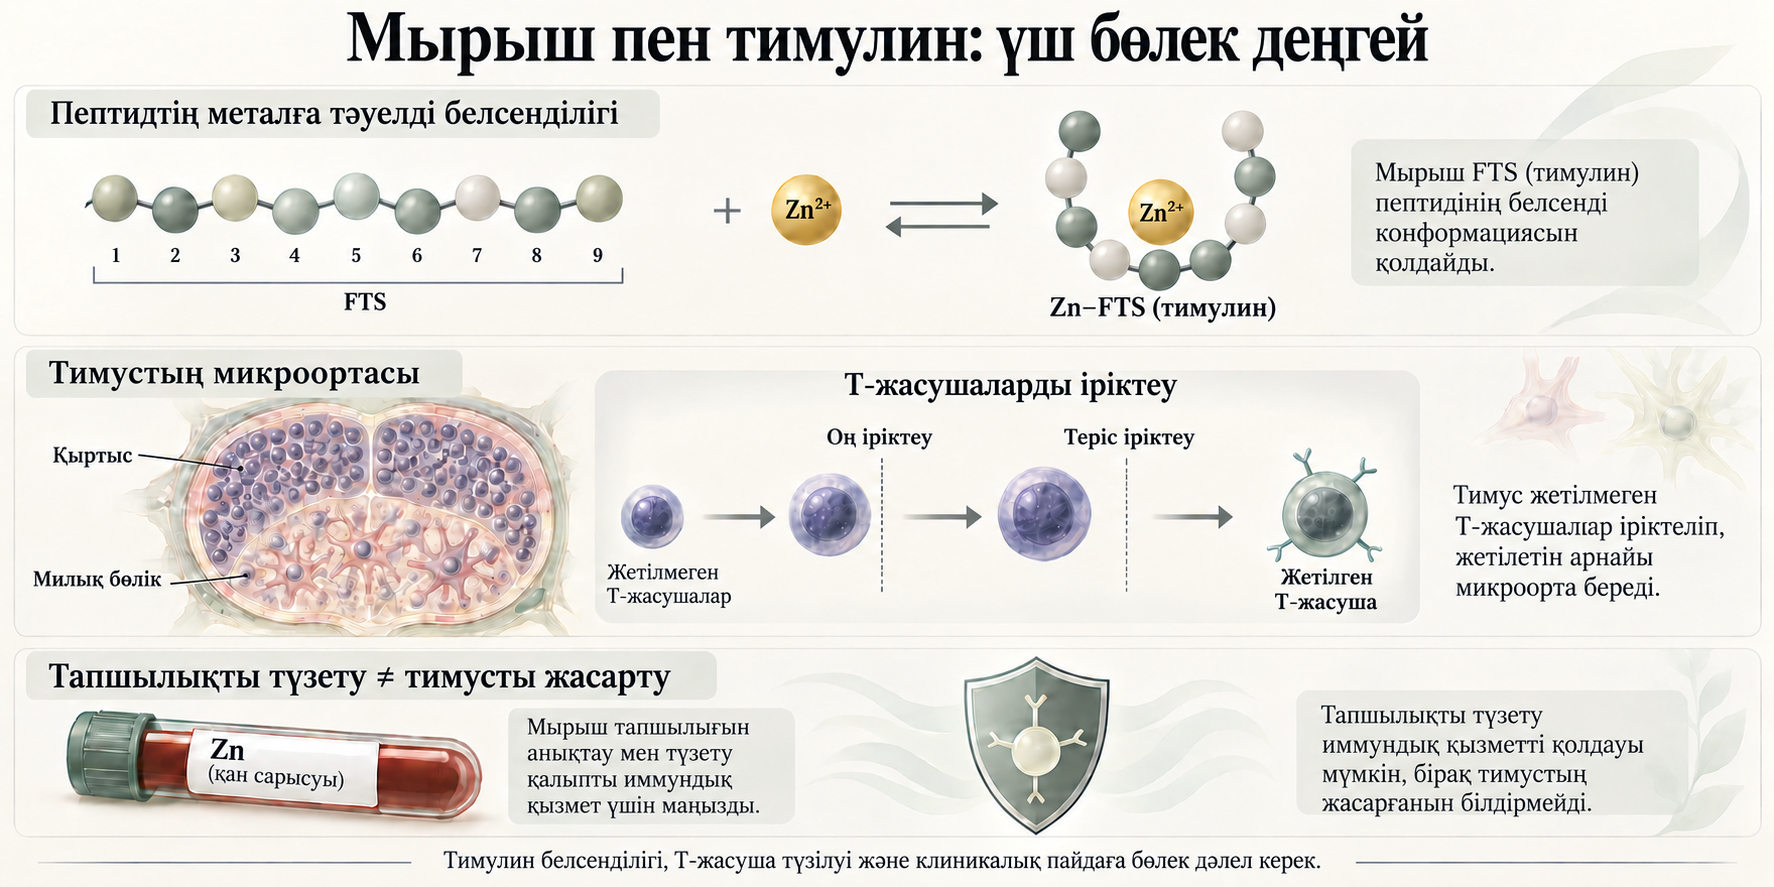
Тимулин тарихи сипатталған сарысулық тимус факторы FTS-пен байланысты. Пептид тізбегі — pGlu–Ala–Lys–Ser–Gln–Gly–Gly–Ser–Asn. N-ұштық пироглутамил — циклді лактам қалдығы, ал C-ұштық Asn бос карбоксил тобын сақтайды. Қысқа тізбекте үлкен ақуыздың күрделі төртіншілік ұйымы жоқ; конформациясы орта мен металл байланысуына тәуелді.
Dardenne классикалық жұмысында FTS-ті Chelex 100 хелаторымен өңдеу розетка түзілу сынамасындағы белсенділікті жойып, мырыш тұздарын қосу оны қалпына келтірді. Ең жақсы қалпына келу металл:пептид молярлық қатынасы 1:1 болғанда байқалды. Демек, металл алынғаннан кейінгі белсенділік жоғалуы «қайтымсыз» емес. Кейбір басқа тұздар әлсіздеу белсендіру берді; кез келген өзге металл үнемі толық инертті деген пікір де бастапқы тәжірибеге сай емес.
Бұл нәтиже өлшенген биологиялық әсердің металға тәуелділігін көрсетеді. Ол рецептор молекуласын, әр тимоциттегі санын немесе әмбебап аффиндік тұрақтысын автоматты анықтамайды. Розеткалық сынама — ағзадағы жаңа T-жасушаларды тікелей санау емес, функционалдық тәжірибелік жүйе. Сондықтан пробиркадағы сигналдың қалпына келуі адамның иммундық репертуары қалпына келгенінің дәлелі емес.
Координациялық химияда ортаны көрсету қажет
Cung және әріптестері нонапептидтің Zn(II) кешендерін диметилсульфоксид-d₆ ішінде әртүрлі металл:пептид қатынасында ЯМР арқылы зерттеді. Бір ион мен екі пептидтен тұратын кешенді және 1:1 кешенін ажыратты. Ұсынылған түсіндіруде біріншісіне Ser4 гидроксилі мен Asn9 ұштық карбоксилаты маңызды; 1:1 кешеніне Ser8 де қатысады. C-ұштық карбоксилатты аспарагиннің амидті бүйір тобымен шатастыруға болмайды.
Химиялық ығысулар, алмасу және стехиометрияға тәуелділік құрылым туралы ақпарат береді, бірақ қан плазмасындағы жалғыз өзгермейтін геометрияның кристаллографиялық дәлелі емес. Еріткіш, pH, концентрациялар және бәсекелес лигандтар координацияға әсер етеді. Нақты өлшемсіз физиологиялық арақашықтық, міндетті тетраэдрлік құрылым немесе әмбебап наносекундтық байланысу аралығын қосуға негіз жоқ.
Әдеттегі биологиялық жағдайда мырыш Zn²⁺ күйінде қалады және темір не мыс сияқты электрон тасымалдау циклдеріне қатыспайды. Мұндағы қызметі негізінен координациялық және құрылымдық. Алайда металлотионеин тиолдары сияқты лигандтардың тотығу-тотықсыздану өзгерістері мырыш қолжетімділігін жанама өзгерте алады. Антиоксиданттық әсер ионның өзі екі тотығу дәрежесі арасында ауысып, радикалды бейтараптандырады дегенді білдірмейді.
Тимус жасушаларды көбейтіп қана қоймай, іріктейді
Сүйек кемігі ізашарлары тимустың микроортасына өтеді; Notch, IL-7, хемокиндер және эпителиймен жанасу T-жасуша бағдарламасын қолдайды. Даму CD4 пен CD8 жоқ кезеңнен, екі корецептор бар кезеңнен және негізгі αβ-желілер үшін бір корецепторлы кезеңнен өтеді. CD44/CD25 негізіндегі DN1–DN4 белгілеулері тышқандарда кең қолданылады; әр комбинацияны адам кезеңдеріне ескертусіз көшіруге болмайды.
TCR қайта құрылуына RAG1/RAG2 кешені, ДНҚ үзілуі мен жалғануы қажет. Терминалдық дезоксинуклеотидилтрансфераза TdT сегменттер түйіскенде матрицасыз нуклеотидтер қосып, полимерленуде екі валентті металдарды пайдаланады. Бұл TdT-ні тимулин міндетті түрде тікелей қосатын тек мырышқа тәуелді ферментке айналдырмайды. Басқа ақуыздардың құрылымдық мырыш байланысу орындары мен полимеразалардың каталитикалық иондарын ажырату керек.
Қыртыста cTEC MHC арқылы пептидтер ұсынып, лайықты тануы бар жасушалардың оң іріктелуін қолдайды. β5t бар тимопротеасома MHC-I пептид жиынтығына әсер етеді, ал MHC-II өңдеуі өзге протеолиз жолдарын пайдаланады. Милық бөлікте mTEC пен дендриттік жасушалар теріс іріктелу мен толеранттылыққа қатысады; AIRE және FEZF2 тіндік антиген ұсынуды кеңейтеді. Бір бөлігі реттеуші желіге өтеді, көбі жойылады. Арнайылық пен толеранттылық тексерілмей тірі қалған жасушаның көп болуы жақсы иммунитетті міндетті білдірмейді.
Жасуша мырыш қолжетімділігін реттейді
Тіндегі жалпы мырыш, байланысқан металл және шағын алмасатын пул — бөлек шамалар. Металдың көбі ақуызбен байланысқан; бос ион концентрациясын сарысу көрсеткішіне немесе таблетка құрамына теңестіруге болмайды. Цитозоль, эндоплазмалық ретикулум, Гольджи аппараты және лизосомаларды бөлетін мембраналар пулдарды ажыратады, ал тасымал жергілікті өзгеріс жасайды.
Адамның ZIP/SLC39 отбасында 14 мүше бар; олар әдетте сырттан не органелладан тасымалдап, цитозольдік қолжетімділікті арттырады. ZnT/SLC30 отбасында 10 мүше бар; олар әдетте сыртқа не органеллаға тасымалдап, цитозоль пулын азайтады. Бұл отбасы жіктелуі, әр мүше тек мырыш тасымалдайтынының дәлелі емес: SLC30A10 марганец үшін маңызды. Нақты тасымалдаушының орналасуы мен бағыты тәжірибені түсіндіруде маңызды.
Металлотионеиндер көптеген цистеин тиолат лигандтарын қамтып, бірнеше мырыш ионын байланыстырады; жақсы зерттелген түрлерде жеті ионды кластерлер сипатталған. Бұл қозғалмайтын қойма емес, динамикалық буфер. Лиганд тотығуы мен басқа ақуыздармен алмасу қолжетімділікті өзгертеді. Жалпы буферлік қызмет әр эпителий жасушасының секрециялық аппаратындағы «металлотионеин → тимулин» тікелей жолының дәлелі емес.
Мырыш Ikaros, GATA3, BCL11B және ThPOK сияқты факторларды құрылымдық тұрақтандыруға қатысады. Бірақ FOXN1 forkhead отбасына жатады және мырыш-саусақты фактор емес. T-bet те ондай ақуыз емес: ол T-box факторы. Иммунитеттің тамақтануға тәуелділігі маңызды транскрипциялық реттеушілердің бәрін тікелей мырыш металлоақуызы етпейді.
TCR сигналы мен гормондық гипотеза — бөлек механизмдер
TCR-дің өз тирозинкиназалық белсенділігі жоқ. Lck CD3 кешенінің ITAM бөліктерін фосфорлап, ZAP-70 тартады және LAT/SLP-76 адаптер желісін құрады. PLCγ1 PIP₂-ні IP₃ пен диацилглицеролға бөледі: біріншісі кальций сигналын, екіншісі тиісті киназалардың белсенуін қолдайды. Кальмодулинге тәуелді кальциневрин фосфатазасы NFAT фосфорлануы мен ядролық орналасуын өзгертеді. Бұл — TCR физиологиясы, тимулин рецепторы автоматты шешілгенін білдірмейді.
Yu және әріптестері TCR қосылған соң мырыштың тез кіруін, әсіресе синапс астындағы компартментте байқады; ZIP6 басылуы жауапты әлсіретті. Металл қолжетімділігі артқанда SHP-1 тартылуы азайып, ZAP-70 фосфорлануы мен кальций сигналы өзгерді. Бұл мырыштың белсену табалдырығын реттеуін қолдайды, бірақ күнделікті қоспа әр адамда дәл сондай кеңістіктік динамика беретінін дәлелдемейді.
Киназалар ATP пайдаланады; көптеген фосфатазалар металл координациясы мен каталитикалық топтардың күйіне сезімтал. Сондықтан артықшылық пен тапшылық желінің әр түйініне әртүрлі әсер етеді. Бір фосфатазаны басу барлық T-жасушаның әмбебап пайдалы белсенуін дәлелдемейді. Тимулин тәжірибелеріндегі cAMP, PKA немесе кальций туралы мәлімет те барлық тінде Gs-рецептор мен нақты аффинділік түпкілікті анықталғанын білдірмейді.
Жасқа байланысты инволюция және тәжірибелік регенерация
Жас ұлғайғанда тимустың функционалдық микроортасы кішірейеді, эпителий өзгереді, май үлесі артады және жаңа аңғал T-жасушалар шығуы азаяды. Жыныстық стероидтар, ізашарлар, строма, стресс, инфекциялар және зақымдаушы ем әсер етеді. Тамақтану тапшылығы жағдайды ушықтыра алады, бірақ инволюцияны тек плазма мырышының төмендеуіне тіреуге болмайды. Өзгеріс мөлшері масса, эпителий тіні, бейнелеу не жасушалық шығу өлшенгеніне де тәуелді.
Bredenkamp және әріптестері эпителий жасушаларында FOXN1-ді мәжбүрлі күшейтіп, кәрі тышқан тимусының бірнеше сипаттамасын қалпына келтірді. Бұл транскрипциялық факторды нысаналы басқару тәжірибесі, қарт адамдарда ауыз арқылы мырыш беру сынағы емес. Соңғы нәтиженің ұқсастығы араласуларды өзара алмастырмайды. Жыныстық стероидтарға әсерден орган ұлғаюы да жас архитектура мен іріктелудің толық қайтуына кепіл емес.
Iovino және әріптестері тышқандардағы зақым мен трансплантациядан кейінгі қалпына келуді жасушадан тыс мырышпен, эндотелий GPR39 рецепторымен және BMP4 өндірілуімен байланыстырды. Зақымданған жасушалар сигналы эпителий микроортасын қолдады. Мұнда GPR39 мырыш сигналын таниды; тимулин рецепторы анықталған жоқ. Трансплантациядан кейінгі зақым қалыпты қартаюдан өзгеше, сондықтан бұл инволюцияның клиникалық алдын алу хаттамасы емес.
Адамдағы сынақтар: пайда бастапқы күйге тәуелді
Prasad қос соқыр сынағында 55–87 жастағы 50 ересек 12 айға күнделікті 45 мг элементтік мырыш беретін ауыздық глюконат не плацебоға рандомизацияланды; 49 адамның толық дерегі болды. Бастапқы нәтиже — инфекция жиілігі, қосымша нәтижелер — иммундық және тотығу көрсеткіштері. Мырыш тобында инфекция сирек болып, кейбір қабыну көрсеткіштері төмендеді. Шағын іріктеме мен тіркеу әдісі жалпылауды шектейді. Жұмыс тимус паренхимасының өсуін дәлелдемейді және танымал баяндауда оған телінген белсенді тимулиннің 84% өсуін негіздемейді.
Barnett ұзақ күтім мекемесіндегі 65 жастағы және одан үлкен, сарысу мырышы 70 мкг/дл-ден төмен 31 адамды қамтыды. Қос соқыр сынақта 16 адам күнде 30 мг, 15 адам салыстыру үшін 5 мг алып, үш ай бақыланды. Бастапқы нәтиже сарысу концентрациясының өзгерісі болды: бастапқы деңгей ескерілгенде орташа өзгеріс айырмасы 30 мг тобында 16% жоғары, p=0,007. Пролиферация жауабы мен шеткері T-жасуша саны өсті, бірақ пролиферацияны T-жасуша санына шаққанда мәнді айырма жоғалды. Бұл тапшылықты түзетуді қолдайды, тимустың жасаруын не мырышы жеткілікті популяциядағы пайданы дәлелдемейді.
ZENITH теріс нәтижелері осы шекара үшін маңызды. Жалпы еуропалық жоба 433 қатысушыны рандомизациялады, 387 адам алты айды аяқтады; Hodkinson иммунологиялық жарияланымы 55–70 жастағы сау адамдарды қарастырады. Глюконатпен күнделікті 15 не 30 мг элементтік мырыш плацебомен салыстырылды. B-жасушалардың уақытша төмендеуі және CD4/CD8 өзгерісі сияқты жеке нәтижелер иммундық күйге мәнді ұзақ жалпы әсер бермеді. Бүкіл жоба санын әр иммунологиялық талдау қатысушыларының саны деп көрсетуге болмайды. Жұмыс сау, мырышы жеткілікті адамдарда әмбебап регенерацияны қолдамайды.
TRIIM — 51–65 жастағы ерлердегі біріктірілген араласудың шағын бақыланбайтын пилоты; қорытынды талдауда тоғыз қатысушы болды. Бір жыл бойы өсу гормоны, DHEA және метформин қолданылды; хаттамада тәулігіне 50 мг деп сипатталған мырыш бөлек рандомизацияланбады. МРТ және иммундық көрсеткіштер өзгерді, эпигенетикалық жас бастапқыдан шамамен 1,5 жыл, календарлық уақыт барысына қатысты 2,5 жыл төмендеді. Бақылау тобы жоқ болғандықтан компоненттерді, табиғи ауытқуды және талдауды ажырату мүмкін емес. Мұндай сағаттар өмір ұзаруының, инфекция азаюының не мырыштың жеке тиімділігінің тікелей дәлелі емес.
Зертханалық көрсеткіштер нені өлшейді
Сарысу не плазма мырышы тамақтану мен ауру контекстінде пайдалы, бірақ қабыну, альбумин, қан алу уақыты мен тамаққа тәуелді. Қабынулық қайта бөлінудегі төмен мән барлық тін қоры таусылғанын міндетті білдірмейді. Клиникалық жағдай, қайталануы және зертхана талаптары маңызды. Жедел фаза маркерлері мәселесі hs-CRP мақаласында қаралған.
Эритроцит мырышын жасушаның бүкіл өміріндегі қордың сөзсіз сенімді өлшемі деп көрсетуге болмайды. Сілтілік фосфатаза — металлофермент, бірақ белсенділігі өзге себептерге де тәуелді; бір шек тапшылықты диагностикаламайды. Шаш талдауы ластану мен әдіске сезімтал. Мыс:мырыш қатынасы да әр металл өзгерісінің себебін табуды алмастырмайды.
TREC — рецептор қайта құрылғанда түзілетін ДНҚ фрагменттері; жасуша бөлінгенде көбеймейді. Концентрация жаңа тимус шығуына, шеткері пролиферацияға, жасуша құрамына және өміршеңдігіне байланысты. CD31 және аңғал фенотип қосымша мәлімет береді, бірақ бір сынаманы органның нақты жас өлшеміне айналдырмайды. Тимулиннің функционалдық сынамасы мен иммунологиялық анықтауы әр пішінді қамтуы мүмкін: сипатталған ферменттік иммуноталдауда бос және мырышпен байланысқан пептидтің иммунореактивтілігі бірдей болған. Сондықтан нақты әдісті түсіну қажет.
Тамақтану, препарат түрлері және қауіпсіздік
Ет, теңіз өнімдері, сүт өнімдері, бұршақ, жаңғақ және тұқымдар мырыш бере алады, бірақ түсуі мен сіңуі рационға тәуелді. Фитаттар металды байланыстырып, қолжетімділікті азайтады; тағам өңдеу олардың құрамын өзгертеді. Жеткіліксіз тамақтану, мальабсорбция, жоғалтулар және дәрі әсері себепті бағалауды қажет етеді. Энтеропатиялық акродерматитке әкелетін сирек тұқымқуалайтын ZIP4 бұзылысы барлық қартқа сондай доза тағайындауға үлгі емес.
Жапсырмада тұз массасы мен элементтік мырышты ажырату қажет. Глюконат, сульфат, цитрат, пиколинат және аминқышқыл кешендерінің құрамы мен көтерімділігі әртүрлі, бірақ сіңуін салыстыру инволюцияның алдын алудағы артықшылықты дәлелдемейді. Бисглицинат PEPT1 арқылы бүтіндей міндетті сіңіп, ZIP4 шектеулерінің бәрін айналып өтеді деуге болмайды. Шырышты қабық үшін зерттелетін мырыш-карнозин де T-жасуша шығуын қалпына келтіруге автоматты көшірілмейді.
Артық мырыш энтероцитте, соның ішінде металлотионеин арқылы, мыс байланысуын күшейтіп, ағзаға түсуін азайтуы мүмкін. Ұзақ артық жүктеме анемия, нейтропения және неврологиялық бұзылысы бар мыс тапшылығына әкеледі. АҚШ-та ересектердің барлық көзден мырыш тұтынуының көтерімді жоғарғы деңгейі тәулігіне 40 мг: бұл қалыпты тұтынудың популяциялық шегі, емдік доза не кез келген курс қауіпсіздігінің кепілі емес. Медициналық асыруға өз негіздемесі мен бақылауы керек.
Сынақтар кез келген мырыш дозасына бекітілген қатынаста мыс қосудың әмбебап ережесін бермейді. Екі металды көрсетілім бойынша бағалап, бір бақылаусыз қабылдауды екіншісімен өтемеу қажет. Мырыш тетрациклиндермен, фторхинолондармен және пеницилламинмен әрекеттеседі; режим нақты дәріге байланысты. Жасуша мәдениетінде ионофор қасиет көрсеткен полифенолдар адам тимусы реттелуін қауіпсіз айналып өтудің тексерілген тәсілі емес. Механизмді емге көшірудің ұқсас шектері куркуминоидтар мысалында талданған.
Мырыш координациялық химияны, ақуыз құрылымын және иммундық сигналдарды байланыстырады. Тимулин мұны айқын көрсетеді, бірақ бүкіл иммунобиологияны бір молекулаға қысқартпайды. Тапшылықты негізді түзету, тәжірибелік регенерация және жасқа байланысты инволюцияның дәлелденген алдын алуы бөлек тұжырымдар болып қалады. Соңғысына тек металл концентрациясы не маркер өзгерісі емес, тимус шығуы, толеранттылық, инфекциялар және қауіпсіздік өлшенетін бақыланатын жұмыстар қажет.
Жиі қойылатын сұрақтар
Тимулиннің қалпына келуі тимус жасаруын дәлелдей ме?
Жоқ. Пептид белсенділігі, тимус шығуы және клиникалық пайдаға бөлек өлшем керек.
FOXN1 мырыш-саусақты фактор ма?
Жоқ. Ол forkhead отбасына жатады; мырыш өзге иммундық ақуыздарға маңызды.
Қоспа сынақтарының бәрі оң болды ма?
Жоқ. ZENITH иммундық күйдің мәнді ұзақ жалпы жақсаруын таппады.
Кез келген мырыш дозасына бекітілген қатынаста мыс қосуға бола ма?
Сынақтар әмбебап ереже бермейді. Көрсетілім мен екі металдың күйін бөлек бағалау қажет.
Дереккөздер
- Dardenne M et al. Contribution of zinc and other metals to the biological activity of the serum thymic factor. PNAS. 1982.
- Cung MT et al. NMR study of a lymphocyte differentiating thymic factor. An investigation of the Zn(II)-nonapeptide complexes (thymulin). J Biol Chem. 1988.
- Métreau E et al. An enzyme immunoassay for synthetic thymulin. J Immunol Methods. 1987.
- Dardenne M, Pléau JM. Interactions between zinc and thymulin. Met Based Drugs. 1994.
- Yu M et al. Regulation of T cell receptor signaling by activation-induced zinc influx. J Exp Med. 2011.
- Bredenkamp N, Nowell CS, Blackburn CC. Regeneration of the aged thymus by a single transcription factor. Development. 2014.
- Iovino L et al. Activation of the zinc-sensing receptor GPR39 promotes T-cell reconstitution after hematopoietic cell transplant in mice. Blood. 2022.
- Barnett JB et al. Effect of zinc supplementation on serum zinc concentration and T cell proliferation in nursing home elderly: a randomized, double-blind, placebo-controlled trial. Am J Clin Nutr. 2016.
- Hodkinson CF et al. Effect of zinc supplementation on the immune status of healthy older individuals aged 55-70 years: the ZENITH Study. J Gerontol A Biol Sci Med Sci. 2007.
- Prasad AS et al. Zinc supplementation decreases incidence of infections in the elderly: effect of zinc on generation of cytokines and oxidative stress. Am J Clin Nutr. 2007.
- Fahy GM et al. Reversal of epigenetic aging and immunosenescent trends in humans. Aging Cell. 2019.
- NIH Office of Dietary Supplements. Zinc: Health Professional Fact Sheet.
- Polito A et al. Screening and recruitment procedure of late-middle aged and older subjects: the ZENITH study. Eur J Clin Nutr. 2005.
- He X et al. The zinc finger transcription factor Th-POK regulates CD4 versus CD8 T-cell lineage commitment. Nature. 2005.
- Georgopoulos K, Winandy S, Avitahl N. The role of the Ikaros gene in lymphocyte development and homeostasis. Annu Rev Immunol. 1997.