
Ана сүтінің олигосахаридтері: HMO, 2′-FL және нәресте микробиомы
HMO құрылысы, оны пайдаланатын бактериялар және 2′-FL, ішек тосқауылы, инфекциялар мен нәресте тағамы жөніндегі дәлелдер. Ересектер, синбиотиктер, аллергия және қауіпсіздік туралы бастапқы зерттеулердің шектеулерімен бірге талдау.
Ана сүтінің олигосахаридтері (HMO) — құрылысы мен биологиялық қасиеттері әртүрлі көмірсулар тобы. Олардың басым бөлігі аш ішекте қорытылмай, осы молекулаларды пайдалана алатын микроорганизмдерге жетеді. Кейбір HMO эпителий жасушаларымен, иммундық рецепторлармен және көмірсуды танитын микробтық ақуыздармен де әрекеттеседі. Зертханалық сынақтағы байланысу, микробиотаның өзгеруі және адамда аурудың алдын алу — бірдей нәтиже емес.
2′-Фукозиллактоза (2′-FL) — ең көп зерттелген өкілдердің бірі. Оны немесе бірнеше HMO-ны сүт қоспасына қосу ана сүтінің жекелеген құрамдастарын қайталайды. Ана сүтінде басқа гликандар, ақуыздар, липидтер және антиденелер де бар; бүкіл жүйенің қасиетін бір ингредиентке телуге болмайды.
1. Молекулалық құрылыс және ананың гендері
HMO глюкоза, галактоза, N-ацетилглюкозамин, L-фукоза және Neu5Ac деп белгіленетін N-ацетилнейрамин қышқылынан құралады. Тотықсыздандырғыш ұшында Galβ1–4Glc лактоза өзегі бар. Тізбектің ұзаруы, тармақталуы, фукозилденуі және сиалилденуі түрлі құрылымдар түзеді. Лакто-N-тетраоза (LNT) 1-типті Galβ1–3GlcNAc бөлігімен, яғни лакто-N-биозамен аяқталады. Лакто-N-неотетраозаның (LNnT) соңғы бөлігі 2-типті Galβ1–4GlcNAc — N-ацетиллактозамин. Үлкен молекулаларға тармақталған лакто-N-гексаозалар да кіреді.
Бейтарап фукозилденбеген, фукозилденген және қышқыл сиалилденген топтар үлгіні сипаттауға ыңғайлы. Алайда фукоза мен сиал қышқылы бір молекулада қатар кездесуі мүмкін. Барлық ана мен лактация кезеңі үшін тұрақты пайыздық арақатынас жоқ. Жалпы концентрация уызда жоғары болып, кейін төмендеуге бейім; 3-FL сияқты жеке молекулалар басқа бағытта өзгеруі мүмкін (Thurl және әріптестері, 2010).
FUT2 GDP-фукозадан фукозаны тасымалдап, 2′-FL мен лакто-N-фукопентаоза I үшін маңызды α1–2-байланыстар түзеді. 2′-FL құрылысы — Fucα1–2Galβ1–4Glc. FUT2 белсенділігі секреторлық мәртебені анықтайды. rs601338 нұсқасы кейбір популяциялардағы секреторлық емес фенотиптің бір бөлігін түсіндіреді, бірақ әлемдегі барлық себепті қамтымайды. FUT3 Lewis жүйесіне қатысты гликозилденуге, соның ішінде α1–4-фукозилденуге қатысады. Осы мәртебелердің үйлесімі HMO құрамын өзгертеді; ол секреторлық емес ананың сүтін құнарсыз етпейді және 3-FL-ді қоса барлық фукозилденген құрылым жоқ дегенді білдірмейді (Thurl және әріптестері, 2010; Lewis және әріптестері, 2015).
3′-Сиалиллактозада (3′-SL) Neu5Acα2–3Galβ1–4Glc, ал 6′-SL-де Neu5Acα2–6Galβ1–4Glc бар. Сиал қышқылының доноры — CMP-Neu5Ac. Дисиалиллакто-N-тетраоза, DSLNT, тетраоза қаңқасында екі сиалил тобын тасиды. Теріс заряд молекулалық әрекеттесуге әсер етеді, бірақ вирустарды әмбебап электростатикалық түрде тебуді қамтамасыз етпейді. Байланыс түріне қарап оны адам сүт безіндегі қай сиалилтрансфераза изоформасы түзгенін бірден анықтау мүмкін емес.
2. Бактериялық тасымал, ферменттер және ашыту
HMO-ның қорытылуға төзімділігі олардың құрылысына және сәйкес ас қорыту ферменттерінің шектеулі жиынтығына байланысты. Бұл нәресте ешбір β1–4-байланысты ыдырата алмайды деген сөз емес: лактаза лактозаны қорытады. Кейбір HMO қан мен несептен табылады, сондықтан олардың тағдыры тек тоқ ішектегі ашытумен шектелмейді (Goehring және әріптестері, 2014; Underwood және әріптестері, 2015).
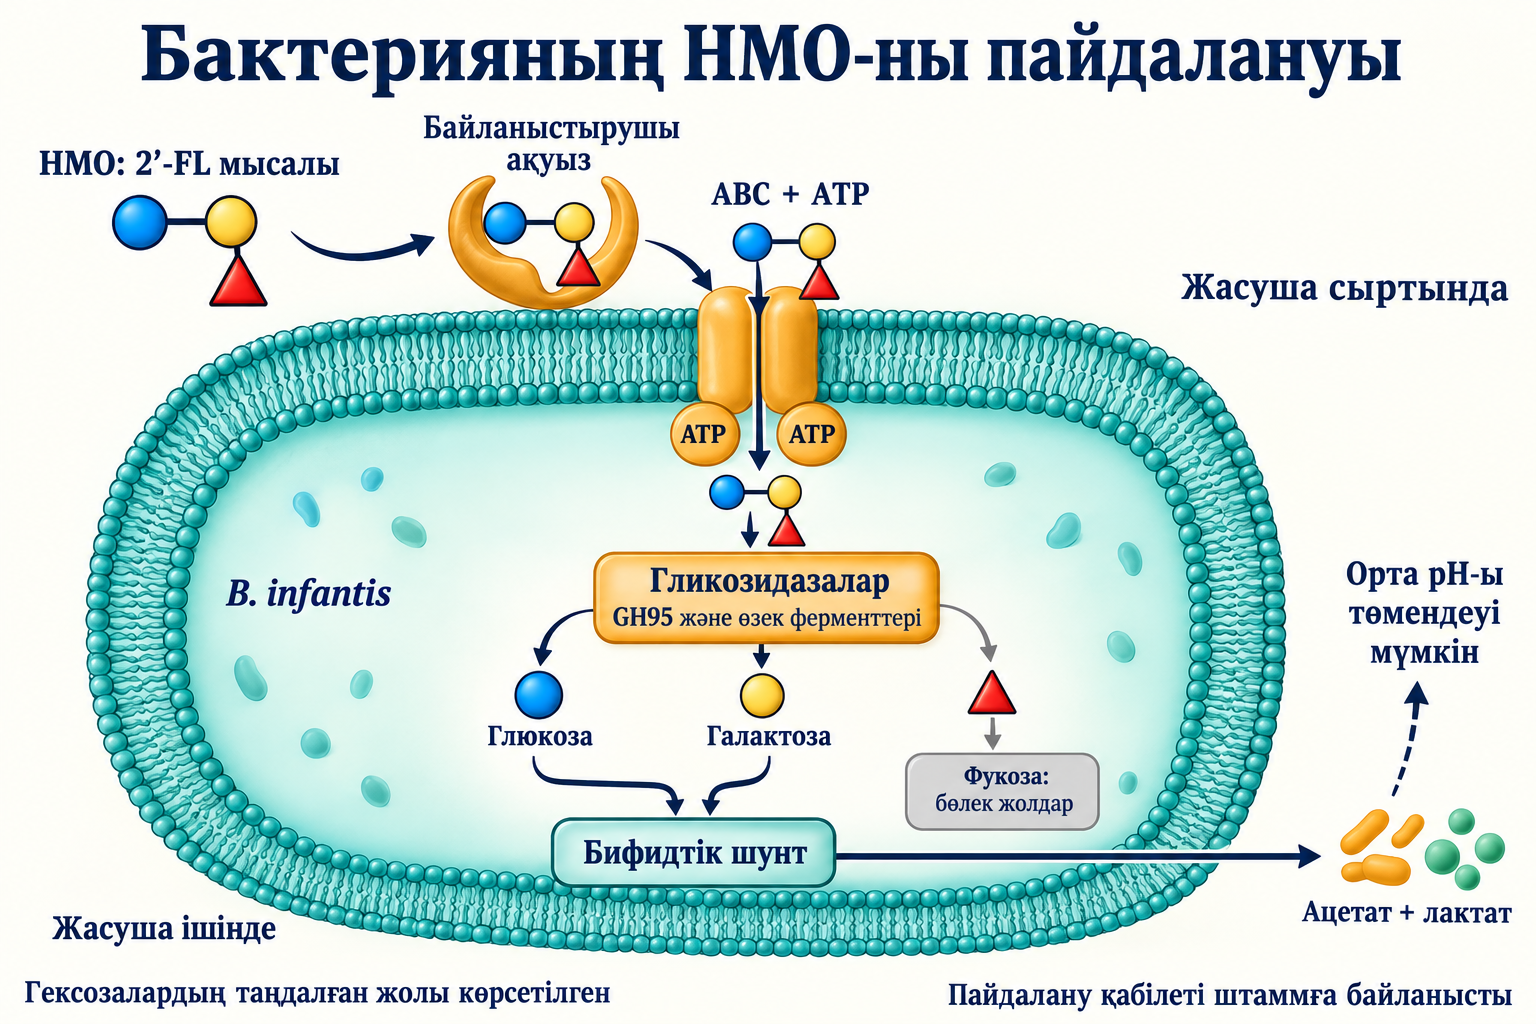
Bifidobacterium longum subsp. infantis ATCC 15697 геномында HMO тасымалы мен ыдырауына қатысты ұзындығы шамамен 43 кб H1 аймағы бар; басқа ферменттер бұл аймақтан тыс орналасады. Бұл штамм пайдаланатын субстраттардың ауқымын түсіндіруге көмектеседі. Бірақ барлық штамм мен кез келген коммерциялық пробиотиктің қасиеті бірдей екенін дәлелдемейді (Sela және әріптестері, 2008).
Стратегиялардың бірі — бүтін гликандарды жасушадан тыс субстрат байланыстырушы ақуыздармен ұстап, ATP-ке тәуелді ABC тасымалдағыштары арқылы мембранадан өткізу. Грамоң бифидобактерияларда бұл ақуыздарды грамтеріс жасушаға тән мағынада периплазмалық деп атау дұрыс емес. Фукозиллактозаны қабылдайтын жүйелердің талғамдылығы әртүрлі әрі ішінара сәйкес келеді (Sakanaka және әріптестері, 2019).
ATCC 15697-де GH95 α-фукозидаза Blon_2335 негізінен α1–2, ал GH29 Blon_2336 α1–3/4-байланыстарды ыдыратады. NanH1 — Blon_0646; NanH2 — HMO аймағымен байланысты Blon_2348. β-Галактозидазалар және N-ацетилгексозаминидазалар гликанның өзге бөліктерін ажыратады. B. bifidum ферменттеріне қолданылатын AfcA/AfcB атауларын тексермей B. infantis ақуыздарына көшіруге болмайды. Лакто-N-биоза фосфорилазасы мен лакто-N-биозидаза да екі бөлек фермент (Sela және әріптестері, 2011, 2012).
2′-FL гидролизі фукоза мен лактозаны босатады; лактоза кейін глюкоза мен галактоза бере алады. Фукоза міндетті түрде осы гексозалардың жолымен өңделмейді. B. bifidum-ның жасушадан тыс ыдырату өнімдерін көрші бактериялар пайдалана алады. Мұндай өзара қоректену — экологиялық байланыс, түрдің зиянды екенін көрсететін белгі емес. Bacteroides гликандарды қабылдау мен ыдыратудың, соның ішінде шырышты пайдалануға қатысты, өз жүйелеріне ие (Marcobal және әріптестері, 2011). B. breve және B. animalis subsp. lactis, соның ішінде BB-12, де штамм деңгейінде бағалануы керек: түр атауы барлық HMO-ны пайдалану қабілетін немесе клиникалық басымдығын анықтамайды.
Бифидтік шунт, қышқылдар және pH
Фруктоза-6-фосфат/ксилулоза-5-фосфат фосфокетолазасы бифидобактериялардың орталық метаболизміне қатысады. Гексозалар үшін көміртектің идеалданған теңгерімі:
Екі гексозадан үш ацетат және екі лактат молекуласы түзіледі. Бұл көміртектің бөліну үлгісі ғана; толық ATP теңгерімі немесе кез келген HMO-дан өнімнің тұрақты шығымы емес. Нақты арақатынас субстрат пен өсу жағдайына тәуелді.
Ацетат пен лактат ішек құрамының pH-ын төмендетіп, басқа микроорганизмдерге жағдайды өзгертуі мүмкін. Олар ішекті стерильдемейді және патогендердің жойылуына кепілдік бермейді. Басқа бактериялар бұл өнімдерді, соның ішінде бутират түзу үшін, пайдалана алады; қауымдастықтар жас пен тағамға қарай өзгереді. Нәжіс pH-ы күрделі ортаның бір қырын ғана көрсетеді, сау микробиомның дербес өлшемі емес (Frese және әріптестері, 2017).
3. Еритін гликандар және жабысуға бәсекелестік
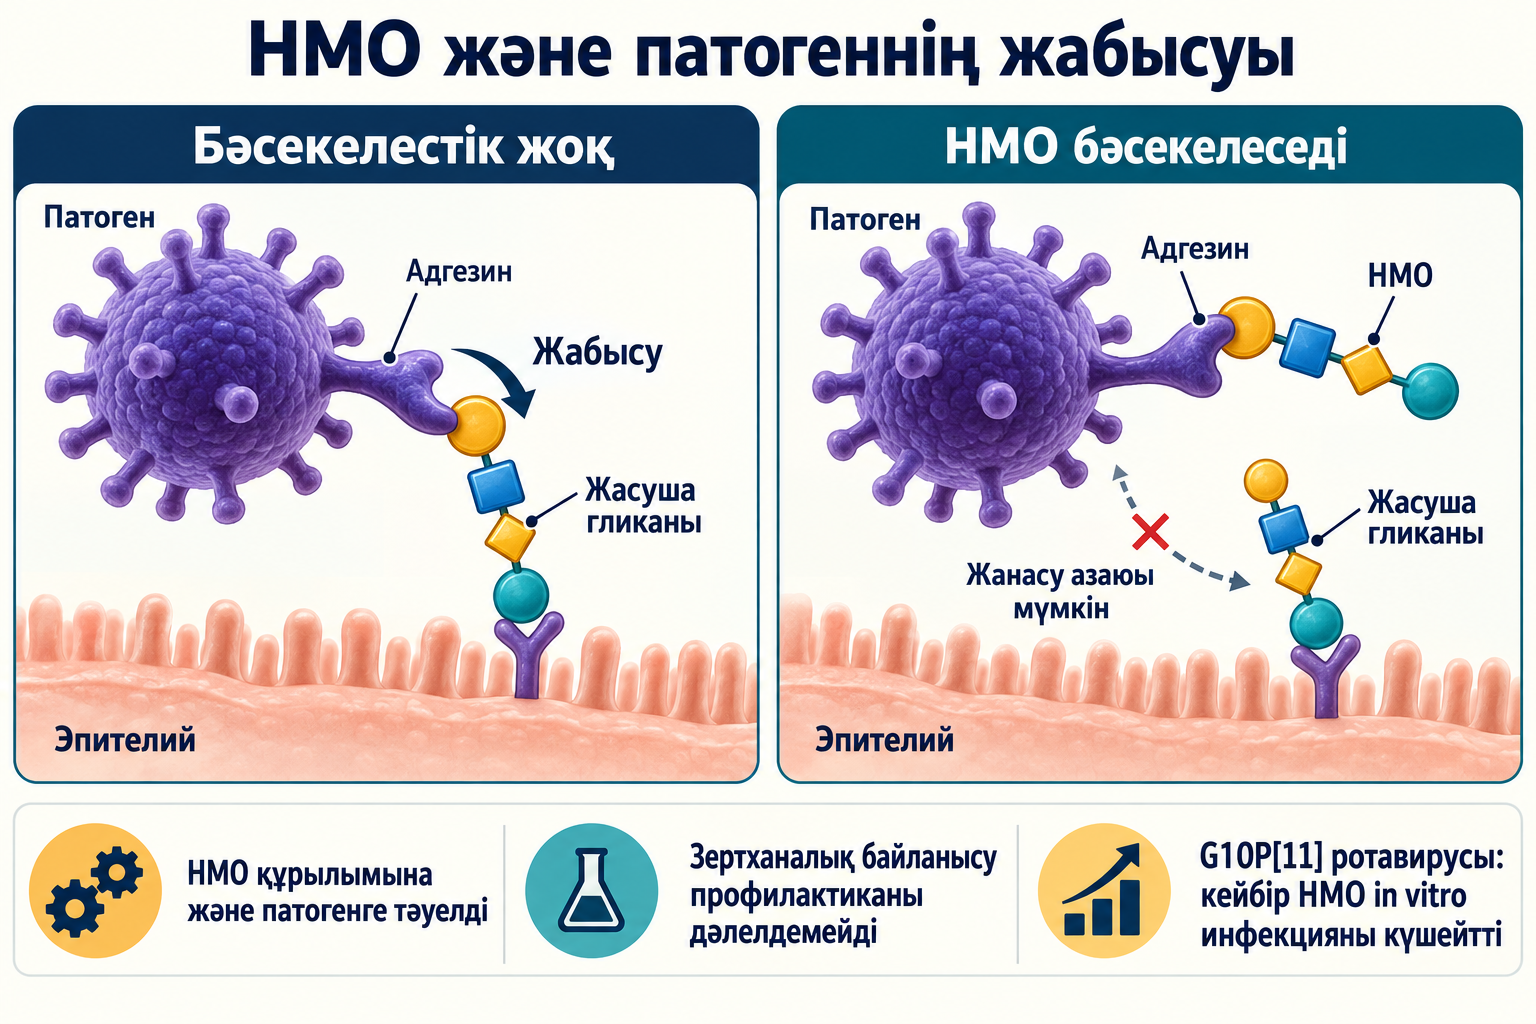
Кейбір HMO жасуша бетіндегі немесе шырыштағы көмірсу мотивтеріне ұқсайды. Микробтық адгезин осындай мотивті таныса, еритін гликан ағза лигандымен байланысу үшін бәсекелесе алады. Әсер HMO құрылысына, микробтық ақуызға, концентрацияға, рецептордың қолжетімділігіне және көпваленттілікке байланысты. Жабысудың азаюы микроорганизмнің өлгенін білдірмейді.
2′-FL-дің номинал молярлық массасы шамамен 488,44 г/моль. 1 г/л үшін:
Бұл — өлшем бірліктерін түрлендіру. Ол емдік дозаны анықтамайды және ішкеннен кейін рецептор маңында осындай концентрацияға жететінін дәлелдемейді.
Норовирус пен ротавирус — екі түрлі жағдай
Weichert және әріптестері (2016) 2′-FL мен 3-FL-дің GII.10 норовирусының VP1 капсид ақуызының P-доменімен байланысуын және вирус тәрізді бөлшектердің гликан лигандтары үшін бәсекесін зерттеді. Құрылымдық және модельдік нәтиже адамда инфекцияның алдын алуды немесе GII.4-ті қоса барлық генотиптен қорғануды анықтамайды.
Ротавирус басқа ақуыздарды, соның ішінде VP4-тің VP8* бөлігін пайдаланады. Ramani және әріптестері (2018) 2′-FL, LNT және 6′-SL сияқты кейбір HMO неонаталдық G10P[11] ротавирусымен жасушалардың жұқтырылуын күшейткенін тапты; бақыланған популяцияда сүт құрамы симптомды инфекциямен де байланысты болды. Бұл әмбебап вирусқа қарсы әсер туралы тұжырымға маңызды ерекшелік: түрлі патоген мен модель бір молекула тобына әртүрлі жауап бере алады.
Бактериялық адгезиндер, токсиндер және сүттегі вирустар
Campylobacter jejuni 2-типті Fucα1–2Galβ1–4GlcNAc H(O) мотивін тани алады (Ruiz-Palacios және әріптестері, 2003). Бақылау зерттеулерінде кейбір фукозилденген HMO диарея қаупінің төмендеуімен байланысқан, бірақ тамақтандыру, сүт құрамы және басқа факторлар себепті түсіндіруді қиындатады (Morrow және әріптестері, 2004). Бұл Campylobacter, энтеропатогенді немесе энтеротоксигенді E. coli, Salmonella және Helicobacter pylori штамдарының бәрінен бірдей қорғануды дәлелдемейді. Жабысу, вируленттілік экспрессиясы, бактерия өсуі және қабыну — бөлек нәтижелер.
Холера токсині мен E. coli-дің жылуға төзімсіз токсині күрделі GM1 ганглиозидін таниды. Бос сиалиллактоза толық GM1 молекуласы емес. Ұқсас қант бөліктері бұл токсиндерді немесе Clostridioides difficile A/B токсиндерін сенімді тежеуді дәлелдемейді. Тікелей байланысу сынақтары, функционалдық модельдер және клиникалық деректер қажет.
Сүт гликандарының DC-SIGN-мен әрекеттесуі HIV берілуінде де қарастырылған. Bode және әріптестері (2012) емшекпен емізу кезіндегі постнаталдық HIV берілуі мен HMO концентрациясы арасында байланыс тапты. Бұл HMO профилактикасының сынағы емес, бақылау салыстыруы; ол антиретровирустық шараларды алмастырмайды. Цитомегаловирус үшін де жеке HMO сандық бейтараптандыруды немесе барлық жағдайда қауіпсіз емізуді дәлелдемейді. HIV және CMV жөніндегі шешімдер клиникалық жағдайға және тиісті ұсынымдарға сүйенеді.
4. Эпителий, шырыш және ішек тосқауылы
Эпителийге тікелей әсер ашытудан бөлек зерттеледі. Caco-2Bbe және HT-29 модельдерінде кейбір HMO пролиферацияны азайтып, жіктелу көрсеткіштерін өзгертті; олар EGFR арқылы жасуша бөлінуін жай ғана күшейткен жоқ (Holscher, Davis және Tappenden, 2014). MAPK/ERK пен PI3K/Akt көптеген үдеріске қатысады, бірақ «барлық HMO → EGFR → ішекті қалпына келтіру» атты міндетті жол анықталмаған.
Зерттелген энтероцит модельдерінде 2′-FL CD14 экспрессиясын өзгертіп, LPS жауабын әлсіретті (He және әріптестері, 2016). Бұл DSLNT-дің TLR4–MD-2 кешеніне жоғары аффинді тікелей байланысуын дәлелдемейді. Рецептормен байланысу, экспрессияның өзгеруі және кейінгі қабыну сигналы ажыратылуы керек.
Трансэпителийлік электр кедергісі, TEER, иондардың өтуінің бір жағын өлшейді; декстран сияқты маркер ағыны өткізгіштіктің басқа қасиетін бағалайды. TEER-дің жоғарылауы адамда бактерия транслокациясы болмайтынын өздігінен дәлелдемейді. Natividad және әріптестері (2020) белгілі зақымдаушы ықпалдар жағдайында жасушалық модельдердің қорғалуын көрсетті. Олардың концентрациясы мен тәжірибе жағдайын адам тағамына автоматты түрде көшіруге болмайды.
ZO-1 тығыз түйіспе құрамдастарын жасуша ішіндегі құрылымдармен байланыстырады. Окклюдин мен әртүрлі клаудиндердің, соның ішінде иондарды талғап өткізудің, қызметі бірдей емес. MLCK реттелуі тосқауылға әсер етеді, бірақ оны барлық HMO әмбебап тежейтіні көрсетілмеген. Бұл айырмалар ішек өткізгіштігі және клаудиндер туралы материалда түсіндіріледі.
MUC2 — бокал тәрізді жасушалардың негізгі бөлінетін муцині; MUC1 мембранамен байланысты және беткі гликокаликске қатысады. Бір маркердің өзгеруі толық стерильді шырыш қабатын дәлелдемейді. Секреторлық емес ананың сүті міндетті түрде жұқа немесе ақаулы шырыш тосқауылын қалыптастырмайды.
DSLNT, некроздаушы энтероколит және перфузия
Некроздаушы энтероколит (НЭК) — әсіресе шала туған нәрестелер үшін маңызды ауыр ауру. Jantscher-Krenn және әріптестері (2012) жаңа туған егеуқұйрықтардағы НЭК моделінде DSLNT қорғанысын көрсетті. Ол механизмдерді зерттеуге көмектеседі, бірақ шала туған балада қоспаның тиімділігін анықтамайды.
Autran және әріптестері (2018) туғандағы салмағы өте төмен 200 ана–нәресте жұбын бақылады; сегіз нәрестеде НЭК болды. Сүттегі DSLNT деңгейінің төмен болуы аурумен байланысқан. Бақылау дизайны мен оқиға саны әмбебап диагностикалық шек белгілемейді және белгілі концентрациядан жоғары болса ауру болмайтынына кепілдік бермейді. Нәтиже ықтимал маркерді зерттеуді қолдайды, сүт таңдау не доза тағайындаудың дайын алгоритмін бермейді.
DSLNT осы саладағы жалғыз HMO емес. 2′-FL-дің мезентериялық перфузияға тәжірибелік әсері де сипатталған (Good және әріптестері, 2016). Тамыр перфузиясы мен эндотелийлік NO-синтаза сигналдары эпителийдің тығыз түйіспелерінен басқа деңгейге жатады. Оның негізі eNOS және оның ажырауы туралы материалда берілген.
Эндотелий гликокаликсінде протеогликандар мен гликозаминогликандар бар. Қанда HMO табылуы олардың осы құрылымға енгізілетінін немесе гепарансульфатты алмастыратынын көрсетпейді. Синдекан-1 бөлінуі гликокаликс зақымын көрсетуі мүмкін, бірақ HMO-ның арнайы қалпына келтіруін не тромбоз профилактикасын дәлелдемейді.
5. Иммундық рецепторлар және жүйелік экспозиция
DC-SIGN — кальцийге тәуелді мембраналық лектин. Noll және әріптестері (2016) кейбір сүт гликандарының танылуын көрсетті; бос 2′-FL үшін сол сынақтағы тежеуші концентрация шамамен 1 мМ болды. IC50 сынақтың құрылымына тәуелді және диссоциация тұрақтысы Kd-ға тең емес. Оны наномолярлық аффиндік немесе барлық тінде тиімді байланысу деп сипаттау дұрыс емес.
Селектиндер мен Siglec белгілі мотивтерді таниды. Селектиндер үшін кеңістікте ұсынылу және кейбір сиалил-Lewis құрылымдарындағыдай фукоза мен сиал қышқылының үйлесуі маңызды; қарапайым 2′-FL мен 6′-SL әмбебап антагонист емес. Bode және әріптестері (2004) тәжірибеде тромбоцит–нейтрофил кешендерінің өзгеруін байқады. Бұл механизмдік дерек, сепсистің дәлелденген емі емес.
Кейбір Siglec-тің ITIM сигналдары SHP-1/SHP-2 фосфатазаларын тартып, белсенуді шектей алады. Осы жалпы биологиядан тағамдағы бос 6′-SL міндетті түрде Siglec-9 үдерістерін, NADPH-оксидазаны немесе нейтрофилдің жасушадан тыс торларын тежейді деген қорытынды шықпайды. Лиганд, оның қызметі және жететін концентрация жеке дәлелденуі қажет.
Th1, Th2, Th17 және реттеуші T-жасушалардың жетілуі көптеген сигналға тәуелді. HMO мен микробтық метаболиттер ортаға әсер етуі мүмкін, бірақ әмбебап «иммунитетті ауыстыру» анықталмаған. Ацетат пен бутират гистондеацетилазаның бірдей тежегіші емес. IL-22 эпителий қорғанысын қолдауы мүмкін, сондықтан оны басу жалпы мақсат бола алмайды.
Goehring және әріптестері (2016) тамақтандыру зерттеуінің қосалқы тобында цитокиндерді өлшеді; емшек сүтімен қоректенетін бөлек референттік топ болды. Плазмадағы не ынталандырылған жасушалардағы цитокин өзгерісі — иммунологиялық нәтиже. Ол барлық инфекцияның алдын алуды немесе қоспаның ана сүтіне клиникалық теңдігін анықтамайды.
Кейбір HMO нәресте қаны мен несебінде анықталады (Goehring және әріптестері, 2014; Underwood және әріптестері, 2015). Бұл жүйелік қолжетімділіктің мүмкіндігін көрсетеді, барлық құрылымға тұрақты 1–2% биожетімділік белгілемейді. Ішектен тыс әсер үшін экспозиция, рецептор және нәтиже туралы дерек қажет; молекуланың табылуы RSV не несеп жолы инфекциясының профилактикасын дәлелдемейді.
6. Өндіру және ингредиент сапасы
Кейбір HMO арнайы құрастырылған штаммдарды, соның ішінде E. coli K-12 туындыларын, ашыту арқылы өндіріледі. Инженерия GDP-фукозамен қамтамасыз етіп, тиісті фукозилтрансфераза арқылы фукозаны лактозаға көшіреді. manB/manC, gmd және wcaG алғышарттардың түзілу қызметтерін сипаттайды; адамның FUT2-і барлық бактериялық фукозилтрансферазаның жалпы атауы емес. lacZ-ті белсенділіктен айыру сияқты өзгерістер өндіру платформасына тәуелді.
Ашытудан кейін жасушалар бөлініп, өнім тазартылады және қоюландырылады. Идентификация, басқа қант қоспалары, қалдық ақуыз, микробиологиялық сапа және сәйкес процестерде эндотоксин мен өндіруші организм материалы маңызды. Барлық өндірушіге бірдей шығым, 98% тазалық немесе барлық қоспаның мүлдем болмауын уәде етуге болмайды. FDA-ның GRN 852 жауабында нақты 2′-FL процесінің сипаттамалары бар; бұл әмбебап HMO стандарты емес, өнімге тән бақылау мысалы (FDA, 2019).
7. Нәресте қоспалары жөніндегі сынақтар нені көрсетеді?
| Зерттеу | Сұрақ | Түсіндіру |
|---|---|---|
| Marriage және әріптестері, 2015 | Әртүрлі қоспадағы мерзімінде туған балалардың өсуі және 2′-FL сіңуі | Нақты қоспалар мен сау қатысушылар жөніндегі дерек; емшекпен емізу бөлек референттік топ болды |
| Goehring және әріптестері, 2016 | Қосалқы топтағы иммунологиялық көрсеткіштер | Цитокин өзгеруі инфекциядан клиникалық қорғануға тең емес |
| Puccio және әріптестері, 2017 | 1 г/л 2′-FL және 0,5 г/л LNnT; кездейсоқ бөлінген 175 нәресте | Негізгі нәтиже — өсу, ауру мен дәрілер — қосымша нәтижелер |
| Berger және әріптестері, 2020 | Микробтық қауымдастық және кейінгі антибиотик қолдану | Қауымдастық талдауы бір түрдің себепті әсерін анықтамайды |
Puccio зерттеуінде HMO бар қоспа алты айға дейін берілді. Төрт айдағы салмақ қосу алдын ала белгіленген кем емес тиімділік критерийіне сай болды. Одан кейінгі бақылау HMO-ны бір жасқа дейін үздіксіз алу дегенді білдірмейді. Бронхит, төменгі тыныс жолы инфекциялары және антибиотиктер бойынша қосымша айырмалар әрі қарай зерттеуге негіз береді. Олар ата-аналардың хабарларын қамтыды және көптік салыстыруларға түзетусіз талданды. Сондықтан оларды әмбебап қорғаныс пайыздарына не отит профилактикасының дәлеліне айналдыруға болмайды. Өндірушінің қаржыландыруы да контекстің бөлігі (Puccio және әріптестері, 2017).
Микробиота өзгерісі аралық механизм болуы мүмкін, бірақ клиникалық нәтижеге кепілдік емес. 16S рРНҚ талдауы жақын түрлер мен штамдарды әрдайым ажыратпайды. Bifidobacterium туысының көбеюі дәл B. infantis EVC001 колонизациясын көрсетпейді (Berger және әріптестері, 2020).
8. Ересектер, тітіркенген ішек синдромы және ішектің қабыну аурулары
Elison және әріптестері (2016) 100 сау ересекті екі апта зерттеп, 2′-FL, LNnT не олардың үйлесімін, соның ішінде тәулігіне 20 г-ға дейінгі мөлшерді қолданды. Төзімділік пен микробиота бағаланды. Сау еріктілердегі қысқа сынақ барлық науқас үшін ұзақ қауіпсіздікті немесе тітіркенген ішек синдромын (ТІС) емдеуді анықтамайды.
Palsson және әріптестері (2020) ашық көпорталықты зерттеуге ТІС бар 317 адамды қабылдады; 245 адам курсты аяқтады. Олар 12 апта бойы 2′-FL:LNnT 4:1 қоспасын тәулігіне 5 г алды. Бастапқы деңгеймен салыстырғандағы жақсару ингредиент әсерін плацебодан, әдет өзгерісінен және симптомдардың табиғи ауытқуынан ажыратпайды, өйткені бақылау тобы болмады.
Iribarren және әріптестері (2020) микробиотаға бағытталған бөлек рандомизацияланған плацебо-бақыланатын сынақ өткізді; кейінгі жарияланым метаболиттер мен шырышты қабық жауабын қарастырды (Iribarren және әріптестері, 2021). Әр мақала клиникалық тиімділіктің тәуелсіз қайталанған дәлелі емес. Алдын ала таңдалған нәтиже, топтар арасындағы айырма және дизайн маңызды.
Ішектің қабыну ауруларында тәжірибелік тосқауыл қорғанысы немесе метаболит өзгеруі ойық жаралы колит не Крон ауруының ремиссиясына тең емес. ТІС, аш ішектегі бактериялардың шамадан тыс өсуі немесе ішектің қабыну ауруларына арналған әмбебап HMO емдеу хаттамасы анықталмаған. Зерттеу дозалары жеке тағайындау емес, зерттелген жағдайды сипаттайды.
9. Синбиотиктер, аллергия, ми және метаболизм гипотезалары
HMO субстратын сәйкес тірі штамммен біріктіру — синбиотикалық стратегия; нәтиже тағамға және бастапқы микробиотаға байланысты. Frese және әріптестері (2017) емшек сүтімен қоректенетін нәрестелерде EVC001-дің қабылдаудан кейін сақталуын сипаттады. Бұл кез келген жағдайда бірдей колонизацияға кепілдік бермейді. Ересектерде B. infantis пен HMO қайтымды орнығу берді, субстратсыз өмір бойы сақталуды қамтамасыз еткен жоқ (Button және әріптестері, 2022). ATCC 15697, EVC001 және басқа штамдарға жеке дерек қажет.
Тазартылған көмірсу мен тірі пробиотиктің қаупі әртүрлі. 2023 жылы FDA ауруханадағы шала туған нәрестелерге қолданылған кейбір пробиотикалық өнімдермен байланысты инвазивті инфекциялар туралы ескертті. Бұл HMO молекуласына қатысты ескерту емес, бірақ осал топта синбиотиктерді бағалауға маңызды (FDA, 2023).
Сиыр сүті ақуызына аллергиясы бар нәрестелерде екі HMO қосылған терең гидролизденген қоспа зерттелді. Өсу, төзімділік және қосымша инфекциялық нәтижелер аллергияның тезірек кетуін немесе бүкіл атопиялық марштың алдын алуды дәлелдемейді (Vandenplas және әріптестері, 2022). Өнімнің толық құрамы маңызды: HMO сәйкес емес ақуызды гипоаллергенді етпейді.
Сиал қышқылы ганглиозидтерге кіреді және жүйке дамуына маңызды NCAM полисиалилденуіне қатысады. Эндогендік синтез GNE-мен, ал полисиалилдену ST8SIA2/ST8SIA4-пен байланысты. Бұл сиалиллактоза қоспасынсыз міндетті тапшылық болатынын білдірмейді. Оның тағамдық изомерлері торай миының кейбір бөліктерінде ганглиозид сиал қышқылын өзгертті; жануардағы биохимиялық нәтиже балалардың интеллектісі жақсаратынын анықтамайды (Jacobi және әріптестері, 2016).
Микробтық қышқылдар FFAR2/FFAR3 сигналдары мен ішек гормондарына қатыса алады. Бұл HMO, GLP-1 және метаболизмге қызығушылықты түсіндіреді, бірақ адамдағы стеатоздық бауыр ауруын емдеуді, LPS-тің міндетті төмендеуін не инсулинге сезімталдықтың жақсаруын дәлелдемейді. Жалпы механизм GLP-1 және қоректік секретагогтар туралы материалда қаралған.
10. Қауіпсіздік және іс жүзіндегі түсіндіру
Қауіпсіздік бағасы белгілі құрылымға, өндіру процесіне, құрамға, тұтынушы тобына және қолдану жағдайына қатысты. FDA-ның нақты GRAS хабарламасына сұрақсыз жауабы өтініш берушінің сол жағдайдағы қорытындысына қатысты; ол дәріге немесе барлық денсаулық мәлімдемесіне мақұлдау емес (FDA, 2019). EFSA жаңа тағам ингредиентінің қауіпсіздігін бағалайды, ЕО рұқсаты — бөлек үдеріс. 2′-FL мен LNnT жөніндегі қорытынды барлық HMO-ны автоматты түрде қамтымайды (EFSA, 2022).
Ашытылатын көмірсудың көп мөлшері газ, кебу немесе нәжіс өзгерісін туғызуы мүмкін. Төзімділік қоспаға, мөлшерге және адамға тәуелді. Жануардағы токсикологиялық деңгейлерді нәрестенің емдік дозасына тікелей айналдыруға болмайды. HMO-ны өз бетінше қосу сыналған қоспаны қайталамайды және оның құрамын бағалауды қиындатуы мүмкін.
Әр қорытындыны нақты зерттелген молекула не қоспа, штамм, жас және нәтижемен байланыстыру қажет. HMO — тағам ғылымы мен микробтық экологияның маңызды бағыты. Белгілі қоспалардың өсуі мен төзімділігі, бақылау байланыстары және механизмдік тәжірибелер әртүрлі мағынаға ие; олар бірлесіп әмбебап емдеу хаттамасын құрмайды.
Дайындау әдісі: 2026 жылғы 8 қазандағы нұсқа таңдалған бастапқы зерттеулер мен ресми құжаттарды тексеруге негізделген. Толық мәтіндердің қолжетімді бөлімдері, аңдатпалар және бастапқы жарияланымдардың индекстелген сипаттамалары пайдаланылды; барлық мақала толық қолжетімді болған жоқ. Бұл — баяндау талдауы, жүйелі шолу, GRADE бағасы немесе тәуелсіз ғылыми рецензия емес.
Жиі қойылатын сұрақтар
HMO мен 2′-FL бір нәрсе ме?
Жоқ. HMO — олигосахаридтер тобы, 2′-FL — жеке құрылым. Оның нәтижесін барлық HMO-ға немесе тұтас ана сүтіне автоматты көшіруге болмайды.
Секреторлық емес ананың сүті нашар ма?
Секреторлық мәртебе кейбір HMO құрамын өзгертеді. Ол сүтті құнарсыз етпейді және баланың денсаулығын бір маркермен анықтамайды.
HMO инфекциядан қорғануға кепілдік бере ме?
Жоқ. Әсер патоген ақуызы мен гликан құрылысына тәуелді. Тәжірибелер және қосымша нәтижелер барлық инфекциядан бірдей қорғануды анықтамайды.
DSLNT-ді НЭК алдын алу үшін беруге бола ма?
Жануарлық және бақылау деректері әрі қарай зерттеуге негіз береді, бірақ шала туғандарға өз бетінше тағайындаудың дайын хаттамасын ұсынбайды.
HMO-ның қандай дозасы ТІС-ті емдейді?
Әмбебап емдік доза анықталмаған. Жарияланған мөлшерлер әртүрлі дизайн, қоспа және қатысушысы бар сынақтарға қатысты.
HMO бар қоспа ана сүтінің барлық қасиетін қайталай ма?
Ол кейбір көмірсуларды береді. Ана сүті күрделірек жүйе, бір ингредиенттен клиникалық теңдік туралы қорытынды шығаруға болмайды.
Дереккөздер
- Thurl et al. (2010). Variation of human milk oligosaccharides in relation to milk groups and lactational periods.
- Lewis et al. (2015). Maternal fucosyltransferase 2 status affects the gut bifidobacterial communities of breastfed infants.
- Sela et al. (2008). The genome sequence of Bifidobacterium longum subsp. infantis reveals adaptations for milk utilization within the infant microbiome.
- Sela et al. (2011). An infant-associated bacterial commensal utilizes breast milk sialyloligosaccharides.
- Sela et al. (2012). Bifidobacterium longum subsp. infantis ATCC 15697 α-fucosidases are active on fucosylated human milk oligosaccharides.
- Sakanaka et al. (2019). Evolutionary adaptation in fucosyllactose uptake systems supports bifidobacteria-infant symbiosis.
- Marcobal et al. (2011). Bacteroides in the infant gut consume milk oligosaccharides via mucus-utilization pathways.
- Weichert et al. (2016). Structural basis for norovirus inhibition by human milk oligosaccharides.
- Ramani et al. (2018). Human milk oligosaccharides, milk microbiome and infant gut microbiome modulate neonatal rotavirus infection.
- Morrow et al. (2004). Human milk oligosaccharides are associated with protection against diarrhea in breast-fed infants.
- Bode et al. (2012). Human milk oligosaccharide concentration and risk of postnatal transmission of HIV through breastfeeding.
- Holscher, Davis and Tappenden (2014). Human milk oligosaccharides influence maturation of human intestinal Caco-2Bbe and HT-29 cell lines.
- He et al. (2016). The human milk oligosaccharide 2′-fucosyllactose modulates CD14 expression in human enterocytes, thereby attenuating LPS-induced inflammation.
- Natividad et al. (2020). Blends of human milk oligosaccharides confer intestinal epithelial barrier protection in vitro.
- Jantscher-Krenn et al. (2012). The human milk oligosaccharide disialyllacto-N-tetraose prevents necrotising enterocolitis in neonatal rats.
- Autran et al. (2018). Human milk oligosaccharide composition predicts risk of necrotising enterocolitis in preterm infants.
- Good et al. (2016). The human milk oligosaccharide 2′-fucosyllactose attenuates the severity of experimental necrotising enterocolitis by enhancing mesenteric perfusion in the neonatal intestine.
- Noll et al. (2016). Human DC-SIGN binds specific human milk glycans.
- Bode et al. (2004). Human milk oligosaccharides reduce platelet-neutrophil complex formation leading to a decrease in neutrophil β2 integrin expression.
- Goehring et al. (2014). Direct evidence for the presence of human milk oligosaccharides in the circulation of breastfed infants.
- Underwood et al. (2015). Human milk oligosaccharides in premature infants: absorption, excretion and influence on the intestinal microbiota.
- Marriage et al. (2015). Infants fed a lower calorie formula with 2′-fucosyllactose show growth and 2′-fucosyllactose uptake like breast-fed infants.
- Goehring et al. (2016). Similar to those who are breastfed, infants fed a formula containing 2′-fucosyllactose have lower inflammatory cytokines in a randomized controlled trial.
- Puccio et al. (2017). Effects of infant formula with human milk oligosaccharides on growth and morbidity: a randomized multicenter trial.
- Berger et al. (2020). Linking human milk oligosaccharides, infant fecal community types, and later risk to require antibiotics.
- Elison et al. (2016). Oral supplementation of healthy adults with 2′-O-fucosyllactose and lacto-N-neotetraose is well tolerated and shifts the intestinal microbiota.
- Palsson et al. (2020). Human milk oligosaccharides support normal bowel function and improve symptoms of irritable bowel syndrome: a multicenter, open-label trial.
- Iribarren et al. (2020). Human milk oligosaccharide supplementation in irritable bowel syndrome patients: a parallel, randomized, double-blind, placebo-controlled study.
- Iribarren et al. (2021). The effects of human milk oligosaccharides on gut microbiota, metabolite profiles and host mucosal response in patients with irritable bowel syndrome.
- Frese et al. (2017). Persistence of supplemented Bifidobacterium longum subsp. infantis EVC001 in breastfed infants.
- Button et al. (2022). Dosing a synbiotic of human milk oligosaccharides and B. infantis leads to reversible engraftment in healthy adult microbiomes without antibiotics.
- Vandenplas et al. (2022). Effects of an extensively hydrolyzed formula supplemented with two human milk oligosaccharides on growth, tolerability, safety and infection risk in infants with cow’s milk protein allergy: a randomized, multi-center trial.
- Jacobi et al. (2016). Dietary isomers of sialyllactose increase ganglioside sialic acid concentrations in the corpus callosum and cerebellum and modulate the colonic microbiota of formula-fed piglets.
- FDA (2019). Agency response letter to GRAS Notice No. 852: 2′-fucosyllactose.
- EFSA (2022). Safety of the extension of use of 2′-fucosyllactose and lacto-N-neotetraose as novel foods in food supplements for infants.
- FDA (2023). FDA raises concerns about probiotic products sold for use in hospitalized preterm infants.
- Ruiz-Palacios et al. (2003). Campylobacter jejuni binds intestinal H(O) antigen (Fucα1,2Galβ1,4GlcNAc), and fucosyloligosaccharides of human milk inhibit its binding and infection.