
Грелин мен обестатин: энергия теңгерімі және тәуліктік ырғақ
GHRL пептидтерінің жетілуі, GOAT пен GHSR, тәбет жолдары, ұйқы және тамақтану уақыты. Бастапқы деректер, обестатин және тәжірибелік ем гипотезаларының шектері.
GHRL пептидтерінің жетілуі, GOAT пен GHSR, тәбет жолдары, ұйқы және тамақтану уақыты. Бастапқы деректер, обестатин және тәжірибелік ем гипотезаларының шектері.
Грелин ас қорыту жүйесінің күйін өсу гормонының бөлінуімен, тағам іздеумен және энергия теңгерімінің нейрондық реттелуімен байланыстырады. Оны «аштық гормоны» деу ыңғайлы, бірақ бұл атау ацилденген және ацилденбеген түрлердің айырмасын, үлгіні өңдеуге тәуелді өлшемді және басқа сигналдармен әрекеттесуді түсіндірмейді. Холецистокинин, PYY, GLP-1 және оксинтомодулин тоқтыққа қатысады; грелин осы желіде жұмыс істейді, әр тамақтануды жалғыз өзі анықтамайды.
Howard және әріптестері 1996 жылы өсу гормоны секретагогтарының рецепторын сипаттады; Kojima және әріптестері 1999 жылы оның табиғи ацилденген лиганды асқазаннан бөліп алды. Zhang және әріптестері 2005 жылы GHRL генінің басқа өнімі — обестатинді — тамақ қабылдауға қарама-қарсы әсер ететін реттеуші ретінде ұсынды. Кейінгі зерттеулер молекулалық механизммен бірге қайталанғыштық, жануар түрі және клиникалық нәтиже де маңызды екенін көрсетті. Энергия тапшылығына бейімделу — грелиннің негізгі физиологиялық контексі, бірақ осы ось қазіргі семіздікті түгел түсіндірмейді.
Адамның GHRL гені 3p25.3 аймағында орналасқан. Канондық препрогрелин 117 аминқышқылынан тұрады; 23 қалдықты сигналдық пептид алынғанда 94 қалдықты прогрелин қалады. Балама сплайсинг басқа транскрипттер береді, сондықтан бұл тізбек локустың барлық өніміне бірдей тән емес. Сигналдық пептид жаңа ақуызды эндоплазмалық ретикулум, ЭПР арқылы секреторлық жолға бағыттайды.
N-соңғы бөлік 28 қалдықты жетілген грелинге айналады. PCSK1 кодтайтын PC1/3 өңдеуші эндопротеаза ретінде тікелей тәжірибелік дәлелге ие: PC1/3 жоқ тышқандардың асқазанында жетілген грелиннің түзілуі бұзылған. Сол зерттеуде ацилдену аяқталған протеолизге тәуелсіз болды (Zhu et al., 2006). «Алдымен еркін грелин түзіледі, кейін GOAT әсер етеді» деген міндетті реттілік дұрыс емес. PC2 мен карбоксипептидаза E-ге адамдағы әр бөлімде бірдей дәлелденген рөл беруге болмайды. Зерттеудегі егеуқұйрық прогрелинінің ұзындығы адамдікінен өзгеше.
| Адамның канондық ізашар өнімі | Тізбек және ерекшелік | Мағынасы |
|---|---|---|
| Грелин, 28 қалдық | GSSFLSPEHQRVQQRKESKKPPAKLQPR; AG түрінде Ser3 O-ацил тобын тасиды | Әдеттегі жоғары аффинді GHSR-1a белсенуі үшін ацилдену қажет |
| Ацилденбеген грелин, UAG немесе des-acyl | Ser3 ацил тобынсыз сол тізбек | Әдеттегі GHSR-1a агонисі емес, бірақ міндетті түрде инертті емес |
| Обестатин, 23 қалдық | FNAPFDVGIKLSGVQYQQHSQAL–NH₂ | C-соңғы амидтену мен түрлік айырмашылық тәжірибеде маңызды |
Обестатин бөлігі ізашардың C-соңғы аймағында; адам препрогрелинінде әдетте 76–98 орындары көрсетіледі. Кеміргіш тізбегі өзгеше, сондықтан синтетикалық тышқан пептиді дәл сондай адам молекуласын тексермейді. C-соңғы амид глицинмен ұзартылған субстрат пен PAM арқылы түзіледі. Оның сатылы реакцияларына мыс, оттек және аскорбатты қамтитын тотықсыздандыру жүйесі қажет. Бұл амидтелген пептидтердің биосинтезі, C дәруменін қабылдау обестатиннің пайдалы әсерін арттырады деген дәлел емес. Иммунореактивтілікті жетілген пептид пен ізашар фрагменттерінің нақты анықталуынан ажырату керек.
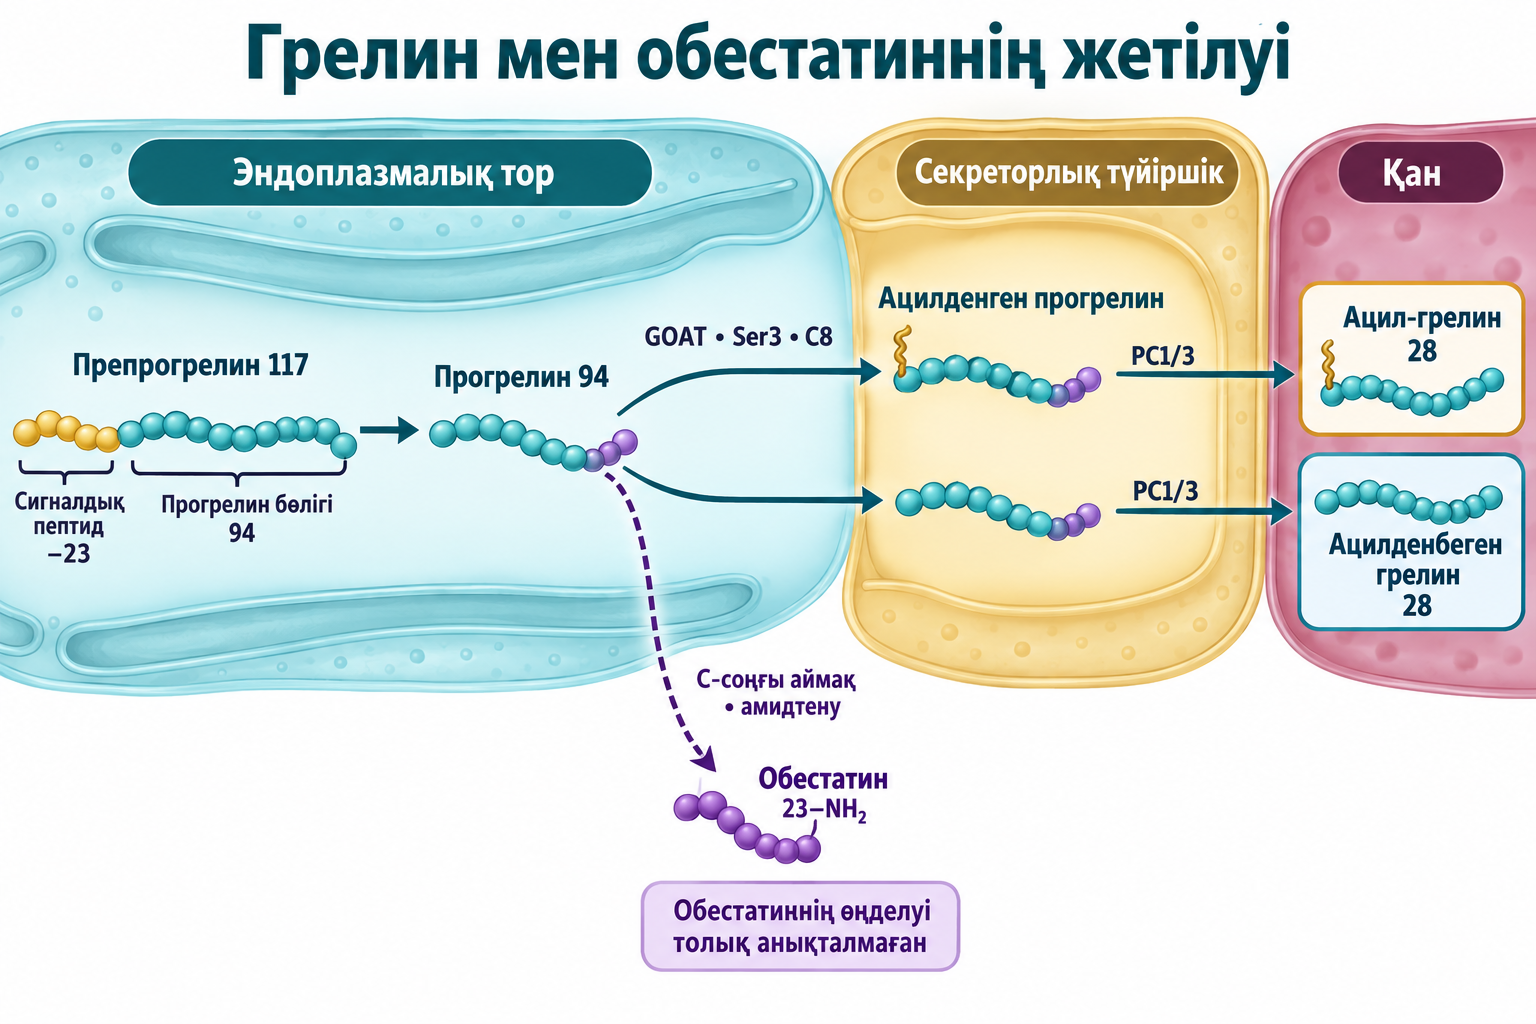
Қандағы грелиннің негізгі көзі — асқазанның оксинттік шырышты қабатындағы, әсіресе денесі мен түбіндегі эндокриндік жасушалар. Кеміргіштерде X/A-тәрізді, адамда P/D1 атауы қолданылады. Көптеген асқазан жасушалары жабық типті, қуысқа тікелей жанаспайды; ішекте ашық тип те кездеседі. Нутриенттер секрецияны әр жасушаға тікелей тиіп қана емес, метаболизмдік, паракриндік және жүйкелік сигналдармен өзгерте алады.
Симпатикалық β₁-адренергиялық сигнал, соматостатин, инсулин және субстрат қолжетімділігі реттеуге қатысады; жауаптың бағыты мен шамасы модельге тәуелді. Грелин ішекте және ұйқыбездің ε-жасушаларында, әсіресе даму кезеңінде де анықталады. Басқа тіндердегі аз мөлшерді әдіспен бірге бағалау қажет. Орталық синтез даулы: мида рецептордың болуы жергілікті көп өндірілуін дәлелдемейді. Асқазанның 70–80% деген тұрақты үлесін барлық жағдай мен талдауға көшіруге болмайды.
Yang және Gutierrez топтары 2008 жылы тәуелсіз түрде MBOAT4, ghrelin O-acyltransferase, GOAT ферментін анықтады. Бұл секреторлық жолдағы MBOAT тұқымдасының интегралдық мембраналық ферменті. Ол ацил-КоА-дан ацил тобын Ser3 гидроксиліне тасып, күрделі эфирлік байланыс түзеді. Адамдағы негізгі белгілі ацил-грелин октаноил, C8 тобын тасиды; басқа нұсқалар да сипатталған.
Теңдеу топтың тасымалын көрсетеді, міндетті түрде еркін 28 қалдықты пептидтің реакциясын емес. Ізашар жетілу аяқталмай тұрып модификациялана алады. Октан қышқылы белсендірілген түрде қолжетімді болуы керек. Тағамдық орта тізбекті липидтер субстратқа әсер етуі мүмкін, бірақ MCT арқылы тәбетті әмбебап басқаруды дәлелдемейді. ACSF2-нің міндетті арнайы рөлі мұнда анықталған емес. C6/C8/C10 салыстыруы субстрат пен жағдайға тәуелді: қанда C8 басым болуы GOAT әр in vitro талдауда C8 үшін ең аз Km көрсетеді дегенді білдірмейді.
Taylor және әріптестерінің 2013 жылғы топологиялық зерттеуі 11 трансмембраналық спираль мен бір қайтымды ілмекті қолдайды. Бұл модельде His338 люмен жағында, Asn307 цитозоль жағында орналасады. Екеуін ЭПР қуысына бірге орналастырып, дәлелденген қарапайым каталитикалық жұп деу дұрыс емес. Мембраналық құрылым ацил-КоА мен пептид қолжетімділігін қалай байланыстыратынын топология, мутагенез және құрылымдық модельдер зерттейді. Сызба тәжірибеде шешілген атомдық құрылымға тең емес.
Ацил-грелин, AG, GHSR-1a-ны тиімді белсендіреді. UAG-де сол әдеттегі агонистік әсер жоқ, бірақ метаболизм, жасуша тіршілігі және тамыр жауаптарына GHSR-тәуелсіз әсерлер сипатталған. Олардың рецепторлық негізі мен физиологиялық маңызы толық анықталмаған. «Белсенді емес қалдық» деу де, UAG-ді AG-дің дәлелденген емдік антагонисі деу де қате.
Плазмада ацилденбеген иммунореактивтілік жиі басым, бірақ AG 10–20%, UAG 80–90% — өзгермейтін тұрақты емес. Эфирлік байланыс тұрақсыз: температура, өңдеудің кешігуі, қышқылдандыру, эстераза тежегіштері және антидене ерекшелігі нәтижені өзгертеді. Бутирилхолинэстераза мен басқа гидролазалар деацилдену қатысушылары ретінде зерттелген. Барлық әдіс, доза және күй үшін бір ыдырау жылдамдығы немесе жартылай өмірі негізделмейді. Бірдей өңделген үлгіде AG, UAG немесе жалпы грелин нақты көрсетілуі керек.
GHSR 3q26.31 аймағында орналасады. Толық GHSR-1a 366 аминқышқылы мен жеті трансмембраналық спиральдан тұрады. Шамамен 289 қалдықты GHSR-1b бес спиральды сақтайды және өздігінен жұмыс істейтін әдеттегі грелин рецепторы емес. Бірге экспрессиялау модельдерде GHSR-1a тасымалы мен сигналын өзгертеді, бірақ әр тіндегі әмбебап доминанттық тежегішті дәлелдемейді.
Құрылымдар пептид пен липидтің танылуға қатысуын түсіндіреді. 6KO5 — антагонистпен байланысқан рецептор (Shiimura et al., 2020), 7NA7 — грелин–рецептор–Gi кешені (Liu et al., 2021), 7F9Y — Gq кешені (Wang et al., 2021). Соңғы мақаланың дұрыс DOI соңы 25364-2, 25368-2 емес. Дайындалған тұрақтандырылған кешендер маңызды күйлерді ашады, тірі нейрондағы барлық табиғи қалыпты көрсетпейді.
Liu құрылымында E124³·³³–R283⁶·⁵⁵ тұздық көпірі қалтаны екі аймаққа бөледі: бірінде N-соңғы пептид, екіншісінде октаноил тізбегі. I178⁴·⁶⁰, L181⁴·⁶³ және F286⁶·⁵⁸ маңындағы гидрофобтық байланыстар липид үлесін түсіндіреді. Ароматтық кластер мен TM6 қайта орналасуы G-ақуыз үшін жасушаішілік аймақты ашады. Жоғарғы индекстер — GPCR ортақ нөмірлеуі, адамның тізбек нөмірімен бірдей емес. Иілгіш пептидтің барлық бөліктері бірдей дәл анықталмайды; бір кешеннің спираль қозғалысы барлық күйдің әмбебап қашықтығы емес.
GHSR-1a қосымша грелинсіз елеулі конститутивтік белсенділік көрсетеді. Артық экспрессия жүйесінде ол кейде ең жоғары сигналдың жартысына жуық, бірақ бұл адамның «50% аштығын» өлшемейді. Рецептор тығыздығы, байланысу және жасушалық орта маңызды. Бейтарап антагонист агонист әсерін шектейді, базалық белсенділікті міндетті түрде азайтпайды; кері агонист таңдалған талдауда оны төмендетеді. Ешқайсысы барлық функцияны толық өшіру деген сөз емес. LEAP2 де зерттелген жүйелерде антагонист және кері агонист ретінде оське қатысады.
Pantel және әріптестері A204E-ні екі отбасында сипаттады. Ол TM5-те емес, екінші жасушадан тыс ілмекте. Беткей экспрессияның төмендеуі және грелинге жауап сақталғанда конститутивтік сигналдың жоғалуы толық емес пенетрантты бой аласа болумен байланысты болды. Бұл барлық тасымалдаушыда ауыр өсу және жыныстық жетілу синдромын анықтамайды; расталмаған F279L-ді сондай дәлелденген отбасылық диагноз ретінде қоса салуға болмайды.
Gq/11 фосфолипаза Cβ-ны белсендіреді; ол мембраналық PIP₂-ні IP₃ және DAG-қа гидролиздейді:
IP₃ ЭПР арналарын ашып, цитозольдік Ca²⁺-ді арттырады; DAG пен кальций PKC белсенуіне қатысады. Бұдан кальцийге тәуелді киназалар, иондық ток және секреция өзгеруі мүмкін. GHSR Gi/o-мен де байланысады, cAMP-қа әсер етеді, β-аррестинді тартады және ішке ауысады. ERK/Akt контекске тәуелді; барлық тармақ барлық тінде бірге іске қосылмайды. GHSR–DRD2, GHSR–MC3R және GHSR–CB1 гетеромерлері нақты жасушалық және жануарлық модельдерде әрекеттесуді көрсетеді (Kern, 2012; Rediger, 2011; Lillo, 2021), әмбебап тағамдық тәуелділік механизмін емес.
Перифериялық сигналдың миға жетуі гематоэнцефалдық тосқауылға, арнайы тамыр аймақтарына және жүйкелік жолдарға тәуелді. Доғалы ядроның жанындағы ортаңғы көтеріңкіде фенестрленген капиллярлар бар; танициттер мен қоректену жергілікті қолжетімділікті өзгертеді. Вагустық афференттердің үлесі болуы мүмкін. AG барлық тосқауылдан еркін өтеді, UAG әрқашан қарама-қарсы тасымалданады деуге болмайды: түр, бағыт және модель маңызды.
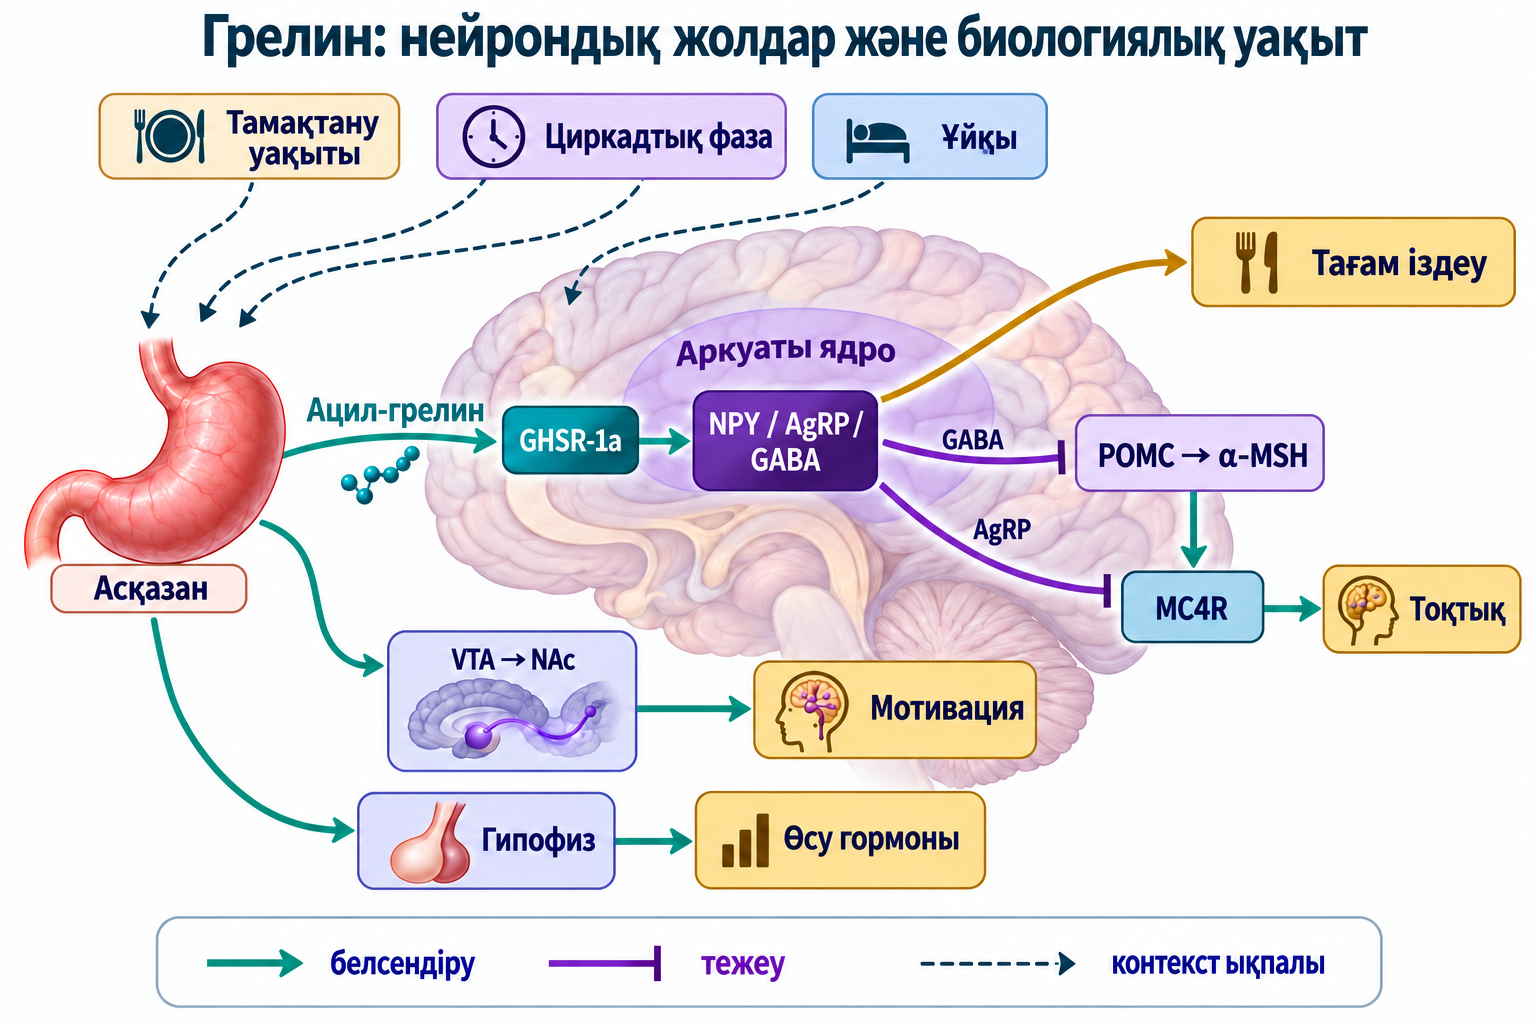
Негізгі нысана — орексигендік NPY/AgRP нейрондары; көбі GABA бөледі. Грелин белсенділікті арттырып, синапстық ұйымдасуды өзгертеді (Cowley et al., 2003). NPY, соның ішінде Y1/Y5 арқылы әсер етеді. AgRP меланокортин сигналын тежейді, MC4R-де антагонизм мен кері агонизм де бар. GABA POMC нейрондарын тежей алады. POMC-тан түзілген α-MSH меланокортин рецепторларын белсендіреді және тоқтыққа қатысады. Синапстық тежелу бүкіл POMC синтезі мен өңделуінің бірден тоқтауына тең емес.
NPY/AgRP-де CaMKKβ, AMPK, ACC, малонил-КоА, CPT1 және UCP2 қатысатын механизм зерттелген. AMPK фосфорлану арқылы ACC белсенділігін азайтады; малонил-КоА төмендегенде CPT1 тежелуі босап, май қышқылы тотығуы қолайланады. Andrews және әріптестерінің 2008 жылғы моделінде UCP2 митохондриялық редокс-бақылау мен тұрақты нейрондық белсенуге қатысты:
Бұл сапалық бағыттар, жылдамдық теңдеуі немесе грелин бүкіл денеде май жағуды үдетеді деген дәлел емес. Нейрон метаболизмі тамақ жеуді қолдауы мүмкін, ал ұзақ енгізу жануарларда май массасын арттырады. CPT1 және май қышқылдарының тасымалы малонил-КоА рөлін және тіндер арасындағы айырманы түсіндіреді. CREB пен FoxO1 экспрессияны реттейді, бірақ өзгермейтін бір тізбек емес. −55-тен −40 мВ-қа әмбебап ауысуды, нейрондардың 90% жауабын немесе міндетті TRPC5 рөлін басқа жүйеден тексерусіз көшіруге болмайды.
Грелин мен лептиннің жалпы бағыты қарама-қарсы сигналдары бірнеше популяцияда тоғысады. Лептин, гипоталамус қабынуы және POMC бір талдау рецепторлық қолжетімділік пен теңгерімді анықтамайтынын түсіндіреді. Гипофиз соматотрофтары GHRH пен соматостатинмен әрекеттесіп GH бөлуін арттырады. Тапшылықта ось отын мен глюкозаға қатысады, бірақ кез келген ашығуда бұлшықетті сақтауға кепіл емес.
Вентралдық тегменталдық аймақтағы GHSR сигналды дофамин және accumbens ядросына проекциялармен байланыстырады. Abizaid және әріптестері (2006) тәжірибеде белсенділік пен синапстық кірістер өзгерісін көрсетті. Бұл тағам іздеудің мотивациялық бөлігін түсіндіреді, тәттіге құмарлықтың немесе тәуелділіктің жалғыз себебі емес. Бейнелеу мен жануарлар жауаптың әр деңгейін зерттейді; күшейген сыйақы сигналы мінез-құлықты міндетті етпейді.
Zhang-тің бастапқы 2005 жылғы жұмысы обестатинді тамақ азаюы, моторика баяулауы және GPR39-мен байланыстырды. Кейінгі зерттеулер мұның бәрін тұрақты қайталамады. Holst және әріптестері (2007) тексерілген жүйелерде GPR39-ды мырыш белсендіретінін, обестатин белсендірмейтінін көрсетті. Бір геннің тең дәрежеде анықталған екі қарама-қарсы гормоны деген көрініс жаңылыстырады. Дегенмен рецептор мен анорексигендік әсердің белгісіздігі барлық биологиялық белсенділікті жоққа шығармайды.
Granata және әріптестері (2008) β-жасушалар мен адам аралшықтарының тіршілігін, Akt/ERK және β-жасуша массасы мен функциясына қатысты ген өзгерістерін сипаттады. PDX1, GLP-1R және тасымалдаушы бағдарламалар нақты жүйеге қатысты. GLUT2-ні кеміргіш ұқсастығымен барлық адам β-жасушасының негізгі глюкоза тасымалдаушысы деуге болмайды. Культураны қорғау адамның β-жасуша массасын қалпына келтіру не диабетті емдеу емес.
Бұлшықет регенерациясында сателлиттік жасушалар, көбею, дифференциация, Pax7, MyoD, миогенин және ERK, Akt, p38 зерттелген (Gurriarán-Rodríguez et al., 2012). Олардың обестатин/GPR39 моделін тікелей рецептордың даулы екенін айтып сипаттау керек. Байланысты түпкілікті теріске шығарып, сонымен қатар бұлшықетте толық анықталған деу үйлеспейді. Жануардың зақымдалған бұлшықеті клиникалық енгізу хаттамасын бермейді.
Эндотелий модельдері NO-тәуелді жауап, ангиогенез, қабыну және адгезия маркерлерін зерттейді. Бұл клиникаға дейінгі бағыт, атеросклероздың дәлелденген алдын алуы емес. Семіздік пен бауырдың майлы ауруында грелин/обестатин қатынасы талдауға, фракцияға және тамақтануға тәуелді. MASLD диагностикасы, ем таңдау немесе «метаболизмдік жас» үшін әмбебап валидтелген қатынас жоқ.
Cummings және әріптестері (2001) адамда жалпы грелин тамақ алдында көтеріліп, кейін төмендейтінін байқады. Бұл басталумен байланысты қолдайды, әр AG шыңы міндетті түрде 60–90 минут бұрын пайда болады немесе барлық тамақты бастайды деген сөз емес. Үйренген кесте, күту, ашығу және алдыңғы тағам өзара әсер етеді. Тамақтан кейінгі төмендеу асқазанды толтырудан күрделі.
Тәуліктік ұйымдасуға супрахиазмалық ядро, жарық және перифериялық сағаттар қатысады. CLOCK/BMAL1 және PER/CRY ілмектері жасушалық ырғақтарды ұстайды; тамақ периферияны да синхрондайды. Жануардың тағамды алдын ала күту ырғағы бір анықталған «аштық сағатын» қажет етпейді: таралған осцилляторлар қарастырылады. Оны SCN немесе бір асқазан генімен толық теңестіруге болмайды.
Scheer және әріптестері (2013) мінез-құлық пен циркадтық фазаны ажыратып, субъективті аштықтың ішкі кешкі максимумын тапты. Бұл түнгі минимумы бар әмбебап грелин қисығы емес. Грелин ұйқыда көтерілуі мүмкін; үлгі уақыты мен тамақ профильді өзгертеді. Мелатонин және циркадтық ұйымдасу жарықтық синхрондауды түсіндіреді; мелатонин грелиннің орнына жүрмейді және тәбетті кепілді баспайды.
Foster-Schubert және әріптестері (2008) ацилденген және жалпы грелинді бөлек өлшеді: ақуыз күшті, май әлсіздеу төмендеу, көмірсу екі фазалы жауап берді. Blom және әріптестері (2006) ақуызды таңғы асты да зерттеді. Бұл құрамды талқылауға мүмкіндік береді, кез келген ақуыз AG-ді 70–80% төмендетіп, 3–5 сағат ұстайды деген кепіл емес. Ерітінді, аралас тағам, энергия, жас және глюкоза алмасуы қолданылуын өзгертеді.
Арнайы нутриент жүктемелері күрделі көмірсу әрқашан майдан жақсы деген шкаланы орнатпайды. Жылдам гормондық түсу ұзақ тоқтыққа тең емес; қайта көтерілу диетаның сәтсіздігін білдірмейді. GLP-1, CCK, PYY, механорецепция, дәм және жалпы энергия теңгерімінің өз үлесі бар.
Spiegel және әріптестері (2004) 12 жас ер адамда қысқа ұйқы шектеуі мен ұзартуын салыстырды: шектеуден кейін грелин мен аштық өсті, лептин төмендеді. Taheri және әріптестері (2004) популяциялық байланыстарды зерттеді, сол араласуды емес. «Алты сағаттан қысқа әр түн AG-ді 25% арттырып, 350–500 ккал қосады» деуге болмайды. Кейінгі нәтижелер тағам қолжетімділігі, теңгерім, жыныс, ұзақтық және талдауға тәуелді. Ұйқы азаюы бір міндетті гормондық өзгеріссіз де тамақ жеуді арттырады.
Осы айқаспалы тәжірибеде орташа грелин 28% өсті, лептин 18% төмендеді, субъективті аштық 24%, тәбет 23% артты. G мен L тиісті грелин және лептин деңгейлерін білдірсе, орташа өзгерістердің шартты қатынасы төмендегі арифметиканы береді. Бұл жеке қатынастардың орташа мәні, валидтелген көрсеткіш немесе әр адамға болжам емес:
Кәдімгі семіздікте ашқарындағы жалпы грелин жиі төмен, бірақ тәбет аз болмауы мүмкін. Тамақтан кейінгі басылу, AG/UAG және салмақ азаюына жауап әртүрлі. Жануар моделінің грелинге төзімділігі адамдағы автоматты диагноз емес. Диеталық салмақ жоғалтудан соң деңгей қалпына келуді қолдайтын бейімделу ретінде өсуі мүмкін (Cummings et al., 2002).
Прадер—Вилли синдромы 15q11–q13 аймағындағы әкелік ген экспрессиясының жоғалуымен байланысты. Алғашқы жұмыстар жоғары циркулюциялық грелинді тапты (Cummings, 2002; DelParigi, 2002), кейде айқын гиперфагияға дейін. Бұл тоқтықтың көпфакторлы бұзылысы бар ерекше генетикалық жағдай. AG-дің тұрақты 3–5 есе өсуін жалғыз себеп, нейтрализацияны клиникалық гиперфагияны дәлелденген жою деуге болмайды.
| Байқау | Негізді түсіндіру | Дәлелденбеген қорытынды |
|---|---|---|
| Үйренген тамақ алдындағы шың | Күту және басталуға қатысу | Барлық аштықтың бір себебі бар |
| Ақуыз профильді өзгертеді | Құрам жауапқа әсер етеді | Бір алдын ала порция бірдей калория азайтады |
| Қысқа ұйқы гормонды өзгертеді | Ұйқы мен энергия сигналдары байланысты | Барлық адам мен түнде бір пайыз |
| Прадер—Виллиде жоғары грелин | Арнайы осьті зерттеу керек | Себеп пен тиімді ем анықталған |
| Обестатин культураға әсер етеді | Жасушалық гипотеза бар | Науқастың тінін қалпына келтіру дәлелденген |
Жең тәрізді гастрэктомия грелин жасушалары көп дене мен түбінің едәуір бөлігін алып, қандағы грелинді жиі азайтады. Әр науқасқа 70–85% төмендеу, барлық шың не тағам ләззаты жоғалады деген кепіл жоқ. Roux-en-Y шағын проксималдық қалта жасап, оқшауланған асқазан қалдығын сақтайды: түбі түгел алынбайды және бір кішкентай «тұйық қалта» емес. Шунттаудан кейін грелин әртүрлі өзгереді; GLP-1, PYY, өт қышқылдары, жүйкелер, анатомия және тамақтану да әсер етеді (Cummings, 2002; Karamanakos, 2008).
| Тәжірибелік нысана | Зерттелгені | Дәлелдемейтіні |
|---|---|---|
| GOAT | GO-CoA-Tat, жасушаға өтетін компоненті бар бисубстраттық аналог; тышқанның глюкозасы мен массасы (Barnett, 2010) | Адамға дайын қауіпсіз ішу хаттамасы |
| GHSR | JMV2959 сияқты антагонистер, кері агонистер; тағам мен алкоголь жауаптары (Jerlhag, 2009) | Барлық тәуелділікті емдеу немесе аштықты толық өшіру |
| Қандағы грелин | L-РНҚ Spiegelmer NOX-B11 және туындылар; жануарға енгізілген грелинді бейтараптау (Kobelt, 2006) | Адам гастропарезін табысты емдеу |
JMV2959 — зерттелетін антагонист; барлық функционалдық талдауда бейтарап деп қабылдауға немесе өздігінен пептидке жатқызуға болмайды. Jerlhag жұмысы алкогольдік сыйақы туралы; басқа заттарға жеке дәлел керек. Расталмаған K-8794 танылған препаратты анықтамайды. Құрылымдар мен қосылыстар аффиндік, функционалдық әсер, тіндік қолжетімділік және клиникалық нәтижені ажыратуға көмектеседі.
Маңызды қате — аптамердің атауы. NCI ресми сөздігі бойынша lexaptepid pegol — гепсидинге қарсы NOX-H94. Ол NOX-B11-2 емес және бұл атаумен грелинді бейтараптамайды. Антигрелиндік NOX-B11 егеуқұйрыққа енгізілген грелиннің кей жауабын тежеді; бұл диабеттік гастропарез емі емес. Рецептор агонисі мен блокаторының бағыты бөлек, моториканы ынталандыратын сынақ антагонист әсерін дәлелдемейді.
Тағамның ақуызы тоқтықты қолдай алады, бірақ 25–35 минут бұрын 25–35 г қабылдап, кейінгі энергияны 20–30% кепілді азайтатын әмбебап хаттама жоқ. Қосылған энергия, көтерімділік, бүкіл мәзір және клиникалық жағдай есептелуі керек. Грелиннің басылуы — аралық көрсеткіш, нақты тамақ пен салмақ нәтижесін алмастырмайды.
Тұтқыр талшық консистенция, керілу, босау және нутриент қолжетімділігін өзгертеді. Вагустық афферент пен жалғыз жол ядросы механосенсорлық интеграцияға қатысады, бірақ грелин жасушасын тікелей әмбебап тежейтін тізбек дәлелденген емес. Karhunen және әріптестерінің 2010 жылғы псиллиумды тағамы бірнеше пептидтік жауапты әлсіретті; грелин әрқашан терең әрі ұзақ басылады дегенге негіз емес. Суды байланыстыру өнім мен әдіске тәуелді; су мен көтерімділік маңызды, ойдан шығарылған гормондық доза емес.
Jakubowicz және әріптестері (2013) метаболизмдік синдромы бар белгілі әйелдерде таңғы және кешкі энергия бөлінісін салыстырды. Garaulet және әріптестері (2013) уақыт пен салмақ азаюын бақылау арқылы зерттеді. Екі дизайн барлық адамға түске дейін 60–70% энергия қажет, таңғы асты өткізу түнгі жеу синдромын тудырады немесе таңғы ас кешкі аштықты жояды дегенді дәлелдемейді. Кесте ұйқы, ауысым, дәрі және ұзақ ұстануға мүмкіндікпен бағаланады.
Жеткілікті тұрақты ұйқы жалпы денсаулыққа пайдалы; шамамен 7–9 сағат көп ересекке жарайды, бірақ жеке қажеттілік пен ұйқы бұзылысы бөлек назарды қажет етеді. Қараңғылық немесе баяу толқынды ұйқы бір β₁-адренергиялық жолмен грелинді міндетті қалпына келтірмейді. Грелин талдауы да артық тамақтанудың әдеттегі дербес түсіндірмесі емес: уақыт, фракция және үлгі өңдеуі мағынаны шектейді.
Бұл 2026 жылғы 8 қазанда даулы механизм, рецептор құрылымы және препарат атауын нысаналы тексерген бастапқы мәтіннің баяндау түріндегі ғылыми талдауы. Қолжетімді бастапқы мақалалар, аннотациялар және ресми құрылым мен зат жазбалары қолданылды. Кей PubMed, PMC және DOI беттері қате немесе браузер тексеруін берді; шектеу айналып өтілмеді, барлық толық мәтін оқылды деп айтылмайды. Жүйелі іздеу, тәуелсіз GRADE, сыртқы рецензия және клиникалық валидация жүргізілген жоқ. Жасуша, жануар, қысқа адам тәжірибесі және клиникалық ем дәлелдері бөлек бағаланады.
Жоқ. Ол тамақ, ұйқы, энергия күйі мен өлшеу әдістеріне тәуелді күрделі желіге қатысады.
Бастапқы гипотеза тұрақты қайталанбаған; жасуша мен жануардағы әсер клиникалық емді дәлелдемейді.
Грелинге қарсы Spiegelmer клиникаға дейін зерттелген. Моторика агонистері мен блокаторлар әр бағытта әсер етеді; NOX-H94 гепсидинге бағытталған.
Бұлар бөлек өлшемдер. Тұрақсыз эфирлік байланыс пен үлгі өңдеу нәтижеге әсер етеді; молекулалық түрі мен әдісін көрсету қажет.