
Эндотелий гликокаликсі: гиалуронан, ығысу кернеуі және тамырлық бөгет
HS, HA, синдекан және глипикан құрылысы; ығысу сигналы, eNOS, SOD3 және антитромбин. Қайта қаралған Старлинг, реология, бүйрек пен ми бөгеті, жанама PBR мен маркерлер, оң және теріс ем сынақтары.
Гликокаликс — эндотелийдің қанға қараған бетінде орналасатын көмірсу тізбектері, ақуыздар және олармен байланысқан молекулалардан тұратын гидратталған тор. Ол жасушалар мен еріген заттардың тамыр қабырғасына жақындауын реттейді, механикалық сигналды жеткізуге қатысады және ферменттер мен қан ұюын реттейтін молекулалар үшін жергілікті орта құрайды. Бұл барлық мүшеде бірдей болатын қабық емес, тамырлық бөгеттің өзгермелі бөлігі.
Молекулалық механизмді, тәжірибелік өлшемді және ем нәтижесін ажырату қажет. Өсірілген жасушадан гепарансульфатты ферментпен алып тастау NO түзілуін өзгертуі мүмкін; қандағы синдекан-1 ауыр аурумен қатар көтерілуі мүмкін; тіл астындағы өлшем эритроциттердің қабырға маңына жетуін сипаттауы мүмкін. Осы деректердің ешқайсысы өздігінен қоспаның тамырды қалпына келтіретінін немесе инфарктінің алдын алатынын дәлелдемейді.
1. Беткі қабаттың құрамы
Гликокаликс және ESL
Тар мағынада гликокаликске мембранамен байланысқан гликопротеиндер, протеогликандар және гликолипидтер кіреді. Кеңірек эндотелийдің беткі қабаты, ESL, суды және плазманың қайтымды байланысқан құрамбөліктерін де қамтиды. Әдебиетте бұл ұғымдар ішінара қабаттасады. Көрінетін қалыңдық жануар түріне, тамырға, ағысқа және әдіске тәуелді: фиксациядан кейінгі электрондық микроскопия, флуоресцентті индикатордың ығыстырылуы және эритроцит қозғалысы әртүрлі қасиетті зерттейді.
Vink және Duling (1996) атжалманның кремастер капиллярларында кейбір индикаторлар мен эритроциттер кірмейтін қабырға маңындағы аймақты көрсетті. Бұл функционалдық беткі қабатты растайды, бірақ адамға ортақ қалыңдық нормасын белгілемейді. Жүздеген нанометрден микрометрге дейінгі нәтижелерді бір әмбебап аралыққа біріктіруге болмайды. Барлық тамырға бірдей су үлесін, тесік өлшемін немесе молекулалық масса шегін беру де негізсіз. Тор деформацияланады және жаңарады; заряд пен гидравликалық кедергі біркелкі таралмайды.
Синдекандар мен глипикандар
Синдекандар — мембрананы тесіп өтетін ақуыздық қаңқалар. Сыртқы домендері сызықтық гликозаминогликан тізбектерін, негізінен гепарансульфатты, ал кейбірінде хондроитинсульфатты алып жүреді. Көмірсулық жалғағыш тізбекті серин қалдығына бекітеді. Бір ақуызда бірнеше тізбек болуы полисахаридтің өзін тармақталған етпейді. Мембраналық бөлік кешендерді ұйымдастырады; қысқа жасушаішілік C1–V–C2 құйрығы адаптерлермен, PDZ-ақуыздармен және цитоскелеттік байланыстармен әрекеттеседі. Қатысушылар синдеканға және жасуша күйіне тәуелді.
Синдекан-1 мен синдекан-4 экспрессиясы және кешен жинақталуы бойынша ерекшеленеді. Трансмембраналық GXXXG мотиві өзара ассоциацияға қатысады, бірақ күші көршілес тізбекке тәуелді (Dews және MacKenzie, 2007). Синдекан-4 C-ұштық мотивінің синтенин-1 PDZ доменімен байланысы құрылымдық түрде көрсетілген (Choi et al., 2016). Бұл адаптерлік байланысты нақтылайды, барлық тіндегі бірдей механосигналды дәлелдемейді.
Глипикандар мембрананың сыртқы бетіне GPI-якорь арқылы бекітіледі және өз цитоплазмалық құйрығы болмайды. Жасушаішілік сигналға қатысу үшін көршілес ақуыздар мен мембраналық кешендер қажет. Глипикан-1 механосезімталдықта және микродомендерде зерттелген, бірақ жалғыз эндотелий глипиканы деп есептелмейді. Ebong et al. (2014) глипикан-1 мен синдекан-1-ге әсер ету ағыс кезіндегі NO және жасушалық қайта құрылуды әртүрлі өзгертетінін көрсетті. Бұл функциялардың мамандануын қолдайды, бір ғана өзгермейтін «талшық — кавеола — фермент» тізбегін дәлелдемейді.
Сульфатталған гликозаминогликандар
Гепарансульфат, HS, глюкозамин мен урон қышқылы бар қайталанатын дисахаридтерден тұрады. N-деацетилдеу/N-сульфаттау, глюкурон қышқылын идурон қышқылына айналдыру және O-сульфаттау ақуыздарға жақындығы әртүрлі бөліктер құрайды. Жалпы теріс зарядпен бірге сульфаттардың орны мен тізбек конформациясы маңызды. Синтез және өзгерту жасушаның секреторлық жүйесінде жүреді; EXT, NDST және сульфотрансферазалар ішке қабылданған полисахаридті бетке жай жапсырмайды.
Хондроитинсульфат, CS, N-ацетилгалактозамин мен глюкурон қышқылын қамтиды; дерматансульфатта, DS, идурон қышқылы болады. Мөлшері және сульфатталу үлгілері тін мен ақуызға байланысты. Карбоксил және сульфат топтары судың байланысуына, иондардың таралуына және ақуыздық әрекеттесулерге әсер етеді. Дегенмен теріс зарядталған альбумин беткі қабатпен байланыса алады. «Теріс зарядтың бәрі шығарылып тасталады» қағидасы осы торды толық сипаттамайды.
Гиалуронан және сиал қышқылдары
Гиалуронан, HA, — глюкурон қышқылы мен N-ацетилглюкозаминнен тұратын сульфатталмаған сызықтық полимер. HS пен CS-тен айырмашылығы, ол ақуыздық қаңқаға ковалентті тізбек ретінде синтезделмейді. Мембраналық HAS1–3 синтазалары белсендірілген UDP-қанттарды пайдаланып, өсіп келе жатқан тізбекті сыртқа шығарады. CD44 және басқа гиаладгериндер HA-ны ұстап, ұйымдастырады. Maloney et al. (2022) вирустық HAS арқылы синтез бен транслокация механизмін зерттеді: бұл қағиданың молекулалық дәлелі, адам эндотелийін немесе пероральді N-ацетилглюкозаминді сынау емес.
Молекулалық масса HA-ның физикалық қасиетін өзгертеді, бірақ «үлкені пайдалы, кішісі қабындырғыш» деген әмбебап ауыстырғыш жоқ. Шығу тегі, тазалығы, ақуыздық кешендері және жасушалық орта маңызды. Сиал қышқылдары, соның ішінде Neu5Ac, гликопротеиндер мен гликолипидтердің көмірсу тізбегінің ұшында орналасады. Беттік заряд пен тануға қатысады, бірақ өздері гликозаминогликан емес.
Альбумин және плазма құрамбөліктері
ESL плазмамен альбумин, ферменттер, өсу факторлары және қан ұюының реттеушілерін алмасады. Шамамен 66,5 кДа альбумин плазманың онкотикалық қасиеттеріне үлес қосады және түрлі лигандтарды, соның ішінде сфингозин-1-фосфатты, S1P, тасымалдайды. HDL құрамындағы apoM да маңызды S1P тасымалдаушысы. Еркін плазмалық ақуыздың, қайтымды байланысқан беткі ақуыздың және HS-те ұсталған ферменттің функциясы әртүрлі. Осы биология альбумині төмен әр адамға гликокаликсті жөндеу үшін инфузия қажет екенін дәлелдемейді.
2. Қан ағысынан биологиялық сигналға
Ығысу кернеуі және қысым
Қысым бетке көбіне перпендикуляр, ал тұтқырлықтан туатын ығысу кернеуі жанама бағытта әсер етеді. Ньютондық сұйық үшін:
— қабырғадағы кернеу, паскальмен; — динамикалық тұтқырлық, Па·с; — қабырға бойымен жылдамдық, м/с; — оған дейінгі қашықтық, метрмен. Бір паскаль 10 дин/см²-ге тең. Қатты дөңгелек түтіктегі тұрақты ламинарлы ағысқа Пуазейль моделі:
— көлемдік шығын, — радиус. Бұл шарттар жеке деформацияланатын эритроциттері бар капиллярға, пульсациялайтын тамырға немесе зақымдалған кеуекті қабатқа автоматты түрде сәйкес келмейді. Гликокаликс жылдамдық профилі мен күштің берілуін өзі өзгертеді.
Механосенсорлар желісі
Weinbaum et al. (2003) күштің беткі тор арқылы мембрана мен цитоскелетке берілуін модельдеді. Florian et al. (2003) өсірілген эндотелийден HS-ті бактериялық гепариназа III көмегімен алып тастау ағысқа байланысты NO жауабын бәсеңдетіп, брадикинин жауабын сақтайтынын тапты. Pahakis et al. (2007) HS, HA немесе сиал қалдықтарын жою NO жауабын бұзғанымен, простациклин жауабы сақталатынын көрсетті. Сондықтан гликокаликс кейбір жолдар үшін маңызды, оның зақымдалуы барлық ағыс сигналын өшірмейді.
PECAM-1–VE-кадгерин–VEGFR2 кешені, интегриндер, цитоскелет, Piezo1 және TRPV4 арналары, мембраналық микродомендер де қатысады. Байланыстар эндотелий фенотипі мен әсер ұзақтығына тәуелді. Ғылыми сызба нақты молекулалық геометрияны немесе бір міндетті жолды емес, функционалдық байланыстарды көрсетеді.
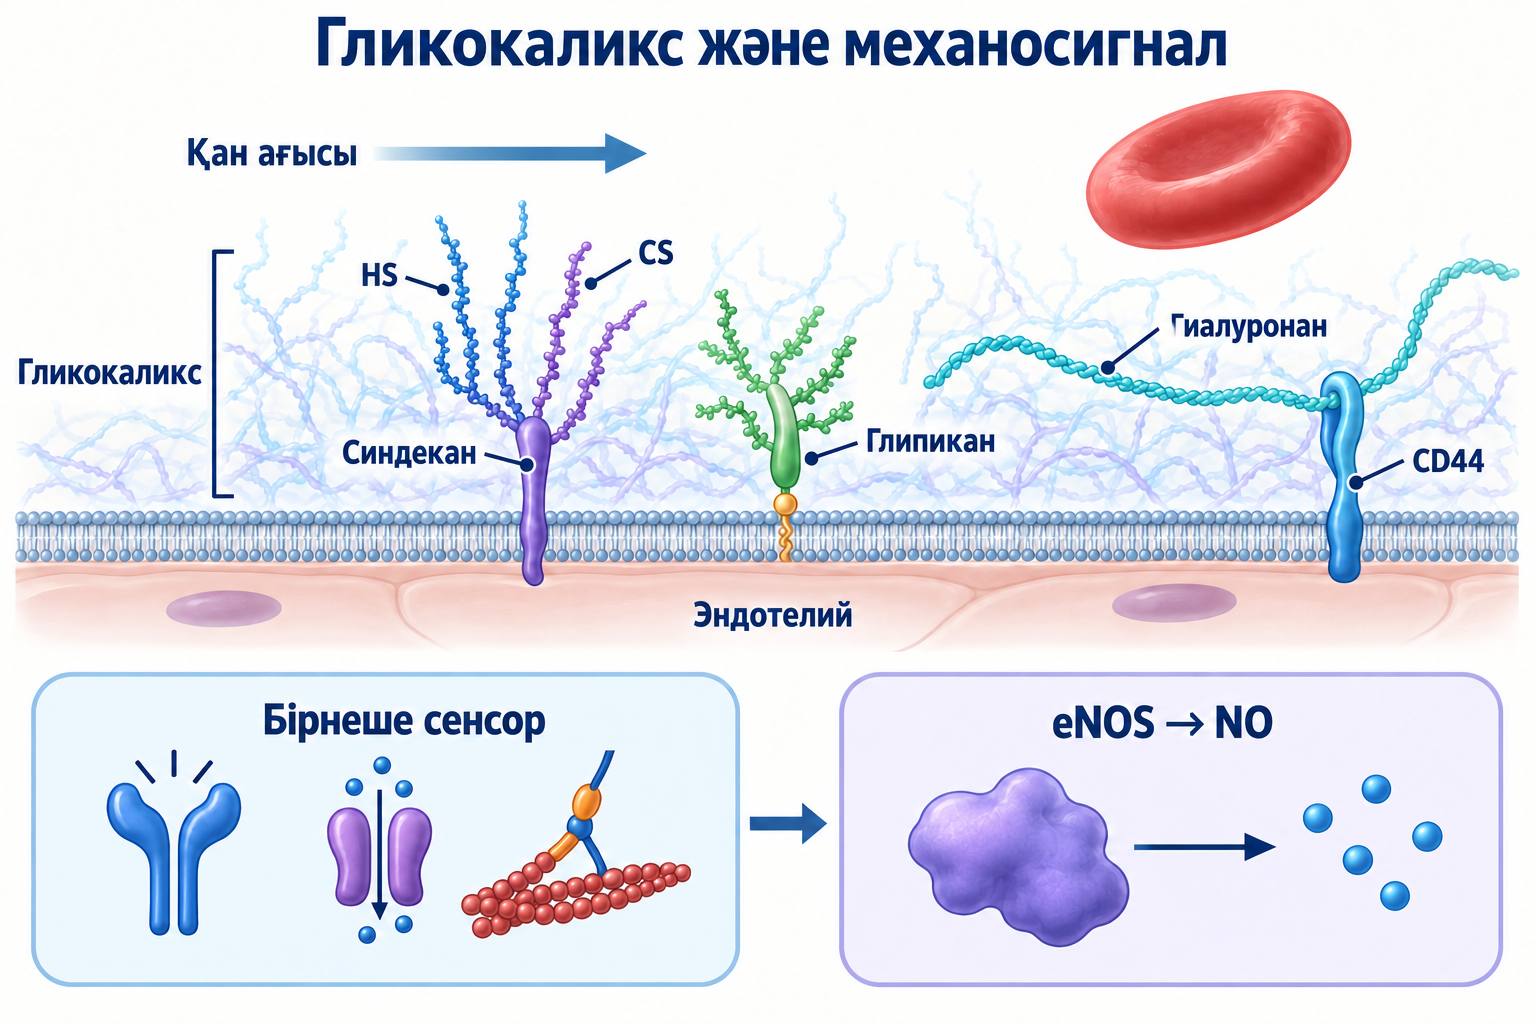
1-сызба. Синдеканның сызықтық тізбектері, глипиканның сыртқы GPI-якорі және CD44 ұстайтын HA шартты көрсетілген. Бірнеше сенсор бірлескен механосигналды білдіреді, жалғыз тікелей жолды емес; eNOS кальций–кальмодулинмен де реттеледі. Масштаб пен молекулалық геометрия берілмеген (Florian et al., 2003; Pahakis et al., 2007; Ebong et al., 2014).
eNOS, NO және кальций
Эндотелийдің NO-синтазасы, eNOS, L-аргинин, оттегі және NADPH-тан тотықсыздандырғыш эквиваленттерді пайдаланады. Үйлескен катализ үшін гем, BH4, FAD, FMN және кальмодулин керек. Адамдағы Ser1177-нің, соның ішінде Akt арқылы, фосфорлануы белсенділікті арттырып, кальций–кальмодулин реттелуіне сезімталдықты өзгерте алады (Dimmeler et al., 1999). Бұл кальцийден толық тәуелсіздік немесе аутоингибирлеуші доменнің физикалық жойылуы емес. Өзге түрлердегі сәйкес қалдық нөмірі басқаша болуы мүмкін.
NO тегіс бұлшықетте еритін гуанилатциклаза мен cGMP жолын белсендіріп, босаңсуға ықпал етеді; тромбоциттер мен қабыну әрекеттесулерін де өзгертеді. BH4 тапшылығы және басқа үйлесу бұзылыстары eNOS-ты супероксид түзуге бағыттай алады. Сондықтан фермент мөлшері мен гликокаликстің сақталуы NO биожетімділігіне тең емес. Бұл механизм eNOS ажырауы туралы материалда толығырақ берілген.
Ұзақ бейімделу және бұзылған ағыс
Тұрақты бағытталған ағыс KLF2/KLF4 бағдарламаларын, антикоагулянттық қасиеттерді және қабынудың тежелуін қолдай алады. Dekker et al. (2002) ұзақ ығысу әсерінде өсірілген жасушаларда KLF2 индукциясын көрсетті. Тармақтар мен иілімдерде ағыс әлсіз, бағыты өзгермелі және кеңістікте әркелкі болуы мүмкін. Бұзылған немесе тербелмелі ағыс міндетті түрде турбулентті емес.
Әр тербеліс NO-ны толық тоқтатпайды: Florian et al. (2003) қолданған нақты жедел тербелмелі режим де жауап туғызды. Толқын пішіні, орташа күш, уақыт және созылмалы ген экспрессиясы әртүрлі деңгейлер. Гемодинамика атеросклероздың орнын ішінара түсіндіреді, бірақ apoB-липопротеиндер мен олардың интимаға ұсталуын алмастырмайды.
SOD3 және антитромбин
Жасушадан тыс супероксиддисмутаза SOD3 — Cu/Zn ферменті; C-ұштық бөлігі сульфатталған полисахаридтермен байланысады (Lookene et al., 2000). Жергілікті ұсталу супероксидтің NO-мен реакциясын азайтуға көмектеседі:
Түзілген пероксидке басқа жою жүйелері қажет. Байланысу орындарының жоғалуы SOD3-ті тін мен плазма арасында қайта бөледі. Демек зақым кезінде қандағы деңгей міндетті түрде төмендемейді және қалыңдықтың әмбебап тесті емес.
Антитромбин кез келген HS-ті емес, ерекше сульфатталған тізбекті таниды. Пентасахаридтік мотив Xa және IXa-ға қарсы аллостериялық белсендіруге ықпал етеді; тромбин тежелуін тиімді жеделдету үшін протеаза мен ингибиторды бірге ұстайтын ұзын тізбек қажет (Johnson et al., 2006). Жиі айтылатын шамамен 18 қант қалдығы белгілі гепарин тізбектеріне қатысты, барлық синтетикалық олигосахаридке ортақ шек емес. Беттік антикоагулянт қасиеттердің жоғалуы тромбозға үлес қосады, бірақ бүкіл ұю үдерісін түсіндірмейді.
3. Зақым және құрамбөліктердің бөлінуі
Ферменттер, протеолиз және тотығу
Гепараназа HPSE HS-ті ыдыратады. Алғашқы ақуыз ішкі жалғағышы алынғанда, негізінен катепсин L арқылы, шамамен 8 және 50 кДа суббірліктерден тұратын белсенді кешенге айналады (Abboud-Jarrous et al., 2008). Бұл зертханада қолданылатын бактериялық гепариназа III-тен басқа фермент. HPSE барлық GAG-ты ыдыратады деу дұрыс емес.
HA айналымына синтез, сіңіру және ыдырау кіреді. HYAL1 мен HYAL2 орналасуы, белсенділік шарттары және жасушаішілік өңдеуге қатысуы бойынша ерекшеленеді; үдеріс бір өлшемді фрагмент беретін жалғыз жасушадан тыс пышақ емес. Металлопротеиназалар мен ADAM-протеазалар протеогликанның сыртқы доменін бөле алады. Бұл қант тізбегін гидролиздеуден бөлек ақуыздық қаңқаның протеолизі. Фермент үлесі мен мембраналық қалдықтың сақталуы жағдайға байланысты.
HYAL2 үшін сыртқы GPI-якорь көрсетілген, бірақ орналасу жоғары каталитикалық белсенділікке тең емес: Rai et al. (2001) беткі ақуызды анықтап, өз жүйесінде HA ыдырауын таппады. Ыдырауға сіңіру және қышқыл жасушаішілік өңдеу, соның ішінде HYAL1 қатысады. Орналасу, pH және ақуыз мөлшері бөлек бағаланады.
Оттегі мен азоттың белсенді түрлері көмірсу, ақуыз және ферменттік реттелуді өзгерте алады. Бірақ барлық тамырда бірнеше секундта қабаттың бекітілген пайызы жоғалатын заң жоқ. Тотығу механизмі кез келген антиоксидант қоспаның тиімділігін дәлелдемейді.
HA фрагменттері және қабыну
HA фрагменттерін қауіп сигналы деп қарастыру тәжірибелік жүйеге тәуелді. Dong et al. (2016) эндотоксинсіз фрагменттерден зерттелген макрофагтар мен дендриттік жасушалардың күтілген белсенуін таппады; кейбір препараттың оң әсерін эндотоксин қоспасы түсіндірді. Бұл маңызды әдістемелік шектеу. Зақымдалған тіндегі эндогенді HA әсерінің бәрін жоққа шығармайды, бірақ әр қысқа тізбекті міндетті TLR2/TLR4 агонисі деуге болмайды.
Гипергликемия және диабет
Nieuwdorp et al. (2006) он сау ер адамды зерттеген жұмыста жедел гипергликемия гликокаликстің есептелген көлемінің шамамен 1,7-ден 0,8 л-ге азаюымен қатар жүрді. Бұл индикаторлардың таралуына негізделген баға, бүкіл физикалық гельді тікелей өлшеу емес. Маннитол өзгерісті қайталамады, сондықтан тек осмостық «шөгу» түсіндірмесі жеткіліксіз. Көктамырішілік N-ацетилцистеин өзгерісті азайтты. Шағын жедел тәжірибе диабетте ұзақ пероральді NAC пайдасын дәлелдемейді.
Созылмалы гипергликемияда тотығу стрессі, гликацияның соңғы өнімдері мен RAGE сигналдары, қабыну, синтез өзгерісі және құрамбөліктер айналымы маңызды. Үлес тамыр бассейніне қарай өзгереді. Тамақтан кейінгі ауытқулар бөлек бағаланады: гликемиялық өзгергіштік және эндотелий зақымы бір гликокаликс көрсеткішімен өлшенбейді және орташа глюкозамен бірдей емес.
Сепсис, ұю және атеросклероз
Schmidt et al. (2012) тәжірибелік сепсисте гепараназа белсенуін өкпелік гликокаликс жоғалуымен, нейтрофил адгезиясымен және өкпе зақымымен байланыстырды. Генетикалық не дәрілік әсер жануарларды қорғады; адам үлгілері механизмнің маңызын қолдағанымен, ем сынағы болған жоқ. Сепсистегі сұйықтықтың тамырдан шығуы беттік қабат, эндотелий түйісулері, қабыну және гемодинамика өзгерістерін біріктіреді. Бұл сирек идиопатиялық жүйелік капиллярлық ағып шығу синдромының синонимі емес.
Диссеминацияланған тамырішілік ұюға тіндік фактор, тромбин, тромбоциттер, NETs, антикоагулянттық жолдар мен фибринолиз қатысады. Гликокаликс бөлінуі субэндотелийдің міндетті ашылуын не жалғыз ұю факторын білдірмейді. Атеросклерозда өзгерген тор липопротеин тасымалы мен лейкоцит әрекеттесуін өзгертуі мүмкін; LDL эндотелий арқылы реттелген тасымалмен де өтеді. Гликокаликс зақымы әр түйіндақ үшін қажет жалғыз кіреберіс екені дәлелденбеген.
4. Сұйықтық алмасуы, қан реологиясы және мүшелер
Қайта қаралған Старлинг қағидасы
Көптеген үздіксіз микротамырға гликокаликс астындағы жергілікті онкотикалық қысымы бар өрнек пайдалы:
— көлемдік сүзілу жылдамдығы; — алмасу ауданы; — гидравликалық өткізгіштік. және — капиллярлық және интерстициалдық гидростатикалық қысым; — плазманың онкотикалық қысымы; — қабат астындағы жергілікті онкотикалық қысым. — қарастырылған ақуыз үшін өлшемсіз шағылу коэффициенті. Қысым Па, м/(с·Па) болса, м/с болады. Оң нәтиже сұйықтықтың сыртқа қозғалуын білдіреді.
Жергілікті ақуыз концентрациясы тасымалдың шектелуі мен ағыспен шайылуына тәуелді, бүкіл интерстиций концентрациясына автоматты түрде тең емес. Adamson et al. (2004) егеуқұйрық микротамырында плазма мен интерстициалдық орта альбумині тең болғанда да айқын тиімді онкотикалық айырманы көрсетті. Бірақ әрқашан нөл емес, ал барлық тін мен ауруға бірдей сан емес.
Көптеген үздіксіз бассейнде тұрақты күйде сүзілу мен лимфалық қайту маңызды. Капилляр қысымы күрт төмендегенде уақытша қайта сіңу болуы мүмкін; бүйрек пен ішекке жеке талдау керек. Әр капиллярдың веналық ұшында міндетті сіңу де, тамырлық сіңудің мүлде болмауы да дұрыс емес. Жасушалық түйісулер мен басқа бөгет қабаттары гликокаликспен бірге жұмыс істейді.
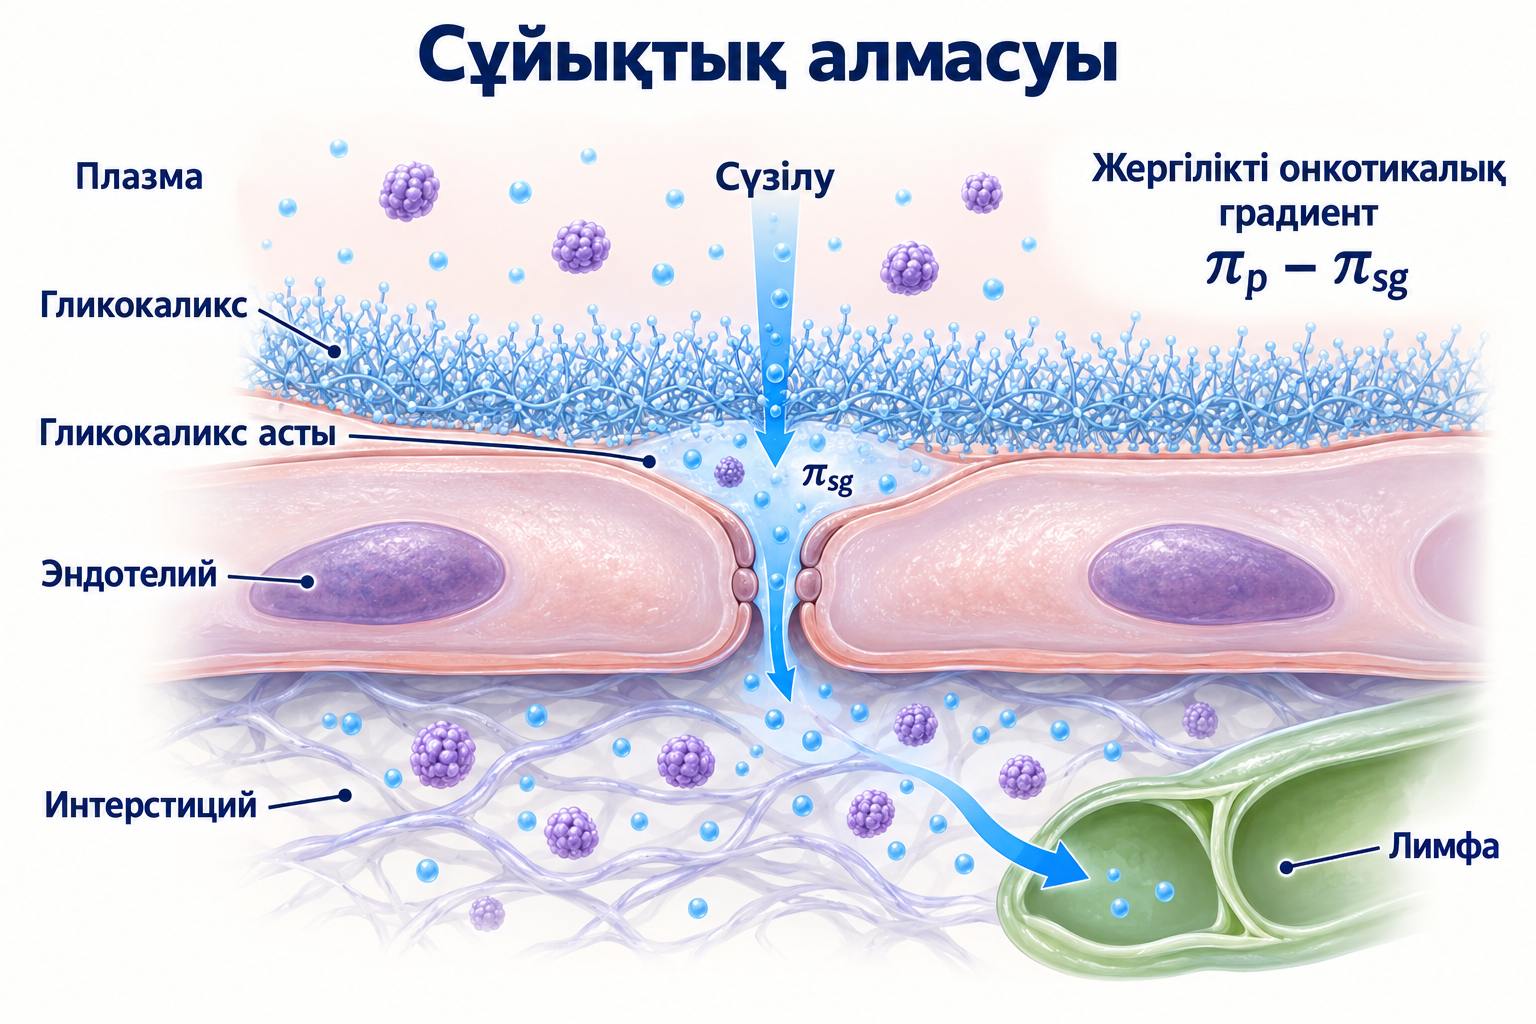
2-сызба. Беткі бөгет арқылы интерстицийге, одан лимфаға тұрақты сыртқы сүзілу моделі сапалық түрде көрсетілген. Гликокаликсасты аймақ — жасушааралық саңылау кіреберісіндегі жергілікті жасушадан тыс кеңістік; оның онкотикалық қысымы жалпы интерстициалдыққа автоматты тең емес және әрдайым нөл емес. Уақытша қайта сіңу мен арнайы тамырлар көрсетілмеген; пациент өлшемдері емес (Adamson et al., 2004).
Эритроциттер және көрінерлік тұтқырлық
Эритроциттер оське қарай ығысып, деформацияланады; орташа жылдамдығы жалпы қан ағысынан өзгеше. Фореус әсері түтік ішіндегі гематокриті шығатын ағыс гематокритінен төмен болуы мүмкін екенін сипаттайды. Эритроцит ағысы тұрақты сақталғанда:
— көлемдік ағыстың орташа жылдамдығы, — эритроциттердікі. Фореус—Линдквист әсері белгілі диаметр аралығында түтік жіңішкергенде көрінерлік тұтқырлықтың төмендеуіне қатысты; өте тар жерде кедергі қайта өседі. Бұл екі бөлек құбылыс, тек гликокаликстің «майлауымен» түсіндірілмейді.
Қабат қолжетімді қуысты шектеп, қабырға маңындағы ағысты өзгертеді және кедергіге үлес қосады. Фотозақымнан кейін Vink және Duling (1996) түтік гематокритінің шамамен 60% өсуін байқады. Бұл адам капиллярлары үшін бекітілген норма немесе кез келген зақымнан кейін тұтқырлықтың бірнеше есе өзгеру дәлелі емес.
Көлемдік жүктеме және ісіну
Артық тамырішілік көлем жүрекшелік натрийурездік пептид бөлінуін арттырып, беткі құрамбөліктердің шығуымен қатар жүруі мүмкін. Chappell et al. (2014) мұны операция маңындағы жағдайда зерттеді. Өткізгіштік, гидростатикалық қысым, ақуыз айырмасы және лимфа әкетуі ісінуді бірге анықтайды. Дерек сұйықтық теңгеріміне назар аударуды қолдайды, бірақ шоктағы қажетті реанимациядан бас тартуды немесе әр инфузия қабатты бұзады деуді емес. Ерітіндінің түрі, көлемі және жылдамдығы клиникалық жағдайға сай таңдалады.
Бүйрек және гематоэнцефалдық бөгет
Шумақтық сүзгіге беткі қабаты бар фенестрленген эндотелий, базальды мембрана және подоциттер кіреді. Өсірілген адам шумақтық эндотелийінен HS-ті жою альбумин өтуін арттырды, электрлік кедергі міндетті өзгерген жоқ (Singh et al., 2007). Бұл тордың үлесін көрсетеді, бірақ альбуминурияны зарядтың немесе қалыңдықтың тікелей өлшеміне айналдырмайды. Таңдамалылық бүкіл бөгеттегі өлшем, құрылым және әрекеттесулерге байланысты; альбумин радиусын шартты тесік диаметрімен салыстыру қате.
Ми бөгетіне тығыз түйісулер, төмен трансцитоз, базальды мембрана, перициттер және астроциттер маңызды. Гликокаликс — бір құрамбөлік. Zhu et al. (2018) егеуқұйрықта асфиксиялық жүрек тоқтауынан кейін ферменттік деградацияны бөгет бұзылысы мен ісінудің күшеюімен байланыстырды. Бұл адамдарда дәрі тиімділігін немесе Альцгеймер ауруының толық түсіндірмесін бермейді. Барлық ми тамырында ең қалың, HS сульфатталуы ең жоғары қабат бар деген тұжырым анықталмаған.
5. Өлшемнің шегі
Тіл асты микроскопиясы және PBR
SDF/IDF-бейнемикроскопия негізінен эритроциттерді, молекулалық тізбектерді емес, тіркейді. GlycoCheck perfused boundary region, PBR, яғни эритроцит бағанының орны мен ені өзгергенде қолжетімді перфузияланған шекаралық аймақты бағалайды. Тұжырымдық өрнек:
— алгоритм бағалаған перфузиялық диаметр, — эритроцит бағанының медианалық ені. Бұлар және PBR микрометрмен өлшенеді. Перфузиялық диаметр міндетті анатомиялық диаметр емес және оны бір кадрдағы максимуммен алмастыруға болмайды. Жоғары PBR әдетте қабырға маңындағы қолжетімділіктің артуы және эритроцитті ығыстырудың әлсіреуі ретінде түсіндіріледі. Бұл жанама функционалдық баға, қалыңдықты, химиялық құрамды тікелей өлшеу немесе жүйелік бұзылу диагнозы емес.
Алгоритм нұсқасы, тамыр өлшемі, қозғалыс, фокус, камера қысымы, қан ағысы және эритроциттердің көріну уақыты маңызды. Eickhoff et al. (2020) 42 сау шылым шегушіде жағдайдың ықпалын және қайталаудан кейін жақсырақ қайталанымдылықты көрсетті. Bol et al. (2022) 49 сау еріктіде жеке өлшем келісімі нашар, үш өлшемнің орташа нәтижесі жақсырақ екенін тапты. Адамдағы өзгеріс әдіс вариабельдігінен кіші болуы мүмкін. Түрлі бағдарлама мен популяцияны біріктіріп әмбебап «қалыпты — ауыр зақым» аралығын жасауға болмайды; тіл асты барлық мүшенің тікелей картасы емес.
Қан маркерлері және альбуминурия
| Көрсеткіш | Нені сипаттауы мүмкін | Шектеу |
|---|---|---|
| Синдекан-1 | Сыртқы доменнің бөлінуі, қабыну, тін зақымы | Эпителий мен басқа жасушада да бар; клиренс пен талдау маңызды |
| Гепарансульфат | HS айналымы және ыдырауы | Басқа тін мен матрикс те үлес қосады; фрагменттер әртүрлі |
| Гиалуронан | HA синтезі, ыдырауы және қанға түсуі | Бауыр, матрикс және клиренске тәуелді, тек эндотелийге емес |
| Эндокан | Эндотелий секрециясы және қабыну сигналы | Секреттелетін DS-протеогликан, тек кесілген мембрана якорі емес |
| Зәр альбумині/креатинині, ACR | Бүйректің альбуминді ұстай алмауы | A2 30 мг/г-нан басталады; бір сан механизмді анықтамайды |
| Плазма SOD3 | Өндірілуі, байланысуы және қайта бөлінуі | Беттен босау деңгейін көтеруі мүмкін; әмбебап зақым шегі жоқ |
| PBR | Эритроциттің қабырға маңына жетуі | Жанама тіл асты бағасы, әдістік вариабельдігі бар |
Олар зерттеуге және кейбір клиникалық сұраққа жарайды, бірақ автоматты түрде қалпына келтіру емін таңдауға арналған валидтелген панель емес. ACR-ды қайта растау және уақытша себептерді бағалау керек; фрагменттерді стандартталған әдіс пен ауру контексінде қарастыру қажет.
6. Қалпына келтіру және клиникалық нәтиже
Сулодексид және қарама-қайшы дерек
Сулодексид — GAG фракцияларының қоспасы, әдетте шамамен 80% жылдам қозғалатын гепарин фракциясы және 20% дерматансульфат ретінде сипатталады. Ол кез келген төмен молекулалық гепаринмен бірдей емес және теріс бетке электростатикалық «жөндеу материалы» ретінде жабыспайды. Болжанған әсерлер ыдыратушы ферменттерге, қабынуға және ұюға қатысты; жаңа HS синтезі жасушалық үдеріс болып қала береді.
| Зерттеу | Дизайн және нәтиже | Мағынасы |
|---|---|---|
| Gambaro et al., 2002, Di.N.A.S. | 1 немесе 2 типті диабеті бар 223 адам; плацебо не тәулігіне 50/100/200 мг төрт ай; альбуминурия азайды | Оң суррогаттық нәтиже, жүрек-қантамыр оқиғасының азаю дәлелі емес |
| Broekhuizen et al., 2010 | 2 типті диабеті бар 10 ер адам және 10 бақылау; тәулігіне 200 мг екі айға дейін/кейін; жанама тамыр өлшемі өзгерді | Шағын, қатар плацебосыз жұмыс; әдісі заманауи PBR-мен бірдей емес |
| Lewis et al., 2011, SUN-micro | 2 типті диабеті бар 1056 адам; ірі рандомизацияланған сынақ бастапқы альбуминуриялық нәтижені жақсартпады | Ерте оң дерек сенімді қайталанбады |
| Packham et al., 2012, SUN-macro | Диабеттік нефропатиясы бар 1248 адам; протеинурия жақсармады; ерте тоқтау қатаң бүйректік нәтижеге қуатты азайтты | Пайда дәлелденбеген; белгісіздік дәлелденген теңдік емес |
Кестедегі доза зерттеуді сипаттайды, оқырманға тағайындау емес. Белсенділік бірлігі, LE/LRU және миллиграмм әмбебап коэффициентпен ауыспайды. Бір елдегі көрсетілім жалпы гликокаликс емін дәлелдемейді; қарсы көрсетілім, қан кету және антитромботикпен бірге қабылдау маңызды.
Қант алғышарттары және HA
UDP-GlcNAc эндогенді HA және HS синтезіне керек. Бірақ өнімдегі N-ацетилглюкозамин белсендірілген субстраттың эндотелийге жеткілікті жетуін, тамыр торына қосылуын немесе клиникалық пайданы дәлелдемейді. Глюкозамин, хондроитин және ауыз арқылы HA үшін де осы айырма бар: буын не тері деректері тамыр қабатын жөндеуді растамайды. Жоғары молекулалық HA-да масса, енгізу жолы және модель маңызды; жануардағы көктамырішілік тәжірибе үйде емдеу сызбасын бермейді.
Ингибиторлар және антиоксиданттар
Ронепарстат пен некупараниб өзгертілген гепаринге ұқсас қосылыстар ретінде, әсіресе онкологияда зерттелді. Гепараназаны тежеу — зерттеу бағыты. Төмен антикоагулянт белсенділік қан кету мүмкін емес немесе кең қолдану қауіпсіз деген сөз емес. Доксициклин металлопротеиназаларға әсер етуі мүмкін, бірақ басқа тіндегі зерттеу мен тіркелген қолдану оны гликокаликстің стандартты емі етпейді; өзіндік жағымсыз әсері бар.
Көптік миеломада ронепарстаттың I фазалық зерттеуі негізінен көтерімділікті бағалады; ұйқыбез обырында некупаранибтің рандомизацияланған II фазалық зерттеуі жалпы өмір сүру ұзақтығын жақсартпады және нәтиже күтілмегендіктен тоқтатылды. Бұл онкологиялық нәтижелер гликокаликстің клиникалық қалпына келуін дәлелдемейді (Galli et al., 2018; O’Reilly et al., 2020).
Көктамырішілік NAC-тың жедел тәжірибесі жалпы пероральді курсты негіздемейді. C витамині де антиоксидант биохимиясын клиникада тексерудің маңызын көрсетеді. LOVIT (Lamontagne et al., 2022) сепсисі бар 872 пациентті рандомизациялады, 863-і негізгі талдауға кірді. 28-күндегі өлім немесе сақталған мүшелік дисфункция жоғары көктамырішілік дозада жиірек болды: 44,5% және 38,5%, RR 1,21, 95% СА 1,04–1,40. Бұл тағамдағы қалыпты C витаминіне қатысты емес, бірақ сепсисте осындай инфузия міндетті пайдалы деген уәдеге қарсы.
Полифенолдар модельдерде AMPK, SIRT1 және қабыну сигналдарын өзгерте алады. Ұсыным үшін құрам, доза, биожетімділік және маңызды нәтижелер қажет. Молекулалық сызба антиоксидант, құрылыс субстраты мен ингибитордың әмбебап курсын анықтамайды.
S1P, альбумин және дәлелденген тамырлық ем
S1P — сигналдық сфинголипид, оны лизосфинголипид деп те атайды. Zeng et al. (2014) қоректік орта ақуыздары алынған эндотелий моделінде S1P1 сигналдары беткі құрамбөліктер жоғалуын шектейтінін тапты. Рецептор түрі, тасымалдаушы және десенситизация әсерді өзгертеді. Физиологиялық рөл әр дәрілік агонист тамырды қауіпсіз «бекітеді» дегенді дәлелдемейді.
Альбуминді де тек осы механизмге сүйеніп тағайындауға болмайды. ALBIOS (Caironi et al., 2014) ауыр сепсисі бар 1818 пациентті қамтыды; альбумин мен кристаллоид қосындысы жалпы өмір сүруді жақсартпады: 28-күндегі өлім 31,8% және 32,0%. Бұл жеке көрсетілімдерді жоймайды, бірақ ESL жөндеу үшін жалпы инфузияны қолдамайды.
Статиндер және ренин–ангиотензин жүйесіне әсер ететін дәрілер дәлелденген жүрек-қантамыр не бүйректік көрсетіліммен таңдалады. Торға ықтимал әсер LDL, қысым, бүйрек қызметі мен қосалқы ауруды бағалауды алмастырмайды. PBR жоғары болуы жалғыз өзі дәрі тағайындауға жеткіліксіз.
Натрий, су, қозғалыс және шешім
Oberleithner et al. (2011) альдостерон бар ортада натрийді ұзақ көтергенде адам кіндік артериясының эндотелийінде қабаттың механикалық қасиеті мен құрамы өзгеретінін байқады. Бұл рандомизацияланған тұз тұтыну сынағы емес және тұзды тағам бірден қандағы натрийді тәжірибелік деңгейге көтеретінін көрсетпейді. Натрий мен тұз массасын ажырату да керек: шамамен 2 г натрий 5 г NaCl-ға сәйкес.
Қысым мен метаболикалық факторларды басқару, шылымнан бас тарту және қолайлы қозғалыс бірнеше аптадағы бекітілген қалыңдау пайызынан тәуелсіз клиникалық мәнге ие. Қалыпты гидратация әр адамға бір су мөлшерін міндеттемейді; жүрек не бүйрек жеткіліксіздігінде шешім дараланады. Физиологиялық натрийурездік сигнал қажетті су ішуді шектеуге негіз емес.
Практикалық жол тұрақты альбуминурия, гипертензия, диабет, ісіну немесе ауыр инфекция сияқты мәселеден басталады. Себебі анықталып, нәтижесі дәлелденген ем таңдалады. Зерттеулік PBR немесе бөліну маркері диагнозды, тәуекелді және ем бағасын алмастырмай толықтыра алады. Бұл деректер барлық тамырға сулодексид, NAC, N-ацетилглюкозамин, HA және витаминнің әмбебап қоспасын белгілемейді.
Дәлел қалай бағаланды
Бұл ғылыми талдау 2026 жылғы 8 қазандағы жағдай бойынша бастапқы механистік зерттеулерді, адам тәжірибелерін және ем сынақтарын нысаналы тексеруге сүйенеді. Дизайн, түр мен тін, әдіс, соңғы нүкте, библиография және теріс нәтижелер ескерілді. Бұл жүйелі шолу, GRADE бағасы немесе сыртқы рецензия емес. Барлық толық мәтін қолжетімді болмады: кейбір бастапқы жарияланым индекстелген түйіндеме және баспаның қолжетімді беті арқылы тексерілді. Мұнда қорытынды көрсетілген нәтижемен шектелді. Тәжірибелік механизм, суррогат көрсеткіш және клиникалық нәтиже бөлек дәлел түрлері ретінде қаралады.
Жиі қойылатын сұрақтар
PBR қалыңдықты тікелей өлшей ме?
Жоқ. Эритроциттің енуін жанама бағалайды; алгоритм, ағыс және жағдайға тәуелді, барлық мүше қалыңдығын бермейді.
Сулодексид барлық тамырды жөндей ме?
Жоқ. Ерте суррогат пен шағын дейін/кейін жұмысы ірі диабет сынағында қайталанбады. Жеке көрсетілім бөлек қаралады.
HA фрагментінің бәрі қабындыра ма?
Жоқ. Өлшем, кешен, тазалық және модель маңызды; эндотоксин жалған тікелей қабыну әсерін бере алады.
Әр капиллярдың веналық ұшы сіңіре ме?
Жоқ. Көп үздіксіз бассейнде тұрақты сүзілу мен лимфа басым, бірақ уақытша қайта сіңу және арнайы бассейн бар.
Барлығына NAC, HA және N-ацетилглюкозамин керек пе?
Әмбебап курс белгіленбеген. Алғышарттар мен жедел көктамырішілік тәжірибе ұзақ пероральді қоспаның пайдасын дәлелдемейді.
Клиникалық шешімді не анықтайды?
Альбуминурия, ісіну, диабет немесе басқа мәселенің себебі және нәтижесі дәлелденген ем; жалғыз зерттеу маркері емес.
Дереккөздер
- Vink H, Duling BR (1996). Identification of distinct luminal domains for macromolecules, erythrocytes, and leukocytes within mammalian capillaries. Circ Res. 79:581–589.
- Weinbaum S et al. (2003). Mechanotransduction and flow across the endothelial glycocalyx. PNAS. 100:7988–7995.
- Florian JA et al. (2003). Heparan sulfate proteoglycan is a mechanosensor on endothelial cells. Circ Res. 93:e136–e142.