
Убихинол және убихинон: CoQ10 редокс-циклі, сіңуі және клиникалық шектері
CoQ10 түрлерін терең салыстыру: Q-цикл, редуктазалар, мицелла мен хиломикрон, плазма кинетикасы және клиникалық сынақтар; бір түрдің әмбебап артықшылығы белгіленбейді.
«Қай түрі жақсы?» деген сұрақтың бірнеше мағынасы бар. Убихинон мен убихинол мембраналарда бір-біріне үздіксіз айналады; препарат әуелі гидрофобты молекуланы матрицадан босатып, ішектен өтіп, липопротеиндерге енуі керек. Плазмадағы мөлшердің өзгеруі жүрек бұлшықетіндегі концентрацияны немесе аурудың нәтижесін әлі көрсетпейді. Сондықтан фармакокинетикалық тәжірибеде редокс-түр мен өндіру технологиясы ажырамайды, ал клиникалық тиімділік бөлек зерттеуді қажет етеді. Салыстыру химиядан басталып, әр сынақтың нақты қандай сұрақты шешкенімен аяқталады.
1. Хинон молекуласы және оның үш күйі
1.1. Затты бөліп алудан биологиялық қызметіне дейін
Crane және әріптестері жүрек митохондрияларында тыныс алу субстраттарынан электрон алған кезде тотықсызданатын липофильді тасымалдаушыны анықтады. Morton «убихинон» атауын бекітті, Folkers тобы хинон басы мен ұзын изопреноид тізбегінің құрылысын анықтады. Бұл жаңалық бір дәріханалық редокс-түрді екіншісінен физиологиялық етпейді: белсенді жүйе екі түр мен аралық семихинон айналымынан тұрады. Изопрен буындарының саны түрлер арасында өзгеше; адамда CoQ₁₀ басым, тышқан мен егеуқұйрықта CoQ₉ елеулі үлес алады. Кеміргіш ұлпаларының сандық нәтижелерін адамға Q-пул құрамын ескермей көшіруге болмайды.
1.2. Хинон сақинасы, декапренил құйрығы және фазалық орта
Тотыққан CoQ₁₀ формуласы — . 1,4-бензохинонның екі карбонилі электрон мен протон қабылдайды; метокси топтары және метил орынбасары сақинаның электрондық және стерикалық қасиеттерін өзгертеді. Он изопрен буынынан құралған құйрық молекуланы липидтік фазада ұстап, басына тыныс алу кешендерінің ақуыз қалталарымен және мембрана интерфейсімен әрекеттесуге мүмкіндік береді. Тізбек ұзындығы, конфигурациясы және липидтердің жергілікті тығыздалуы диффузияға әсер етеді. «Берік зәкір» қозғалыссыздық емес: бүйірлік қозғалыс пен микродомендер арасындағы алмасу тасымалдаушыға қажет.
Жоғары липофильділіктің екі жағы бар. Митохондрияда ол Q-пулды электрон донорлары мен III кешенге жақын ұстайды, ал ішектің сулы ортасында еруді қиындатады. Хинон басының қосқабаттағы орны редокс-күйге, мембранаға және ақуыз ортасына тәуелді. Барлық ұлпаға ортақ ену тереңдігі, бүйірлік диффузия жылдамдығы немесе редокс-потенциал тәжірибе жағдайларын дұрыс алмастырмайды.
1.3. Убихинон, семихинон және убихинол
Екі электрондық тотықсыздану:
Шеткі күйлердің арасында протондалған не аниондық семихинон радикалы пайда болады; үлесі pH пен нақты ақуыз орнындағы тұрақтануға тәуелді. Бұл пайдалы электрон тасымалының қысқа мерзімді қатысушысы, автоматты түрде улы өнім емес. Убихинон ферменттерден электрон қабылдайды және липидтік пероксил радикалына сутекті тікелей бермейді. Убихинол тізбекті үзіп, өзі радикал не тотыққан күйге өтеді. Екі соңғы күй де бір циклге қажет, сондықтан «тек тотықсызданған түр белсенді» тыныс алуды толық сипаттамайды.
Жартылай реакция потенциалы pH, концентрация, фаза және ақуызбен байланысуға тәуелді. Еркін молекула мәндерін III кешенге автоматты енгізуге болмайды: және аралық күйді әрқалай тұрақтандырады. Плазмадағы убихинол үлесіне қан алынғаннан кейін пробиркадағы тотығу, липопротеиндер және талдау хаттамасы әсер етеді. Жас не ауру арақатынасты өзгертуі мүмкін, бірақ барлық ұлпа мен зертханаға ортақ «жас — 95%, қарт — 50%» кестесі жоқ.
2. Митохондриялық Q-пул және III кешеннің Q-циклі
2.1. Бір пулға бірнеше донор қосылады
Ішкі мембранада CoQ I кешеннен FMN және Fe–S орталықтары арқылы, II кешеннен FAD және темір-күкірт орталықтары арқылы тотықсыздандырғыш эквиваленттер алады. Біріншісі протон айдайды, екіншісі айдамайды. Осы пулға май қышқылдары мен кей аминқышқылдардың тотығуындағы ETFDH электрон тасымалдаушы флавопротеин:убихиноноксидоредуктаза, митохондриялық глицерол-3-фосфатдегидрогеназа GPD2, пиримидин синтезіндегі дигидрооротатдегидрогеназа DHODH және сульфид:хиноноксидоредуктаза SQOR қосылады. Ағындар субстратқа, ұлпаға және тыныс алу күйіне қарай өзгереді. «CoQ мөлшері» тотықсызданған/тотыққан үлестерді, оттек пен ADP-мен энергетикалық ұштасуды және кешендер арасындағы жергілікті таралуды өлшеуді алмастырмайды.
2.2. кешеніндегі екі орын
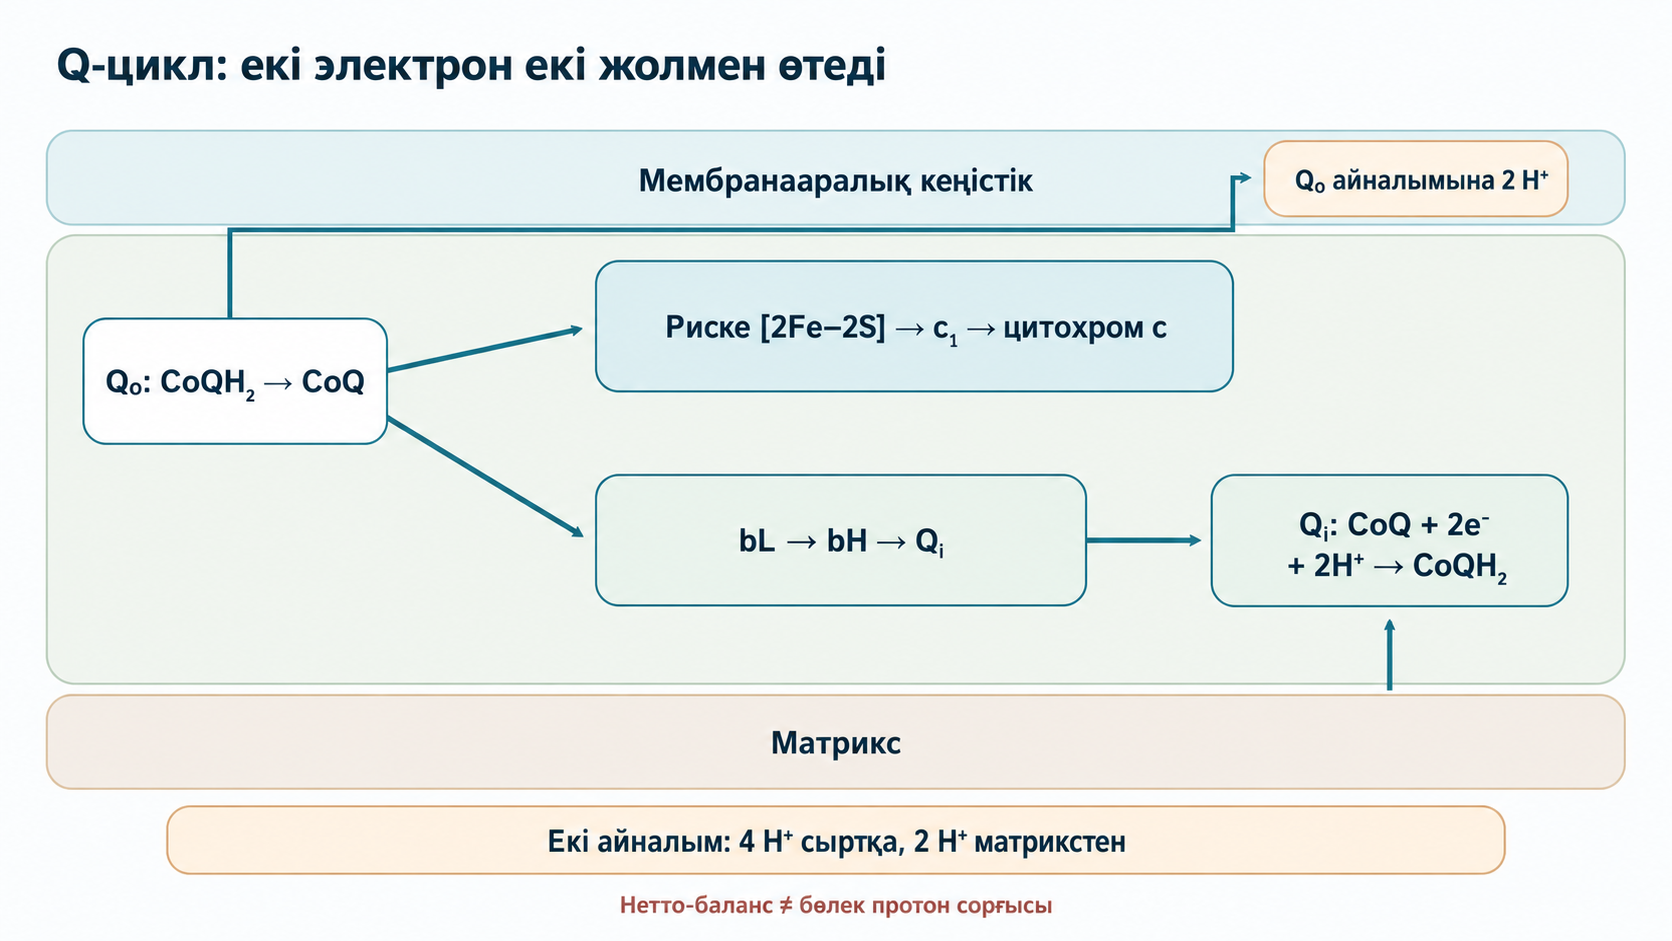
III кешен, яғни убихинол:цитохром-c-оксидоредуктаза, мембранааралық кеңістікке қараған -дағы убихинол тотығуын матрикске қараған -дағы убихинон тотықсыздануымен байланыстырады. 1BGY қоса құрылымдары , гемдері бар цитохром , цитохром және кластері бар қозғалмалы Риске ақуызын көрсетеді. Құрылымдық сурет барлық күйге ортақ туннельдеу жылдамдығын немесе Риске басының бұрышын анықтамайды; оның қозғалысы реакция байланысының бөлігі, капсула пайдасының дәлелі емес.
-да бірінші электрон Риске орталығынан геміне, кейін еритін цитохром -ге өтеді. Екіншісі , арқылы -ға барады. Әр молекула тотығуы ішкі мембрананың сыртқы жағына екі протон босатады. Екі айналымнан кейін екі электрон және матрикстен екі протон алып, бір CoQ-ды тотықсыздандырады. Жалпы сызба:
Бұл цитохром -ге екі электрон үшін формалды нетто-стехиометрия; ақуызының төрт протонды бөлек механикалық айдауы емес. -да босату және -да қабылдау АТФ-синтаза қолданатын протон-қозғаушы күшке үлес қосады. Потенциалдың таңбасы мен шамасы келісімге және метаболизмге тәуелді. Гемдер арасындағы электрон қозғалысы қашықтық, қайта ұйымдасу энергиясы және ақуыз ортасына байланысты. Туннель моделі кинетиканы түсіндіреді, бірақ 10 мкс-тан қысқа уақыт әмбебап тұрақты емес.
2.3. Семихинон, супероксид және мембрана қорғанысы
Екінші электрон жолы тежелсе, аралық күй ұзағырақ сақталып, оттекпен әрекеттесіп супероксид түзуі мүмкін. -ды бөгейтін антимицин A және тежегіштері миксотиазол, стигмателлин осы жолдарды ажыратады. Әсер байланысу орны мен пул күйіне тәуелді; зертханадағы тыныс алу блокадасы қалыпты CoQ₁₀ қабылдаудағы радикал мөлшерін көрсетпейді. Қатты тотықсызданған Q-пул мен тиісті потенциалда I кешендегі кері электрон тасымалы да реактивті оттек көзі болады.
Тотықсызданған CoQ липидтік пероксил радикалына эквивалент беріп, токоферолды қалпына келтіруге қатысады; кейін ферменттер өз редокс-күйін жаңартады. Ішкі мембрана кардиолипинге бай, сондықтан пероксидтенуді бақылау кешендер мен тосқауыл үшін маңызды. Бірақ «ауыз арқылы убихинол → кардиолипин зақымының азаюы → mPTP жабылуы → пациент апоптозының алдын алу» әрқайсысы бөлек тексерілетін қадамдардан тұрады. Мембраналық химияны басқа митохондриялық редокс-әсерлермен салыстыру пайдалы, алайда синергияны дәлелдемейді.
3. Жасуша хинонды тотықсызданған пулға қалай қайтарады
3.1. NQO1: екі электрондық химия және оның шектері
NAD(P)H:хиноноксидоредуктаза NQO1 — хинондарды NADH не NADPH көмегімен тотықсыздандыратын FAD-тәуелді гомодимер. Бірінші жартылай қадамда эквивалент никотинамидтен байланысқан FAD-қа өтеді; тотыққан кофактор шыққан соң тотықсызданған флавин эквиваленттерді хинонға береді. CoQ реакциясы: . Екі электрондық жол бір электрондық тізбекті реакцияға қарағанда еркін семихинонды аз түзеді, бірақ NQO1-ді мембраналық убихинолдың жалғыз ферменті етпейді.
NQO1 негізінен цитозольде зерттеледі; плазмалық мембрана редокс-жүйесіне қатысуы үшін жасуша түрі мен электрон бағытын нақтылау қажет. Бір хинонға арналған Михаэлис тұрақтысы мен каталитикалық сандарды липофильділігі, препараты және белсенді орталыққа жеткізілуі басқа CoQ₁₀-ға көшіруге болмайды. Компартментте ферменттерден бөлек NAD(P)H, FAD және хинон қолжетімділігі маңызды. Никотинамид пулының прекурсорларға тәуелділігі B3 витамині шолуында түсіндірілген; қанда NAD⁺ көбеюі белгілі ұлпада NQO1 ағыны артқанын дәлелдемейді.
3.2. Өзге редуктазалар және «жалғыз белсендіруші» қатесі
Тиоредоксинредуктаза 1 FAD және селеноцистеині бар C-соңғы мотивті қамтиды; NADPH электрондарын алып, тәжірибелік жүйеде CoQ-ды тотықсыздандырады. Цитохром--редуктаза CYB5R3 NADH қабылдайды, ал мембрана серіктестері кейінгі бағытты анықтайды. Липоамиддегидрогеназа DLD — пируват, α-кетоглутарат және тармақталған кетоқышқыл кешендерінің FAD-тәуелді E3 бөлігі; жанама хиноноредуктазалық реакциялары биохимиялық ортада сипатталған. Тазартылған ақуыз белсенділігі адам ишемиясындағы кепілді митохондриялық резервті көрсетпейді.
Компартмент шешуші: матрикстік DLD ішкі мембрананың сыртқы бетіндегі өзге жүйелерден бөлінген; NADH доноры мен CoQ қолжетімділігі өзгеше. CoQ кәдімгі тыныс алу донорлары арқылы да тотықсызданады. Демек NQO1 ішінара жоғалуы убихинонды толық айналдыра алмау емес, ал бір препараттың жоғары плазмалық экспозициясы жалғыз міндетті фермент сатысын айналып өткенін көрсетпейді.
3.3. NQO1 Pro187Ser, Nrf2 және жас: дәлел деңгейлері
NQO1 c.609C>T, rs1800566, Pro187-ні Ser-ге алмастырады. Құрылымдық және жасушалық жұмыстар төмен тұрақтылық, бұзылған FAD байланысы және жылдам протеасомдық ыдыраумен байланыстырады; генотиптер арасында белсенділік айқын өзгереді. Бұл CoQ метаболизміне маңызды фармакогенетикалық болжам. Алайда берілген әдебиетте T/T тасымалдаушылар ауыз арқылы убихинонды сіңірмейді және тек убихинол алуы тиіс екенін көрсеткен клиникалық сынақ жоқ. Генотип бойынша экспозиция мен нәтижені тікелей салыстырмай, сауда түріне көрсетілім жасауға болмайды.
NQO1 экспрессиясы электрофильдік стреске Keap1–Nrf2–ARE арқылы жауап береді: бастапқыда Keap1-CUL3 Nrf2-ні ыдыратуға жібереді; сенсор цистеиндері өзгергенде бұл айналым азайып, ядролық Nrf2 шағын Maf-пен байланысып, NQO1 және басқа нысаналарды реттейді. Бұл реттелетін бейімделу, әмбебап жасқа байланысты қосқыш емес. Жас, ауру, тамақ, дәрі және қан алу әдісі CoQ арақатынасын өзгертеді. Белгіленген жас пайыздары әр егде адамдағы ұлпа тапшылығын не убихинонның тиімсіздігін дәлелдемейді.
4. Ішектегі сіңу және липопротеин тасымалы
4.1. Қатты фазадан аралас мицеллаға
CoQ₁₀ ірі әрі өте липофильді; кристалл сулы химусқа нашар таралады. Балқу нүктесі дене температурасынан жоғары болуы мүмкін, бірақ сіңу үшін ішек міндетті түрде «кристалды балқытпайды». Еру, майда дисперсия, бөлшек өлшемі, эмульсия және құрам мицеллаға қолжетімділікті өзгертеді. Бір физикалық қасиет барлық кристалды убихинонның 1–3% сіңуін анықтамайды. Тотыққан түр де майлы және дисперсті матрицаларда шығарылады; дұрыс салыстыру түр мен формуляцияны бірге бақылайды.
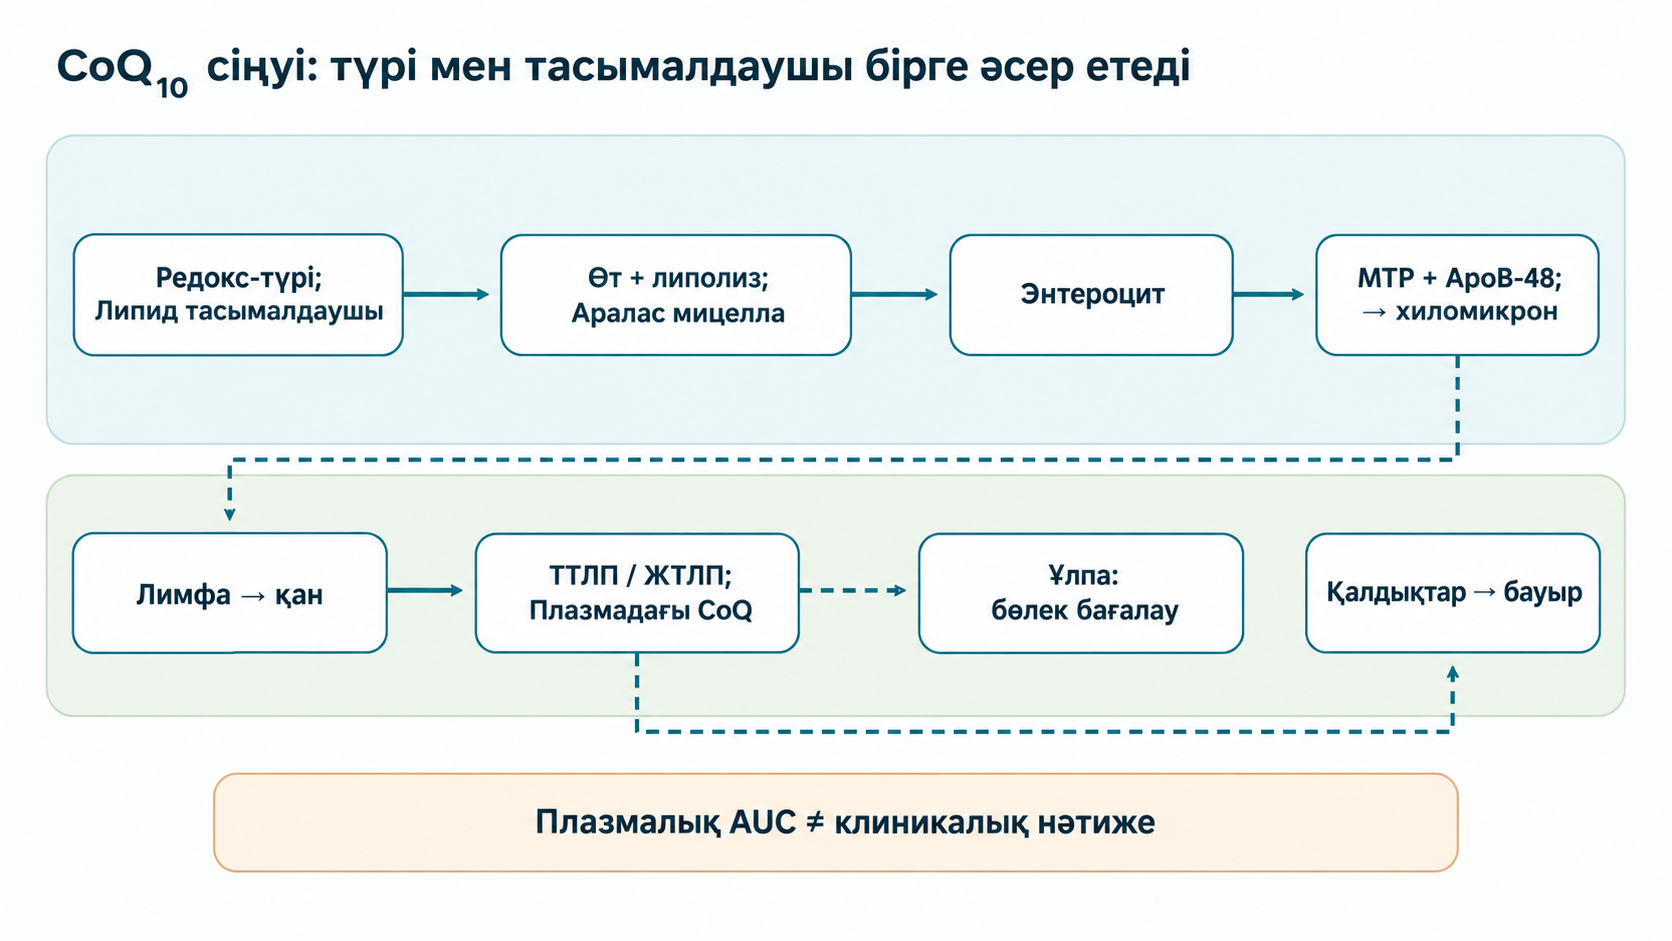
Тамақтан кейін өт пен панкреас ферменттері су-липид қоспасын құрайды. Өт тұздары, фосфатидилхолин, еркін май қышқылдары және 2-моноацилглицеридтер CoQ-ды қосып, араласпайтын су қабатынан щеткалық жиекке жеткізетін құрылымдар түзеді. Мицелла өлшемі, критикалық концентрация және диффузия химус пен әдіске тәуелді. Өт тапшылығы, май қорытудың немесе шырышты беттің бұзылысы алдын ала ерітілген түрді қоса кез келген экспозицияны өзгертеді.
4.2. Энтероцит, ApoB-48 және лимфа
Липофильді заттың апикалдық өтуінде пассивті мембрана таралуымен қатар SR-BI/SCARB1 және NPC1L1 талқыланады. Ақуыз үлесі модельге тәуелді; «SR-BI гидрофобты арнасы» немесе эзетимибтің CoQ-ды міндетті 30–50% бөгеуі барлық адам мен препарат үшін анықталмаған. Энтероцитте CoQ мембрана мен липид бөлшектеріне бөлінеді. MTP ApoB-48 бар триглицерид бөлшектерін жинайды; олар бүрлердің лимфа тамырларынан кеуде өзегі арқылы қанға жетеді. Бұл кеш постпрандиалдық шыңды түсіндіреді, бірақ бауырды мәңгі айналып өтуді білдірмейді: хиломикрон қалдықтарын кейін бауыр алып, қайта таратады.
Кейін CoQ ӨТТЛП, ТТЛП және ЖТЛП құрамында анықталады. Әр үлес бөлшектер саны мен құрамына тәуелді; липидке түзетілмеген сарысу деңгейі жасуша қорын емес, тасымалдаушы санын көрсетуі мүмкін. Кардиомиоцит, қаңқа бұлшықеті және миға өту — жеке тасымал сұрақтары. Плазмалық AUC миокард митохондриясындағы концентрацияға сандық та, себептік те тең емес. CoQ токоферол және өзге жүйелермен липопротеин қорғанысында әрекеттеседі, бірақ бұл атеросклероздық оқиғалар азайғанын көрсетпейді.
5. Убихинол мен убихинон фармакокинетикасын салыстыру
5.1. Шикізат және түрдің айналуы
Убихинол сақтау мен өндірісте тотығады, сондықтан оттектен қорғау және капсула құрамын бақылау маңызды. Тотыққан CoQ ағзада тотықсызданады, енгізілген убихинол да қайта тотығып, қалпына келеді. Kaneka QH™ сияқты шикізат атауы жеке физиологиялық механизм емес: май, дисперсия, доза, тамақ және тұрақтылық нәтиже береді. Энтероциттегі міндетті NQO1 қанығуы және P-гликопротеинмен кері шығу жалпы жол ретінде дәлелденбеген; бұл убихинонды «энергиясы қымбат» не жұмыссыз деуге негіз емес.
5.2. , , AUC және қайталама доза
Бір рет қабылдағанда — байқалған максимум, — оған жету уақыты, — соңғы нүктеге дейін өлшенген плазма экспозициясы. Қайталама қабылдауда тұрақты деңгей ұзақтыққа, доза аралығына, тағамға және липопротеин алмасуына тәуелді. Ұзын тізбекті CoQ үшін эндогендік фон түзетіледі; қан алу мен өңдеуде редокс-түр сақталуы тиіс. Тек жалпы CoQ өлшеу ұлпа тотықсыздануын немесе митохондрия қызметінің артуын көрсетпейді.
Langsjoen-нің 12 сау еріктідегі шағын бірізді жұмысы бірдей қосымша заттары бар капсулада төрт апта 200 мг/тәулік убихинонды, washout-тан кейін төрт апта 200 мг/тәулік убихинолмен салыстырды. Жалпы плазмалық CoQ шамамен 0,9-дан 2,5 мкг/мл-ге және убихинолда 4,3 мкг/мл-ге өсті; холестеринге қатынасы да өзгеше болды. Бұл сол топтағы сол жұптың суррогат артықшылығын көрсетеді, бірақ кезек реті, шағын іріктеме және клиникалық нәтиженің жоқтығы «3–8 есе жақсы» әмбебап қорытындысын бермейді. López-Lluch-тың 14 сау қатысушыдағы айқаспалы зерттеуінде жеті формуляцияның ең жақсы сіңген екеуі убихинон және убихинол капсуласы болды. Бұл тасымалдаушы мен ерітудің маңызын көрсетеді: редокс-түр қорытындысы бірдей доза, матрица және бақыланатын тағамды қажет етеді. Hosoe негізінен убихинол қауіпсіздігі мен экспозициясын зерттеді, кез келген убихиноннан артықшылығын емес.
| Өлшем | Шығаруға болатын қорытынды | Өздігінен дәлелдемейтіні |
|---|---|---|
| Бір дозада , | Сол жағдайдағы шың биіктігі мен уақыты | Митохондриялық мөлшер және пайда ұзақтығы |
| Плазмадағы интегралды экспозиция | Айырманың түрден не технологиядан туындауы | |
| CoQ/холестерин, убихинол үлесі | Сақталған үлгінің липопротеин/редокс пулы | Әмбебап диагноз шегі және клиникалық жауап |
| Симптом, оқиға, қызмет | Зерттелген топтағы клиникалық нәтиже | Тікелей салыстырылмаған түрдің артықшылығы |
Момент ауданы және сипаттамалық модельге пайдалы, бірақ эндогендік фон, лимфа арқылы келу және қайта айналым экзогендік CoQ түсіндірмесін қиындатады. Ұзақ плазмалық MRT «ұлпа қоймаларының терең қанығуын» көрсетпейді. Барлық түр, ауру және зертханаға бір емдік сарысу шегі тағайындалмайды.
5.3. Егде жас, мальабсорбция және дәрілер
Жүрек жеткіліксіздігі, ішек пен гепатобилиарлық ауру, рацион және липопротеин профилі CoQ түсуін өзгертеді. Формуляция маңызды, бірақ убихинол өт тапшылығын, эзетимибті немесе кез келген NQO1 нұсқасын автоматты еңсермейді. Әр топты бірдей технологиямен, фармакокинетикалық әрі клиникалық нүктелермен тікелей зерттеу керек. Салыстыру нақты тексерілген препаратты мақсатқа сай таңдауға көмектеседі, редокс-күй жеке рецепт емес.
6. Клиникалық деректер: CoQ₁₀ әсері убихинол әсерімен тең емес
6.1. Жүрек жеткіліксіздігі және Q-SYMBIO
Q-SYMBIO симптомды жеткіліксіздік пациенттерін сол кездегі стандартты емге қосымша күніне үш рет 100 мг CoQ₁₀ не плацебоға рандомизациялады; бақылау шамамен екі жыл болды. 420 қатысушыда ірі жүрек-қантамырлық құрама нәтиже шамамен 15% және 26% болды, жүрек-қантамырлық және жалпы өлімде де айырма хабарланды. Бұл зертханалық сан емес, оқиғалар сигналы болғандықтан маңызды. Бірақ убихинол мен убихинон салыстырылмады, бір түрдің өмір сүрудегі артықшылығы анықталмады. Формуляция, бірге ем және ем дәуірі қазіргі әр пациентке көшіруді шектейді; CoQ дәлелді дәрілерді алмастырмайды.
Бастапқы мәтін нәтижені соққы көлемі мен жүрек индексінің болжамды өсімдері және міндетті mPTP жабылуымен байланыстырған. Сынақ бұл себеп тізбегін дәлелдеген жоқ. Мембрана өткізгіштігі кальций, реактивті оттек және циклофилин D сияқты реттегіштерге тәуелді; клиникалық механизмге ұлпада делдалдарды өлшеу қажет, биохимиялық қисын ғана жеткіліксіз.
6.2. KiSel-10: комбинация және ұзақ бақылау
KiSel-10-да Швецияның 443 егде тұрғыны селен мен CoQ₁₀ бірге немесе плацебо алды; жүрек-қантамыр өлімі аз және NT-proBNP, эхокардиография айырмасы хабарланды. Бастапқы топтарды ұзақ бақылау қабылдау аяқталғаннан кейін де өлім айырмасын тапты. Бұл нақты солтүстікеуропалық топтағы комбинация еді, жеке селен, CoQ не убихинол артықшылығы емес. Бастапқы селен күйі, тамақ, жылдардағы ем өзгерістері және көп қайталама талдау қолданылуға әсер етеді.
Селен тиоредоксинредуктазалар мен GPx4 селенопротеиндеріне қажет, бұл CoQ желісімен биохимиялық әрекеттесу мүмкіндігін береді. Бірақ әр заттың жеке тобы жоқ болса, екі компонент нәтижесінен «синергия» есептелмейді. Кейінгі биомаркер талдаулары мен катамнез екінші тәуелсіз рандомизация емес, көп компонентті «стектерді» де растамайды.
6.3. Статиндер және бұлшықет симптомдары
ГМГ-КоА-редуктаза тежелуі мевалонат ағынын азайтады; изопреноид аралық заттар холестерин, CoQ құйрығы және ақуыз пренилденуіне қажет. Плазмалық төмендеу ТТЛП тасымалдаушылары азаюын ішінара көрсетуі мүмкін. Симптом себептері әркелкі және миоцитте тапшылық дәлелі емес: шағым, креатинкиназа, объективті патология, тоқтату/қайта беру жауабы ажыратылады. Жалпы биохимия циклофилин D арқылы талшық некрозының алдын алуды көрсетпейді.
Qu және әріптестері 575 пациенті бар 12 шағын рандомизацияланған зерттеуді біріктіріп, кей субъективті симптомның жақсарғанын хабарлады. Бұрынғы талдау сенімді әсер таппады; дизайн, SAMS критерийі, доза, ұзақтық пен ауырсыну шкаласы айырмасы әмбебап әсерге сенімділікті азайтады. «Креатинкиназаны қалыпқа келтіреді, статинге бейілділікті қайтарады» осыдан шықпайды. Кей пациентке көтерімділік көмектессе де, симптом бөлек бағаланып, статин шешімі жүрек-қантамыр қаупіне сүйенеді. Бұл жұмыстар SAMS жеңілдетуде екі түрді салыстырмайды.
6.4. Эндотелий, метаболизм маркерлері және репродукция
Модельде тетрагидробиоптерин BH₄ тотығуы eNOS байланысын бұзып, NO орнына супероксидті күшейтеді. CoQ антиоксиданттығы мен липопротеин әрекеті ықпалды мүмкін етеді, бірақ «убихинол BH₄ қалпына келтіріп эндотелийді емдейді» себептік тәжірибені қажет етеді. Шағын сынақтар метаталдауы иық артериясының ағынға тәуелді кеңеюін сипаттады; FMD әдіс пен тамыр күйіне тәуелді суррогат, инфаркт азаюы емес.
Ооцит пен сперматозоид митохондриясы электрон тасымалына тәуелді, сондықтан CoQ зерттеу орынды. Бірақ Ben-Meir ооцит қызметі мен құнарлылықты көбіне қартайған тышқанда зерттеді; әйелдердегі ЭКҰ жүктілігіне дәлел емес. Ұрық плазмасындағы CoQ мөлшері қабылдаудан кейінгі қозғалыс, концентрация немесе ДНҚ фрагментациясының нақты өзгерісін көрсетпейді. Сперма параметрлері тірі туу мен түрлерді тікелей салыстырудан бөлінеді.
| Контекст | Өлшенген дәлел | Түр таңдаудағы ашық сұрақ |
|---|---|---|
| Q-SYMBIO | CoQ/плацебо клиникалық оқиғалары | Осы оқиғалар бойынша түрлер салыстырылмады |
| KiSel-10 | CoQ+селен/плацебо және бақылау | Жеке компонент пен синергия ажыратылмайды |
| SAMS | Шағын әркелкі сынақтар, қайшы метаталдаулар | Ауырсыну не статинді сақтау үшін түр артықшылығы жоқ |
| FMD және репродукция | Суррогаттар, доклиникалық және ерте клиникалық жұмыстар | Ұлпа экспозициясы, ұзақ нәтиже және түр әсері зерттелуі керек |
7. Практикалық түсіндіру, комбинациялар және қауіпсіздік
7.1. Доза мен тағам түр атауынан емес, сұрақтан туындайды
Липофильді заттың сіңуін тағам майы, өт және капсула құрамы айтарлықтай өзгертеді; тамақпен қабылдау көптеген кинетикалық тәжірибе жағдайына жақындатады. Бірақ міндетті 10–15 г май, кешкі қабылдауға тыйым, SR-BI қанығуына сүйенген барлық дозаны бөлу және >3,5 мкг/мл «емдік» шек жалпы норматив ретінде дәлелденбеген. Нақты сынақ дозасы топ, формуляция, уақыт, фондық ем және нәтижемен бірге талқыланады. Жоғары плазма деңгейі клиникалық жауапты алмастырмайды.
7.2. Комбинациялар: биохимиялық үйлесім факторлық зерттеу емес
Селен кей редокс-ферменттердің белсенді орталығына қажет; PQQ жасуша мен жануарда CREB/PGC-1α және митохондрия биогенезімен байланыстырылған. Астаксантин мембраналарға таралады, шиладжит әркелкі органикалық заттардан тұрады. Бұлар CoQ-ға компонент қосу адамның АТФ-ын нақты пайызға арттыратынын, семихинонды III кешенде тұрақтандыратынын не аурудың алдын алатынын көрсетпейді. KiSel-10-ды селен, PQQ, шиладжит пен өзге зат пакетіне дәлел ету орынсыз. Әр компонент құрам, әрекеттесу және жанама әсер белгісіздігін арттырады. Тағам полифенолдары шолуы да биомаркер белсенділігін клиникалық нәтижеден бөледі.
7.3. Қауіпсіздік пен дәрілерді бақылау
Зерттелген ауыз режимдерінде CoQ әдетте қанағаттанарлық көтерілген, бірақ бұл әр дозаның, түрдің немесе көп компонентті өнімнің қауіпсіздігі емес. Диспепсия, жеке реакция, сапа, тұрақтылық, жүктілік, ауыр ілеспе ауру және дәрілер ескеріледі. K витаминіне құрылым ұқсастығы мен клиникалық хабарламаларға байланысты варфарин әсері әлсіреуі мүмкін деп талқыланады; бірге қолданғанда ХҚҚ клиникалық ережемен бақыланады. Статинді, жеткіліксіздік емін не антикоагулянтты дәрігерсіз CoQ үшін тоқтатуға болмайды. Доклиникалық NOAEL адамға ұсынылатын дозаға механикалық аударылмайды; эндогендік синтез кері байланысы немесе тоқтатуда «рикошет» жоқ дегеннің тәжірибелік негізі шектеулі.
8. Шолу әдісі және практикалық шешім
Бұл қолжетімді әдебиеттің нарративтік талдауы; негізгі қайшылықтар 2026 жылғы 4 қазанда бастапқы жарияланымдармен нысаналы салыстырылған. Жүйелі іздеу, ығысу қаупінің формалды бағасы және GRADE жүргізілген жоқ. Құрылымдық/жасушалық биохимия, кинетика және жеке адам сынақтары себептік сенімділігі әртүрлі. Сау еріктідегі AUC өлім, ауырсыну не құнарлылық айырмасын көрсетпейді; CoQ клиникалық сынақтары убихинолдың жеке әсерін бөлмейді. Кей ескі жұмыстар фондық ем өзгерістеріне дейін жасалған.
Таңдау мақсаттан басталады: расталған бастапқы CoQ тапшылығы, зерттелген топтағы қосымша ем немесе тек маркер өсіру — әртүрлі жағдай. Кейін препарат, көтерімділік, ауру және дәрілер бағаланады. Сапалы убихинол кей жағдайда жоғары экспозиция беруі мүмкін, бірақ түр атауы адам үшін оңтайлы шешім емес. Келесі қажет жұмыс — тасымалдаушы мен тамақты бақылайтын, этикалық мүмкін жерде ұлпа биологиясын өлшейтін және клиникалық нәтижесі алдын ала таңдалған, жеткілікті қуатты тікелей салыстыру.
Жиі қойылатын сұрақтар
Убихинол үнемі жақсы сіңе ме?
Жоқ. Кей препаратта плазма экспозициясы жоғары, бірақ май мен еріту де маңызды; әмбебап артықшылық және клиникалық пайда дәлелденбеген.
Pro187Ser убихинонды пайдасыз ете ме?
NQO1 белсенділігі төмен, бірақ басқа тотықсыздану жолдары бар. Генотип бойынша түр тағайындауға клиникалық дерек жеткіліксіз.
Q-SYMBIO мен KiSel-10 убихинол артықшылығын дәлелдей ме?
Жоқ. Олар CoQ10 немесе CoQ10+селенді плацебомен салыстырған; түрлерді оқиғалар бойынша салыстырмаған.
CoQ10 жүрек дәрісі не статин орнына жүре ме?
Жоқ. Ол қосымша ретінде зерттелді; негізгі ем қауіп пен дәлелді пайдаға тәуелді.
Барлығына плазма CoQ10 >3,5 мкг/мл керек пе?
Әмбебап шек расталмаған. Деңгей липопротеиндерге тәуелді, ұлпа мөлшері не функцияны автоматты көрсетпейді.
Дереккөздер
- Crane F. L. et al. Isolation of a quinone from beef heart mitochondria. Biochim Biophys Acta. 1957;25:220–221.
- Wolf D. E. et al. Coenzyme Q: structure studies on the coenzyme Q group. J Am Chem Soc. 1958;80:4752.
- Mitchell P. The protonmotive Q cycle: a general formulation. FEBS Lett. 1975;59:137–139.
- Xia D. et al. Crystal structure of the cytochrome bc1 complex from bovine heart mitochondria. Science. 1997;277:60–66.
- Crofts A. R. The cytochrome bc1 complex: function in the context of structure. Annu Rev Physiol. 2004;66:689–733.
- Ernster L., Dallner G. Biochemical, physiological and medical aspects of ubiquinone function. Biochim Biophys Acta. 1995;1271:195–204.
- Ross D., Siegel D. Functions of NQO1 in cellular protection and CoQ10 metabolism. Front Physiol. 2017;8:595.
- Traver R. D. et al. Characterization of a polymorphism in NAD(P)H:quinone oxidoreductase. Br J Cancer. 1997;75:69–75.
- Nebert D. W. et al. NQO1 polymorphism, hazardous chemicals, and disease susceptibility. Free Radic Biol Med. 2002;33:1055–1070.
- Bhagavan H. N., Chopra R. K. Coenzyme Q10: absorption, tissue uptake, metabolism and pharmacokinetics. Free Radic Res. 2006;40:445–453.
- Hosoe K. et al. Safety and bioavailability of ubiquinol after single and four-week oral administration. Regul Toxicol Pharmacol. 2007;47:19–28.
- Langsjoen P. H., Langsjoen A. M. Plasma CoQ10 after ubiquinol versus ubiquinone in healthy subjects. Clin Pharmacol Drug Dev. 2014;3:13–17.
- Evans M. et al. Randomized double-blind trial of bioavailability of two CoQ10 formulations. J Funct Foods. 2009;1:65–73.
- López-Lluch G. et al. Bioavailability of CoQ10 supplements depends on carrier lipids and solubilization. Nutrition. 2019;57:133–140.
- Mortensen S. A. et al. Q-SYMBIO randomized trial of CoQ10 in chronic heart failure. JACC Heart Fail. 2014;2:641–649.
- Alehagen U. et al. Selenium and CoQ10 in elderly Swedish citizens: cardiovascular mortality and NT-proBNP. Int J Cardiol. 2013;167:1860–1866.
- Alehagen U. et al. Cardiovascular mortality after selenium and CoQ10: 12-year follow-up. PLoS One. 2018;13:e0193120.
- Qu H. et al. Effects of CoQ10 on statin-induced myopathy: meta-analysis of randomized trials. J Am Heart Assoc. 2018;7:e009835.
- Marcoff L., Thompson P. D. CoQ10 in statin-associated myopathy: systematic review. J Am Coll Cardiol. 2007;49:2231–2237.
- Gao L. et al. CoQ10 and endothelial function: meta-analysis of randomized trials. Atherosclerosis. 2012;221:311–316.
- Ben-Meir A. et al. CoQ10 restores oocyte mitochondrial function and fertility during reproductive aging. Aging Cell. 2015;14:887–895.
- Mancini A. et al. Hormonal influence on CoQ10 levels in human seminal plasma. J Endocrinol Invest. 2020;43:933–942.
- Chowanadisai W. et al. PQQ stimulates mitochondrial biogenesis through CREB and PGC-1alpha. J Biol Chem. 2010;285:142–152.
- Ikematsu H. et al. Safety assessment of CoQ10 in healthy subjects: randomized placebo-controlled trial. Regul Toxicol Pharmacol. 2006;44:212–218.
- Turunen M. et al. Metabolism and function of coenzyme Q. Biochim Biophys Acta. 2004;1660:171–199.